来源:Construction of a globally modular recombinant Saccharomyces cerevisiae chassis for ginkgolide precursor levopimaradiene production(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
银杏内酯是银杏叶提取物EGb 761®的核心活性成分,全球市场价值超过100亿美元,但植物提取效率低、化学全合成步骤繁琐。本研究在酿酒酵母中构建了生产左旋海松二烯(LP)——银杏内酯关键前体——的重组底盘。通过对左旋海松二烯合酶(LPS)进行系统改造、调控甲羟戊酸(MVA)途径以及增强乙酰辅酶A、ATP和NADPH的供给,摇瓶发酵LP滴度达到792.72 ± 69.59 mg/L,补料分批发酵进一步提升至1809.32 ± 72.32 mg/L,较此前报道的酿酒酵母底盘菌株提高8.3倍,为目前报道的最高滴度。
研究背景
EGb 761®是一种标准化的银杏叶提取物,广泛用于治疗心脑血管疾病和卒中,全球市场价值超过100亿美元。银杏萜内酯是其关键生物活性成分,具有抗血栓、抗炎和神经保护等多种药理活性,对心脑血管疾病和阿尔茨海默病显示出治疗潜力。其中,银杏内酯B是已知最强的血小板活化因子(PAF)拮抗剂,还可能促进健康寿命延长。然而,银杏内酯的化学结构异常复杂。当前生产依赖效率低下的植物提取——受限于树木生长缓慢、代谢物滴度低和纯化成本高昂——或费力的全化学合成。工程化微生物细胞工厂提供了一种有前景的可持续替代方案,但其生物合成途径尚未完全阐明,仍是生物技术生产的主要瓶颈。二萜类化合物由(E,E,E)-香叶基香叶基二磷酸(GGPP)合成,GGPP通过甲羟戊酸(MVA)途径或甲基赤藓醇磷酸(MEP)途径产生。研究者已从银杏幼苗根中克隆并功能表征了二萜合酶基因GbLPS(GenBank登录号:Q947C4.1)。GbLPS催化GGPP转化为LP。N端转运肽的存在影响了该酶在异源宿主中的功能。
研究方法
2.1 菌株、质粒和培养基
质粒使用YEASEN的同源重组酶2 × Hieff Clone® Universal Enzyme Construct设计引物进行构建。本研究使用的引物序列见补充表S2。质粒使用大肠杆菌DH5α进行扩增。Coolaber的Super Yeast Receptor Preparation(SK2402-200T)和Transformation Kit将质粒或DNA片段转化到酿酒酵母中。本研究使用的酿酒酵母菌株基因型见补充表S4。基于重叠延伸PCR的DNA片段组装和基于同源重组的质粒构建详情见补充表S3。本研究使用的酿酒酵母菌株为BY4741,来源于酿酒酵母原始菌株S288C(MATa his3Δ1 leu2 met15Δ ura3-52)。Boxbio的还原糖含量检测试剂盒(AKSU002C)是一种能够检测培养基中还原糖含量的实时检测方法。Luria-Bertani(LB)培养基用于大肠杆菌培养,LB培养基通过10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl和100 μg/mL氨苄青霉素筛选阳性克隆菌株。最小合成定义(SD)基础培养基用于酵母平板培养,SD培养基配方为6.7 g/L酵母氮源(YNB),加入10 ml/L缺陷型氨基酸混合物(100 × 氨基酸混合物:0.25 g/L腺嘌呤、0.12 g/L L-精氨酸(HCl)、0.6 g/L L-天冬氨酸、0.60 g/L L-谷氨酸、0.12 g/L L-组氨酸、0.36 g/L L-亮氨酸、0.18 g/L L-赖氨酸、0.12 g/L L-甲硫氨酸、0.3 g/L L-苯丙氨酸、2.25 g/L L-丝氨酸、1.20 g/L L-苏氨酸、0.24 g/L L-色氨酸、0.18 g/L L-酪氨酸、0.90 g/L L-缬氨酸、0.12 g/L尿嘧啶)。不添加相应的氨基酸。灭菌后加入20 g/L D-葡萄糖,SG培养基中碳源改为半乳糖,配方与SD培养基类似,固体培养基中加入2 g/L琼脂。
摇瓶发酵使用酵母提取物蛋白胨葡萄糖(YPD)培养基,YPD配方为10 g/L酵母提取物、20 g/L蛋白胨,灭菌后加入20 g/L碳源。发酵培养基初始制备为光密度(OD600)0.4(Delft)或0.2(YPD)。30 mL补料分批发酵培养基首先配制为40.0 g/L MES、7.7 g/L NH4SO4、4.2 g/L一水合柠檬酸、3.3 g/L KCl、3 g/L K2HPO4、3 g/L MgSO4·7H2O、3 g/L NaCl(pH = 6.4)。然后向培养基中加入300 μL微量元素溶液(15 g/L EDTA、10.2 g/L ZnSO4·7H2O、0.5 g/L CuSO4、0.5 g/L MnCl2·4H2O、0.86 g/L CoCl2·6H2O、3.84 g/L CaCl2·2H2O、5.12 g/L FeSO4·7H2O、0.56 g/L Na2MoO4)。最后向培养基中加入360 μL维生素混合物(0.05 g/L生物素、1 g/L泛酸钙、25 g/L肌醇、1 g/L盐酸吡哆醇、0.2 g/L对氨基苯甲酸、1 g/L烟酸)。发酵在30°C、220 rpm条件下进行,初始OD600 = 0.2。发酵开始时使用2%半乳糖/葡萄糖作为初始碳源。每24小时监测细胞生长和葡萄糖消耗。48小时后,开始补料分批补料,每24小时加入1 mL培养基A,含有500 g/L半乳糖/葡萄糖、15 g/L (NH4)2SO4、9 g/L KH2PO4、1.5 g/L MgSO4·7H2O以及3 × 微量元素和3 × 维生素溶液。补料碳源必须单独灭菌,然后与其他灭菌的补料试剂混合。为捕获发酵过程中产生LP的工程菌株,向培养基中加入10%正十二烷(v/v)。
【数据】培养基:LB(10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl、100 μg/mL氨苄青霉素);SD(6.7 g/L YNB、10 ml/L氨基酸混合物、20 g/L葡萄糖);YPD(10 g/L酵母提取物、20 g/L蛋白胨、20 g/L碳源);补料分批培养基(40.0 g/L MES、7.7 g/L NH4SO4、4.2 g/L柠檬酸、3.3 g/L KCl、3 g/L K2HPO4、3 g/L MgSO4·7H2O、3 g/L NaCl、300 μL微量元素、360 μL维生素);温度:30°C;转速:220 rpm;初始OD600:0.2(YPD)或0.4(Delft);碳源:2%半乳糖/葡萄糖;补料:每24 h 1 mL培养基A(500 g/L半乳糖/葡萄糖、15 g/L (NH4)2SO4、9 g/L KH2PO4、1.5 g/L MgSO4·7H2O、3×微量元素、3×维生素);正十二烷:10%(v/v)
2.2 产物和生物量分析
生物工程菌株发酵72小时后,通过测量OD600确定菌株生物量。随后,培养液和细胞在6000×g离心10分钟。分离正十二烷层后进行GC-MS检测。GC-MS检测在Agilent Technologies 7890B仪器上进行(30 m × 0.250 mm × 0.25 μm色谱柱)。GC-MS检测程序使用全扫描和SIM扫描模式,SIM扫描分子量(92、137、272),不分流,进样量1 μL,扫描m/z范围50–500,溶剂延迟8分钟。柱室加热程序如下:初始温度50°C,保持2分钟;以40°C/min速率升温至170°C;以20°C/min速率升温至240°C;以40°C/min速率升温至300°C,保持1分钟。
【数据】离心条件:6000×g、10 min;GC-MS仪器:Agilent 7890B;色谱柱:30 m × 0.250 mm × 0.25 μm;SIM分子量:92、137、272;进样量:1 μL;扫描范围:m/z 50–500;溶剂延迟:8 min;柱温程序:50°C 2 min → 40°C/min至170°C → 20°C/min至240°C → 40°C/min至300°C 1 min
2.3 DNA操作
酿酒酵母基因数据从数据库SGD(yeastgenome.org)获取。酿酒酵母基因组模板通过冻融法制备,在99°C孵育10分钟后转移至−20°C冰箱20分钟用于基因扩增。异源基因从NCBI获取(补充材料),并由GenScript(中国南京)进行酿酒酵母密码子优化。使用重叠延伸PCR构建基因表达模块,包含氨基酸筛选标记、启动子、终止子、结构基因以及上下游同源臂。融合蛋白通过添加柔性(ggggs)连接肽进行融合。所有表达盒均已由BGI(中国广州)进行Sanger验证。麦芽糖结合蛋白(MBP)的DNA序列通过PCR从pET28a-MBP扩增。
【数据】基因组模板制备:99°C 10 min → −20°C 20 min;密码子优化:GenScript(南京);连接肽:(ggggs);验证:BGI Sanger测序;MBP来源:pET28a-MBP
2.4 NADPH/NADP+检测
在30 mL YPD培养基中发酵72小时后,对菌株LD212和LD221进行NADPH/NADP+检测。细胞通过4,500 rpm离心10分钟收集,用10 mM PBS洗涤两次,使用高压细胞破碎仪(Constant Systems Cell Disruptor)裂解。使用Solarbio辅酶II NADP(H)含量检测试剂盒(货号BC1100)定量胞内NADPH和NADP+,在570 nm处测量吸光度。
【数据】菌株:LD212、LD221;培养基:30 mL YPD;发酵时间:72 h;离心:4,500 rpm、10 min;洗涤:10 mM PBS、2次;裂解:高压细胞破碎仪;检测试剂盒:Solarbio BC1100;检测波长:570 nm
研究结果
3.1 LPS的评估
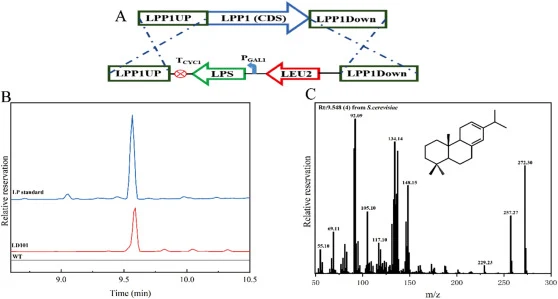
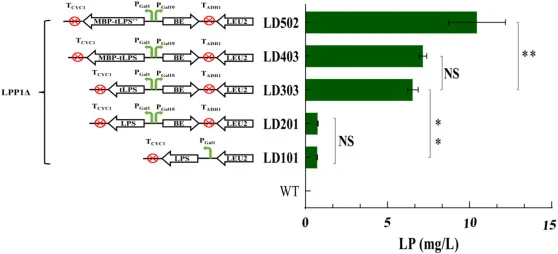
LPS基因在酿酒酵母中进行密码子优化后整合到LPP1Δ位点。LPP1和DPP1都是酵母编码的脂质磷酸酶,催化FPP和GGPP的去磷酸化。我们采用半乳糖诱导型启动子PGAL1驱动LPS表达,因此使用2%半乳糖作为发酵碳源。当LPS在酿酒酵母中表达时,仅产生少量LP(图1)。推测GGPP的供给可能是LP积累的限制因素。为验证这一点,构建了BE融合蛋白(BTS1-ggggs-ERG20)以将FPP的代谢流重定向至GGPP(图2)。遗憾的是,LP的产量仍未改变。有趣的是,删除LPS N端79个氨基酸的转运肽序列导致LP滴度增加9.02倍,达到6.546 mg/L(图2)。尝试在t79LPS的N端添加MBP(MBP-ggggs-t79LPS),目的是增加真核蛋白的可溶性和功能性表达。然而,未观察到LP滴度的明显增加。随后,引入突变体MBP-ggggs-t79LPSM593I;Y700F。异亮氨酸(Ile)比甲硫氨酸(Met)更具疏水性,且侧链构象更受约束,这可能破坏结合腔C端的氢键网络并增加腔的灵活性。Tyr 700邻近一个镁离子结合基序(DDXXD),该基序协调LPS底物的二磷酸基团。发酵后,菌株LD502的LP滴度为10.459 mg/L,与原始菌株LD101相比增加了8.3倍(图2)。因此,该遗传模块被用于后续研究。
【数据】菌株:LD101(原始)、LD502(突变体);LP滴度:LD101少量、LD502 10.459 mg/L;t79LPS滴度:6.546 mg/L(增加9.02倍);突变位点:M593I、Y700F;融合蛋白:BTS1-ggggs-ERG20、MBP-ggggs-t79LPS;碳源:2%半乳糖;启动子:PGAL1;整合位点:LPP1Δ
3.2 MVA途径基因的调控
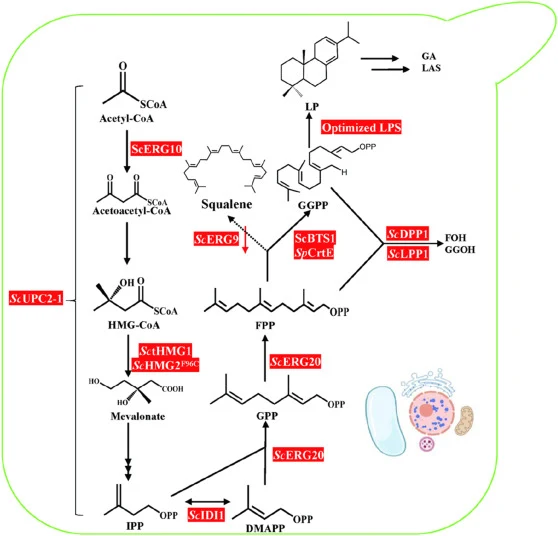
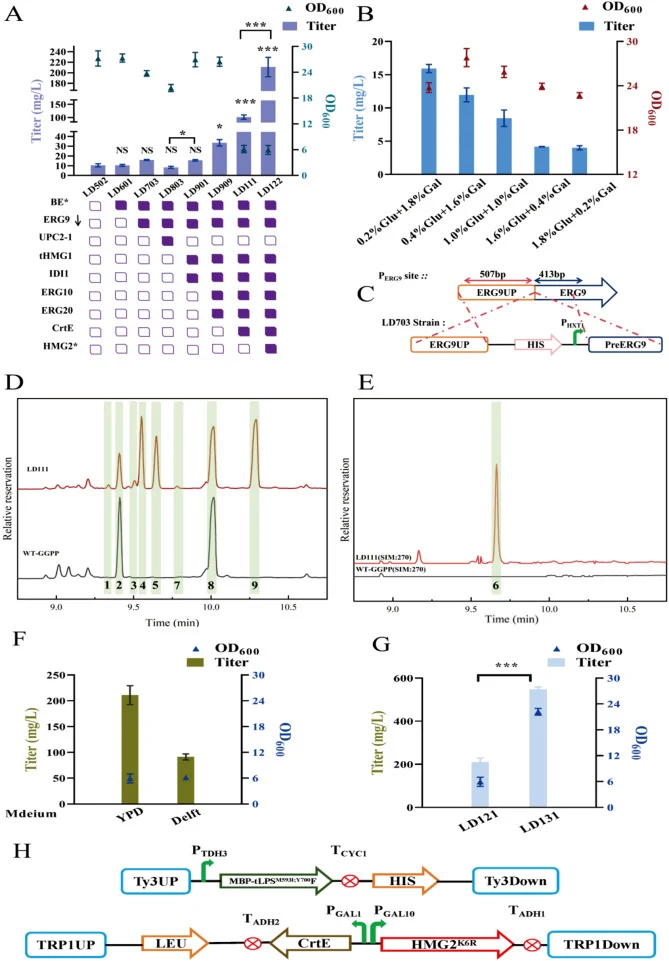
通过过表达BE F96C(BTS1-ggggs-ERG20 F96C)进一步提高GGPP水平。遗憾的是,未观察到LP滴度的显著增加(图4A)。ERG9(角鲨烯合酶)在甾醇生物合成途径中连接两个FPP部分形成角鲨烯,通向三萜类的途径流不是我们需要的。角鲨烯参与甾醇生物合成,而甾醇对酵母生长至关重要。我们使用葡萄糖诱导型启动子PHXT1替换天然ERG9启动子(图4C)。然后,通过在发酵过程中动态调控碳源比例(半乳糖/葡萄糖;gal/glu)来沉默ERG9表达。当碳源中gal与glu的比例为9:1时,LP产量比菌株LD601增加了52.53%(图4A和B)。后续发酵中采用9:1(gal/glu)的碳源比例。过表达酵母转录因子UPC2-1导致MVA途径中ERG13、ERG12和ERG8上调(图3)。因此,IPP和DMAPP的供给显著增加。此外,我们尝试在LD703菌株基础上过表达UPC2-1基因,观察到菌株生长停滞且LP滴度大幅下降。这与在Ogataea polymorpha酵母底盘中山梨烯倍半萜的生产一致。原因可能是代谢紊乱。HMG1是MVA途径的限速酶(图3)。在氨基酸残基530处截短tHMG1可有效消除麦角甾醇的反馈抑制,从而增强通过MVA途径的代谢流。IDI1基因促进IPP和DMAPP之间的异二聚化。与菌株LD703相比,tHMG1和IDI1的组合模块菌株未显示LP积累增加。这表明在二萜底盘菌株的构建中,tHMG1和IDI的表达不是直接限速的。将ERG10、ERG20组合模块过表达整合到酵母基因组DPP1Δ位点,试图将碳代谢重定向至MVA途径,LP滴度为38.78 ± 1.67 mg/L(图4A)。然而,二萜滴度未达到预期,可能是由于酵母自身前体GGPP供给不足。因此,我们将异源GGPP合酶(CrtE)引入酿酒酵母MVA途径。经酿酒酵母密码子优化后整合到酵母TRP1Δ位点。LP滴度达到102.08 ± 8.36 mg/L,增加了163.22%(图4A、4D和4E)。由于通向二萜合成的代谢流增强,观察到以下二萜化合物的产量显著增加:山达海松二烯(化合物1)、香叶基香叶基-14-醇(化合物2)、沼泽二烯(化合物3)、左旋海松二烯(化合物4)、新松香二烯(化合物5)、脱氢松香烷(化合物6)、松香二烯(化合物7)、香叶基香叶醇(GGOH,化合物8)和(+)古巴醇((+) COH,化合物9)。此外,LP占二萜产物的50.30%(图4A、4D、4E)(图S1、S2)。为进一步缓解MVA途径的限速步骤,我们尝试过表达HMG1同工酶突变体HMG2∗(HMG2 K6R),从而增强IPP和DMAPP的供给。随后,经MVA途径优化后,菌株LD122的LP滴度达到210.91 ± 18.39 mg/L(图4A)。比未优化的相同菌株高20.16倍。这表明HMG2∗在构建用于二萜发酵的工程酿酒酵母底盘菌株中显示出显著优势。然而,在菌株LD111和LD122中观察到生长停滞。从YPD培养基切换到Delft培养基后,生长停滞持续存在,LP滴度下降56.8%(图4F)。表达大量非必需蛋白导致的代谢紊乱可能导致菌株生长停滞现象。为恢复菌株的顺利生长,我们使用GAL启动子动态调控MVA途径。此外,我们使用强启动子PTDH3启动MBP-ggggs-t79LPSM593I;Y700F的表达,并将其整合到多拷贝转座子Ty3位点(菌株LD131)(图4H)。幸运的是,菌株生长恢复,LP滴度达到560.6 ± 10.88 mg/L(图4G),比起始菌株LD502高53.6倍。在LD111和LD122菌株中,尽管LP含量与对照菌株LD909相比显著增加(图4A–表S4),但我们观察到菌株生长明显受到抑制。这些结果表明,CrtE和HMG2∗的过表达正向促进酿酒酵母中LP的生产。然而,当CrtE和HMG2与其他MVA途径限速酶共表达时,菌株生长受到严重抑制。我们推测这些条件下的代谢失衡导致生长停滞。对于CrtE和HMG2∗,我们分别采用GAL1和GAL10启动子诱导其表达,同时使用多拷贝Ty3转座子整合位点和强组成型启动子PTDH3驱动MBP-t79LPSM593I;Y700F的表达。这种模块化组合实现了高滴度的LP。此外,它为构建用于生产其他二萜类化合物的酿酒酵母底盘菌株提供了策略参考。
【数据】菌株:LD601、LD703、LD111、LD122、LD131、LD909;LP滴度:LD601 +52.53%(gal/glu 9:1)、LD122 210.91 ± 18.39 mg/L(20.16倍)、LD131 560.6 ± 10.88 mg/L(53.6倍)、CrtE整合株 102.08 ± 8.36 mg/L(+163.22%)、ERG10+ERG20模块 38.78 ± 1.67 mg/L;LP占二萜产物:50.30%;Delft培养基LP下降:56.8%;启动子:PHXT1、PGAL1、PGAL10、PTDH3;整合位点:DPP1Δ、TRP1Δ、Ty3;突变:HMG2 K6R、ERG20 F96C
3.3 工程菌株碳源代谢的调控
酿酒酵母对碳源代谢有严格的调控策略,例如半乳糖代谢是最重要的碳源之一。Gal4p-Gal80轴和Snf1p/Mig1p网络调控酵母中的半乳糖代谢。Gal4p是一种转录激活因子,结合上游激活序列(UAS)以启动GAL启动子的转录。当葡萄糖存在时,转录被Gal80p抑制。
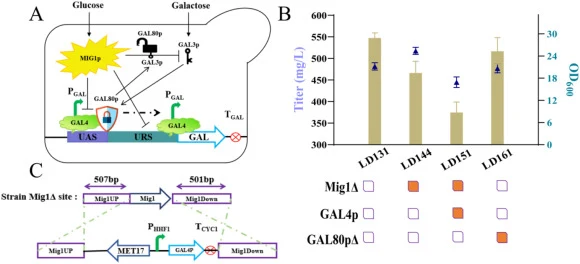
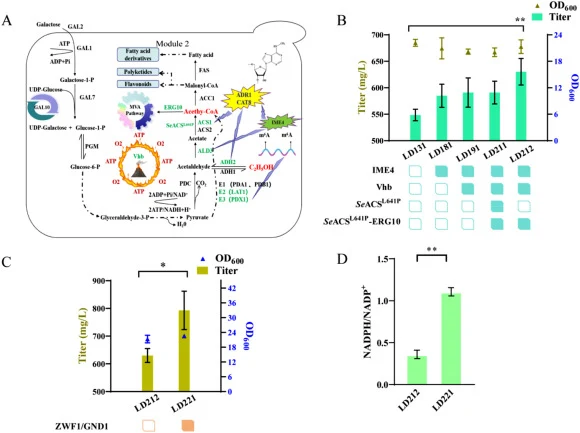
【数据】调控因子:Gal4p、Gal80p、Snf1p、Mig1p;启动子:GAL启动子;碳源:半乳糖、葡萄糖
3.4 补料分批发酵
对菌株LD221进行补料分批发酵评估其生物积累能力。所有数据均来自三次生物学重复实验。所有实验均以n = 3生物学独立重复进行。误差棒表示标准差(SD)。
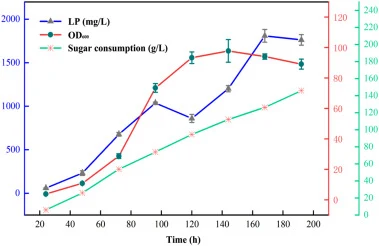
【数据】菌株:LD221;重复数:n = 3;误差棒:标准差(SD);发酵方式:补料分批
讨论与解读
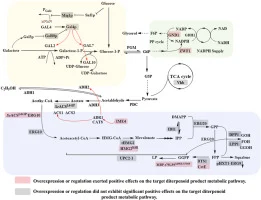
本研究通过代谢工程改造酿酒酵母基础菌株的代谢流,生产银杏内酯和LPA前体LP。最终补料分批发酵滴度达到1809.32 ± 72.32 mg/L,为目前报道的最高值。利用来自四个物种的基因,操纵了超过25个遗传元件,包括过表达、启动子修饰和敲除。同时,这项工作为在酿酒酵母细胞工厂中生产其他高附加值二萜类化合物建立了基础框架。
编译者解读:该研究的核心策略在于"模块化"——将LPS改造、MVA途径调控和碳源代谢重编程拆分为独立模块逐一优化,再通过GAL启动子和Ty3多拷贝整合实现动态平衡。这种"先解耦再组装"的思路有效规避了单一强启动子过表达导致的代谢失衡和生长停滞,对合成生物学中复杂途径的底盘构建具有参考价值。局限在于,LP仅占二萜总产物的50.30%,副产物种类多达9种,后续需进一步收窄代谢流;此外,菌株在Delft培养基中滴度下降56.8%的现象提示发酵条件与遗传改造之间存在尚未解析的互作。
参考来源
期刊:Synthetic and Systems Biotechnology, 2026
DOI: 10.1016/j.synbio.2026.01.018
DOI: 10.1016/j.synbio.2026.01.018