来源:Metabolic engineering of endogenous MEP pathway for enhanced lycopene production in Escherichia coli(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
番茄红素是异戊二烯家族中重要的高亲脂性类胡萝卜素,在食品、化妆品和农业领域应用广泛。本研究将源自极端微生物乌鲁木齐奇异球菌R12的番茄红素合成关键基因crtE、crtB和crtI导入大肠杆菌,构建底盘菌株H0。通过发酵优化发现丙酮酸钠可显著提升番茄红素产量与细胞生长,并利用qPCR揭示其对MEP途径相关基因的差异调控。进一步筛选不同来源的dxs、dxr、idi和ispA基因进行共表达,最优组合使番茄红素产量达到293.70 mg/L(112.49 mg/g DCW),较初始菌株提高33.88倍。
研究背景
番茄红素是异戊二烯家族的重要成员,是一种高度亲脂的红色类胡萝卜素,存在于多种植物和微生物中。凭借其强抗氧化和清除自由基以保护吞噬细胞免受氧化损伤的独特生理活性,番茄红素在食品、化妆品、农业等领域得到广泛应用。番茄红素不仅可通过植物提取或化学合成获得,还可通过微生物生物合成。其生物合成过程是一条涉及多种酶和辅因子的多步反应代谢途径,以异戊烯基焦磷酸(IPP)和二甲基烯丙基焦磷酸(DMAPP)为前体。
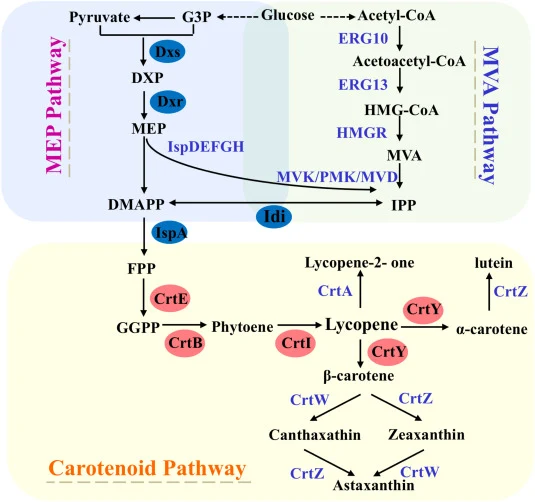
生物体中合成IPP和DMAPP的主要途径包括原核生物和植物中的2-甲基-d-赤藓醇-4-磷酸(MEP)途径以及真核生物中的甲羟戊酸(MVA)途径。MEP途径以丙酮酸和3-磷酸甘油醛(G3P)为起点,经1-脱氧-d-木酮糖-5-磷酸合酶(由dxs编码)和1-脱氧-d-木酮糖-5-磷酸还原酶(由dxr编码)催化形成MEP,随后由五种酶(分别由ispD、ispE、ispF、ispG和ispH编码)催化形成IPP和DMAPP。MVA途径则始于乙酰辅酶A,经乙酰辅酶A乙酰转移酶(由ERG10编码)和羟甲基戊二酰辅酶A合酶等催化生成3-羟基-3-甲基戊二酰单酰辅酶A(HMG-CoA)。
研究方法
2.1 菌株、质粒与培养基
大肠杆菌BL21 (DE3)用于番茄红素生物合成基因的表达及番茄红素发酵。本研究所用质粒和菌株列于表S1。2 YT培养基(酵母提取物10 g/L、胰蛋白胨16 g/L、氯化钠5 g/L)用作基因工程菌的种子培养基和发酵培养基。重组大肠杆菌在2 YT液体培养基中于37 °C、200 rpm培养12 h,以2%接种量接种至50 mL新鲜发酵培养基中。在37 °C、200 rpm黑暗条件下培养2 h后,加入4 g/L乳糖进行诱导,并将发酵温度改为20 °C以启动番茄红素生产。重组菌株在含适当抗生素(50 μg/mL氨苄青霉素或25 μg/mL硫酸卡那霉素)的培养基中培养。测定细胞干重(DCW)时,取1 mL样品于12,000×g离心5 min,沉淀用去离子水洗涤两次,再次离心后于100 °C干燥至恒重。液体培养基中的溶解氧(DO)采用配备DO电极的便携式溶解氧仪(NineFocus NF4000,Mettler Toledo,瑞士)测定。摇瓶中的DO通过插入培养基的DO电极直接测量。
【数据】菌株:大肠杆菌BL21 (DE3);培养基:2 YT(酵母提取物10 g/L、胰蛋白胨16 g/L、氯化钠5 g/L);温度:37 °C培养/20 °C发酵;转速:200 rpm;时间:种子培养12 h;接种量:2%;诱导剂:4 g/L乳糖;抗生素:50 μg/mL氨苄青霉素或25 μg/mL硫酸卡那霉素;DCW测定:12,000×g离心5 min,100 °C干燥至恒重
2.2 DNA操作与质粒构建
克隆所用引物列于表S2。为优化多基因共表达,采用携带pBR322复制起点的中拷贝pETDuet-1质粒。乌鲁木齐奇异球菌R12的crtE、crtB和crtI基因通过PCR从先前构建的质粒pET-IE1B1中扩增获得,并依次克隆至两个T7启动子下游。crtEB片段通过重叠PCR连接crtE和crtB基因获得,其中crtB基因带有核糖体结合位点SD+AS序列(TAAGGAGGATATACAT)。将crtI连接至pETDuet-1质粒的第一个多克隆位点(MCS1),crtEB连接至第二个多克隆位点(MCS2),经双酶切获得重组质粒pET-IEB(图S1a)。将重组质粒pET-IEB转化至大肠杆菌BL21 (DE3)中获得产番茄红素菌株H0。为构建CrtE、CrtB和CrtI的多拷贝重组质粒及重组菌株,将crtE、crtB和crtI基因克隆至pRSFDuet-1质粒,然后转入底盘菌株H0,分别获得重组菌株H0E、H0B和H0I(图S1b)。将含大肠杆菌MG1655的dxs、dxr、idi和ispA基因以及乌鲁木齐奇异球菌R12的R12dxs、R12dxr、R12idi和R12ispA基因的单基因表达载体和多基因共表达载体分别转化至菌株H0,获得相应的双质粒重组菌株(图S1c和d)。
【数据】质粒:pETDuet-1(pBR322复制起点)、pRSFDuet-1;基因来源:乌鲁木齐奇异球菌R12(crtE、crtB、crtI、R12dxs、R12dxr、R12idi、R12ispA)、大肠杆菌MG1655(dxs、dxr、idi、ispA);RBS序列:TAAGGAGGATATACAT;克隆位点:MCS1、MCS2;菌株:H0、H0E、H0B、H0I
2.3 番茄红素提取与检测
发酵液于12,000 rpm离心1 min,用ddH₂O洗涤两次,弃上清,加入1 mL含1 g/L 2,6-二叔丁基-4-甲基苯酚(BHT)的丙酮溶液进行番茄红素提取。离心获得上清液,采用高效液相色谱(HPLC)测定番茄红素含量。数据为三次独立实验的平均值±标准差。
【数据】离心:12,000 rpm,1 min;提取溶剂:1 mL丙酮含1 g/L BHT;检测方法:HPLC;重复次数:三次独立实验
2.4 实时定量PCR(qRT-PCR)分析
使用EASYspinPLus细菌RNA快速提取试剂盒(Aidlab,中国)从样品中分离总RNA。使用Hifair® II 1st Strand cDNA Synthesis SuperMix for qPCR(Yeasen Biotechnology,中国)合成cDNA。使用Hieff UNICON® qPCR SYBR Green Master Mix(Yeasen Biotechnology,中国)进行实时定量PCR扩增。本研究所用引物列于表S2。实验设计包括含25 g/L丙酮酸钠的组和不添加丙酮酸钠的对照组。接种后48 h通过离心(8000×g,10 min,4 °C)收集细菌细胞用于qPCR。以idnT基因作为相对定量的内标。相对定量分析按2−△△Ct方法评估。
【数据】丙酮酸钠浓度:25 g/L;离心条件:8000×g,10 min,4 °C;取样时间:接种后48 h;内标基因:idnT;定量方法:2−△△Ct
2.5 菌株H21的稳定性
菌株H21在最优发酵条件下培养,按先前描述的方法测定其稳定性。培养物每48 h在2 YT培养基中传代一次,共10个循环以评估遗传稳定性。收集培养物,用2 YT培养基稀释10⁴倍,然后涂布于2 YT琼脂平板,在37 °C下培养16 h(含或不含抗生素),测定菌落形成单位(CFUs)。质粒稳定性以抗生素抗性CFUs与总CFUs的比值计算。
【数据】传代间隔:每48 h;传代次数:10个循环;稀释倍数:10⁴倍;平板培养:37 °C,16 h;稳定性计算:抗生素抗性CFUs/总CFUs
2.6 统计分析
每组实验平行进行三次,误差棒代表标准差。使用Origin 2023和SPSS 21.0软件进行单因素方差分析(One-way ANOVA)显著性差异分析。不同处理组间采用Tukey's检验比较,不同小写字母表示统计学显著差异(p < 0.05)。
【数据】重复次数:三次平行;软件:Origin 2023、SPSS 21.0;统计方法:One-way ANOVA、Tukey's检验;显著性阈值:p < 0.05
研究结果
3.1 异源番茄红素合成底盘菌株的构建
为获得具有番茄红素生产能力的菌株,从乌鲁木齐奇异球菌R12中扩增番茄红素生物合成基因crtE、crtB和crtI,并依次整合至质粒pETDuet-1中获得重组质粒pET-IEB(图S1a)。将所得重组质粒pET-IEB转化至大肠杆菌BL21 (DE3)中,产生工程菌株H0,作为番茄红素合成的底盘菌株。为进行初步番茄红素产量评估,将菌株H0在2 YT培养基中于37 °C、200 rpm、2%接种量、黑暗条件下培养,并对产物进行检测。结果显示,菌株H0具有生产番茄红素的能力,在36 h时番茄红素产量最高达到8.67 mg/L(4.78 mg/g DCW)(图S2)。随后,系统考察了碳源、氮源、发酵时间、诱导剂浓度和诱导温度等外部培养条件对番茄红素产量的影响。如图S3a所示,在2 YT培养基中补充丙酮酸钠和甘油后,番茄红素滴度较对照提高。此外,添加丙酮酸钠还显著提高了细胞生物量,OD600较对照增加近2倍(11.94 vs. 6.05)。相比之下,其他碳源(甘油、乳糖、蔗糖、葡萄糖、果糖、麦芽糖)未能提高番茄红素滴度,其中葡萄糖和果糖表现出抑制作用。评估了不同浓度丙酮酸钠对番茄红素合成的影响。结果显示,当丙酮酸钠浓度低于25 g/L时,番茄红素产量随浓度增加而增加;当浓度高于25 g/L时,产量随浓度增加而下降。在丙酮酸钠浓度为25 g/L时,36 h番茄红素滴度最高达到18.16 mg/L(4.13 mg/g DCW),同时菌株H0的OD600也达到最大值12.57(图S3b)。氮源筛选通过在基础培养基中补充2 g/L候选化合物(牛肉膏、玉米浆、尿素、草酸铵、硫酸铵、氯化铵)进行。如图S3c所示,未添加其他氮源的对照组番茄红素产量最高,为18.42 mg/L(4.67 mg/g DCW)。这些结果表明,2 YT培养基中酵母提取物和胰蛋白胨的复合混合物提供了最优氮源组成。与对照相比,添加任何单一氮源均未提高番茄红素产量。草酸铵和氯化铵等无机氮源强烈抑制番茄红素合成。在细胞生长方面,添加草酸铵和氯化铵的OD600不如其他组。番茄红素滴度和细胞生物量随接种量增加(1–5% v/v)呈下降趋势。使用1%接种量时,36 h番茄红素滴度最高(20.82 mg/L,4.65 mg/g DCW),48 h生物量峰值达到13.96(图S3d)。丙酮酸钠作为新发现的有效番茄红素生物合成碳源,显著提高了番茄红素滴度。这是因为丙酮酸具有双重作用:(1)作为上游MEP途径的直接底物(图1),(2)促进细胞生物量,从而提高番茄红素滴度。我们推测,丙酮酸钠浓度过低时细菌无法充分生长,而浓度过高时则受到高底物胁迫影响,从而影响番茄红素产量。葡萄糖对番茄红素生物合成表现出强烈抑制作用,可能通过抑制T7诱导表达系统中的T7 RNA聚合酶,从而抑制目标蛋白表达。类似地,Lee等人发现向培养基中添加葡萄糖强烈抑制类胡萝卜素的产生。此外,乳糖也抑制番茄红素生物合成,这是因为我们的发酵过程由乳糖诱导,糖酵解中间产物可能干扰lac操纵子激活,从而抑制异源基因表达。与先前研究(包括我们自己的研究)一致,甘油已被确定为重组大肠杆菌中番茄红素合成的最优碳源,主要因为它是上游MEP途径起始底物G3P的最接近物质。在本研究中,甘油补充并未显著提高番茄红素产量。此外,麦芽糖也被观察到抑制番茄红素产量,这与先前发现一致。我们推测麦芽糖的抑制作用可能归因于碳分解代谢物阻遏(CCR),这是一种已被充分记录的现象,即易代谢糖类如葡萄糖以及其他碳水化合物包括甘油、麦芽糖、甘露糖、蔗糖和木糖,负调控次级代谢产物的合成。无机氮源,特别是草酸铵和氯化铵,抑制了细胞生长和番茄红素产量。相反,有机氮源因其复杂的营养成分(包括氨基酸、肽和必需碳水化合物衍生物)而提高了生物量生产力。无机氮源(草酸铵和氯化铵)为单一组分,仅含不超过生长最低要求的营养物质,同化效率较低。此外,微生物对无机氮源的代谢引发铵离子的逐步积累,对细菌生长和色素生物合成产生负面影响。接种量影响微生物生长速率,进而影响目标产物的生物合成。接种密度不足会因初始生物量不足而延长菌株的滞后期,而接种量过大则加速菌株的指数生长,导致早期培养阶段溶解氧耗尽。在本研究中,评估了接种量(1–5%)对番茄红素滴度及不同接种量下溶解氧浓度的影响。溶解氧测量显示,1%接种时,DO水平在发酵14 h内降至0%。此外,随着接种量增加,DO浓度下降速率加快。当接种量提高至5%时,DO在10 h时已降至0%(图S3e)。较高接种浓度(≥2%)导致接种早期氧气快速耗尽,引起后续发酵阶段代谢抑制和生长停滞。相比之下,1%接种时溶解氧浓度下降较慢,维持了微生物生长,从而使番茄红素滴度最大化。
【数据】菌株:H0;番茄红素产量:8.67 mg/L(4.78 mg/g DCW)@36 h;丙酮酸钠最优浓度:25 g/L;最优产量:18.16 mg/L(4.13 mg/g DCW)@36 h;OD600:12.57;对照OD600:6.05(丙酮酸钠组11.94);氮源对照产量:18.42 mg/L(4.67 mg/g DCW);1%接种量产量:20.82 mg/L(4.65 mg/g DCW)@36 h;生物量峰值:13.96@48 h;DO降至0%时间:1%接种14 h、5%接种10 h
3.2 两阶段发酵策略在底盘菌株H0番茄红素生产中的应用
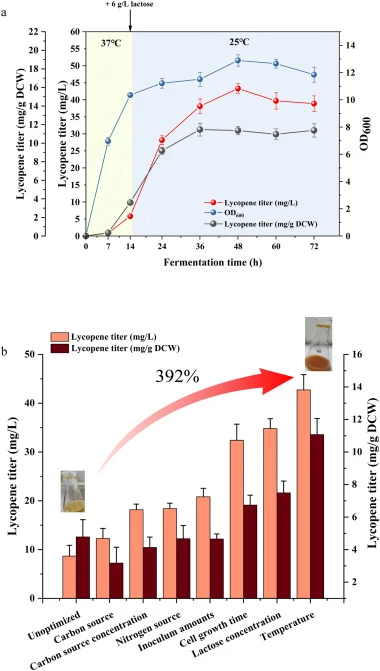
采用两阶段发酵策略测定细胞生长时间对重组菌株H0番茄红素产量的影响。第一阶段在37 °C培养(2–16 h)进行生物量积累,随后在25 °C诱导第二阶段进行产物生物合成(图S4a)。H0的OD600和番茄红素滴度均随第一阶段培养时间延长而增加。当第一阶段培养时间为14 h时,接种48 h后番茄红素滴度达到最大值32.41 mg/L(6.74 mg/g DCW)。将第一阶段细胞生长时间进一步延长至超过14 h后……
【数据】第一阶段温度:37 °C;第一阶段时间:2–16 h;第二阶段温度:25 °C;最优第一阶段时间:14 h;番茄红素滴度:32.41 mg/L(6.74 mg/g DCW)@48 h
3.3 丙酮酸钠对番茄红素产量及基因表达的影响
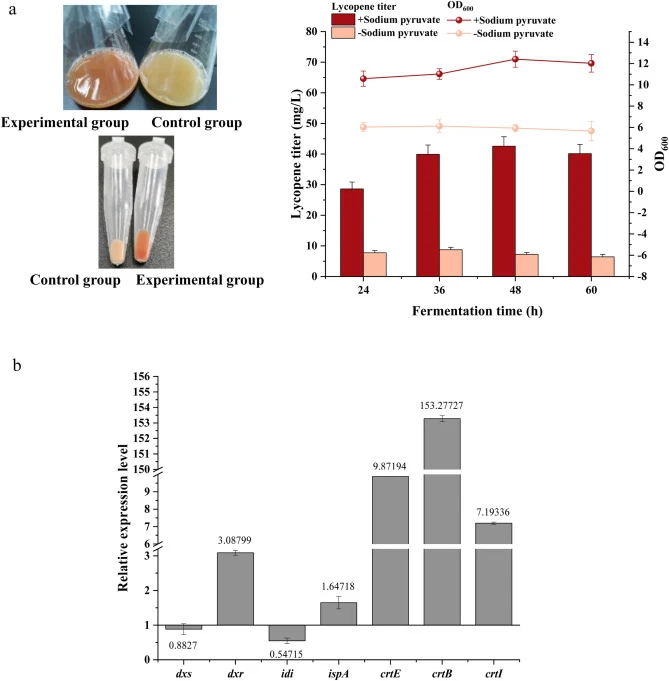
为探究丙酮酸钠促进番茄红素合成的机制,对实验组(含25 g/L丙酮酸钠)和对照组进行qRT-PCR分析。图3a显示,实验组番茄红素产量和细胞密度均高于对照组。图3b展示了实验组中dxs、dxr、idi、ispA、crtE、crtB和crtI基因的相对表达水平。结果表明,丙酮酸钠上调了dxr、ispA、crtE、crtB和crtI基因的表达,同时下调了dxs和idi基因的表达。
【数据】丙酮酸钠浓度:25 g/L;上调基因:dxr、ispA、crtE、crtB、crtI;下调基因:dxs、idi
3.4 crtE、crtB和crtI过表达对番茄红素产量的影响
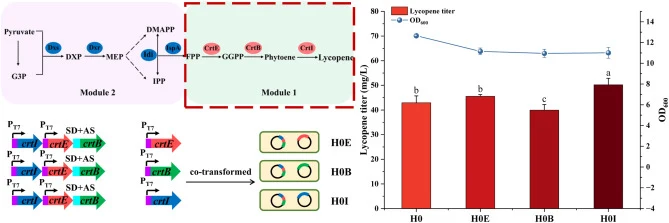
为研究番茄红素合成途径中关键基因的剂量效应,将crtE、crtB和crtI基因分别克隆至pRSFDuet-1质粒并转入底盘菌株H0,获得重组菌株H0E、H0B和H0I。图4显示了crtE、crtB和crtI过表达对番茄红素产量的影响。
【数据】菌株:H0E、H0B、H0I;质粒:pRSFDuet-1
3.5 不同来源dxs、dxr、idi和ispA基因的筛选与共表达
为强化大肠杆菌MEP途径,筛选了不同来源的dxs、dxr、idi和ispA基因并进行共表达。将含大肠杆菌MG1655的dxs、dxr、idi和ispA基因以及乌鲁木齐奇异球菌R12的R12dxs、R12dxr、R12idi和R12ispA基因的单基因表达载体和多基因共表达载体分别转化至菌株H0,获得相应的双质粒重组菌株。图5展示了菌株H0、H0R12dxs、H0dxs、H0R12dxr、H0dxr、H0R12idi、H0idi、H0R12ispA、H0ispA的发酵数据和丙酮提取物。
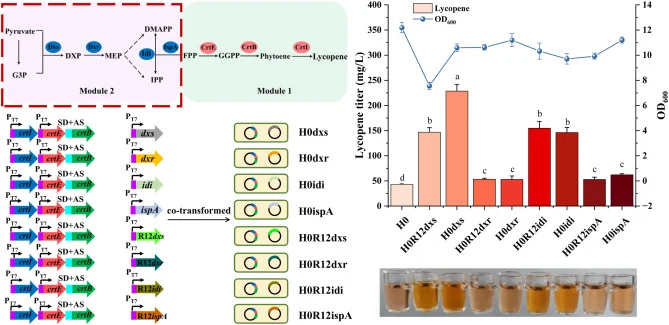
【数据】菌株:H0、H0R12dxs、H0dxs、H0R12dxr、H0dxr、H0R12idi、H0idi、H0R12ispA、H0ispA;基因来源:大肠杆菌MG1655(dxs、dxr、idi、ispA)、乌鲁木齐奇异球菌R12(R12dxs、R12dxr、R12idi、R12ispA)
3.6 最优基因组合的发酵验证
图6展示了菌株H0、H21、H22、H23、H31、H32、H4的发酵数据和丙酮提取物。优化组合(大肠杆菌MG1655的dxs与乌鲁木齐奇异球菌R12的idi)实现了最大番茄红素滴度293.70 mg/L(112.49 mg/g DCW),较初始菌株H0提高33.88倍。
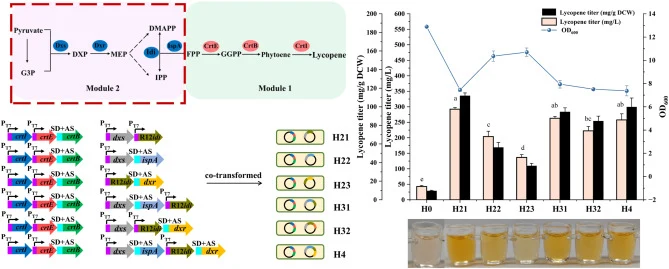
【数据】菌株:H0、H21、H22、H23、H31、H32、H4;最优组合:dxs(大肠杆菌MG1655)+ idi(乌鲁木齐奇异球菌R12);最大番茄红素滴度:293.70 mg/L(112.49 mg/g DCW);较H0提高倍数:33.88倍
3.7 菌株H21的稳定性评估
菌株H21在最优发酵条件下培养,每48 h在2 YT培养基中传代一次,共10个循环以评估遗传稳定性。培养物稀释10⁴倍后涂布于2 YT琼脂平板,在37 °C下培养16 h(含或不含抗生素),测定菌落形成单位(CFUs)。质粒稳定性以抗生素抗性CFUs与总CFUs的比值计算。
【数据】传代间隔:每48 h;传代次数:10个循环;稀释倍数:10⁴倍;平板培养:37 °C,16 h;稳定性指标:抗生素抗性CFUs/总CFUs
讨论与解读
本研究通过异源表达乌鲁木齐奇异球菌R12来源的crtE、crtB和crtI基因,在大肠杆菌中成功构建了番茄红素合成底盘菌株H0。发酵优化揭示了丙酮酸钠作为碳源的双重作用——既是MEP途径的直接底物,又能促进细胞生物量积累。qPCR分析表明丙酮酸钠对MEP途径基因的调控具有选择性:上调dxr、ispA及番茄红素合成基因crtE、crtB、crtI,同时下调dxs和idi。基于此,研究者筛选了不同来源的dxs、dxr、idi和ispA基因进行共表达,发现大肠杆菌MG1655来源的dxs与乌鲁木齐奇异球菌R12来源的idi组合效果最优,使番茄红素产量达到293.70 mg/L(112.49 mg/g DCW),较初始菌株提高33.88倍。该研究为异源类胡萝卜素合成提供了基因资源,并为类似复杂异戊二烯类代谢产物的合成建立了参考框架。
编译者解读:该研究采用"底盘构建—发酵优化—基因筛选—组合验证"的经典代谢工程策略,核心亮点在于利用极端微生物来源的crt基因与内源MEP途径的协同强化。丙酮酸钠的添加策略兼具底物供给与基因调控双重功能,体现了合成生物学中"一石二鸟"的巧妙设计。然而,研究仅停留在摇瓶水平,未涉及发酵罐放大与溶氧精确控制;质粒稳定性虽经10次传代验证,但双质粒系统的工业应用仍面临抗生素依赖与质粒丢失风险。未来可考虑染色体整合与无质粒系统的构建以提升工艺稳健性。
参考来源
期刊:Synthetic and Systems Biotechnology, 2026
DOI: 10.1016/j.synbio.2026.01.014
DOI: 10.1016/j.synbio.2026.01.014