来源:Genome-integrated engineering of Escherichia coli Nissle 1917 enables sustained gut-local biosynthesis of 5-hydroxytryptophan(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
5-羟色氨酸(5-HTP)是血清素(5-HT)的直接生物合成前体,能够穿越血脑屏障调节中枢神经系统功能。然而,如何通过工程化微生物在体内实现持续、稳定的5-HTP供给,仍是一个未解难题。本研究以临床验证的益生菌大肠杆菌Nissle 1917(EcN)为底盘,采用基因组整合策略替代传统质粒表达,构建了BH4依赖型5-HTP生物合成系统。工程菌株在非选择性条件下实现了863.2 mg/L的5-HTP产量,为目前EcN体系报道的最高水平,并在肠道传代后保持生产能力。在利血平诱导的小鼠模型中,该工程益生菌改善了行为表型并调节了脑内5-HT相关代谢物。
研究背景
5-HTP是色氨酸代谢通路中的关键中间体,也是中枢神经递质血清素的直接前体。血清素参与神经元活动、认知过程和情绪调控,而5-HTP因其能够穿越血脑屏障并调节全身血清素水平,在营养学和生理学领域受到广泛关注。然而,当前5-HTP的供给策略主要依赖外源补充,由于清除速度快、全身暴露波动大,难以提供稳定可控的体内可用性。传统生产方法——如从加纳籽中植物提取——受限于规模化能力和供应稳定性。这些局限凸显了对能够实现持续、可控5-HTP供给的替代策略的需求。
近年来,肠道色氨酸代谢在通过神经、免疫和代谢途径调控宿主生理方面的重要性被逐步揭示,使肠道色氨酸代谢成为治疗性干预的潜在靶点。随着合成生物学的进步,工程化微生物已成为在复杂生物环境中原位合成功能性小分子的有前景的平台。在此背景下,本研究选择EcN作为底盘——该菌株是经过临床验证的益生菌,具有明确的肠道应用安全性。研究采用组成型表达消除诱导剂依赖,利用基因组整合增强遗传稳定性并避免对抗生素选择的依赖。同时引入BH4生物合成和再生模块,以解决肠道环境中内源性BH4可用性有限的问题。研究系统评估了不同给药策略以表征体内性能。
研究方法
2.1 化学品与试剂
利血平和血清素(5-HT)购自阿拉丁。色氨酸(Trp)、5-羟色氨酸(5-HTP)和5-羟基吲哚乙酸(5-HIAA)由麦克林生化科技有限公司提供。卡那霉素、氨苄青霉素、氯霉素、硫酸链霉素和异丙基-β-D-硫代半乳糖苷(IPTG)由生工生物提供。四氢生物蝶呤(BH4)和L-阿拉伯糖购自源叶生物科技有限公司。凝胶回收试剂盒和Phusion高保真DNA聚合酶购自Thermo Fisher Scientific。T4多核苷酸激酶(T4 PNK)、10× T4 DNA连接酶缓冲液、T4 DNA连接酶、DpnI和BsaI-HF购自New England Biolabs。质粒小提试剂盒购自天根生化科技。寡核苷酸合成、基因合成和质粒测序由擎科生物科技有限公司完成。
【数据】试剂来源:利血平/5-HT(阿拉丁);Trp/5-HTP/5-HIAA(麦克林);卡那霉素/氨苄青霉素/氯霉素/链霉素/IPTG(生工);BH4/L-阿拉伯糖(源叶);Phusion聚合酶/凝胶回收试剂盒(Thermo Fisher);T4 PNK/T4连接酶/DpnI/BsaI-HF(NEB);质粒小提试剂盒(天根);基因合成/测序(擎科)
2.2 菌株、质粒与基因构建
本研究使用的基因及其来源如下:编码GTP环水解酶I的mtrA基因来源于枯草芽孢杆菌。hTPH1和hTPH2基因编码色氨酸羟化酶,rPTPS编码6-丙酮酰四氢生物蝶呤合酶,rSPR编码墨蝶呤还原酶,hPCD编码蝶呤-4-α-甲醇胺脱水酶,hDHPR编码二氢蝶啶还原酶。基因序列由擎科生物科技有限公司合成。质粒pET28a(+)、pA7a(+)、pCas和pTargetF(根据BglBrick标准构建)用作基因克隆和表达的骨架载体。所有质粒构建均采用Golden Gate组装方法。大肠杆菌C3040、BL21(DE3)和大肠杆菌Nissle 1917用作克隆和表达的宿主菌株。重组质粒首先转化至大肠杆菌BL21(DE3)以验证遗传模块的功能。随后,将所有目标基因整合到EcN的染色体中。本研究使用的菌株、质粒、启动子和基因总结于补充表S3–S5。
【数据】基因来源:mtrA(枯草芽孢杆菌);hTPH1/hTPH2(人源色氨酸羟化酶);rPTPS/rSPR(大鼠源);hPCD/hDHPR(人源);骨架质粒:pET28a(+)、pA7a(+)、pCas、pTargetF;组装方法:Golden Gate;宿主菌株:E. coli C3040、BL21(DE3)、EcN;验证策略:先在BL21(DE3)验证后整合至EcN染色体
2.3 培养条件与发酵分析
LB培养基用于质粒构建和常规菌株培养。根据需要补充适当抗生素:卡那霉素(50 μg/mL)、链霉素(50 μg/mL)、氯霉素(30 μg/mL)和氨苄青霉素(100 μg/mL)。菌株从甘油保种中复苏,在37°C、220 rpm振荡培养12 h,随后接种至100 mL摇瓶中。当600 nm光密度(OD600)达到约0.6时,在大肠杆菌BL21(DE3)中表达的构建体通过添加0.5 mM IPTG诱导,培养温度降至22°C进行蛋白表达。由组成型启动子驱动的菌株直接在37°C、220 rpm振荡培养12 h,不添加任何诱导剂。培养12 h后,细胞通过离心收集,条件为3900 rpm、15 min、4°C。细胞沉淀用含5%(v/v)甘油的冰冷50 mM Tris-HCl缓冲液(pH 7.2)洗涤一次,再次离心收集。所得细胞沉淀重悬于0.5 mL相同Tris-HCl缓冲液中用于后续催化实验。体外生物催化反应在37°C进行。标准反应体系(总体积5 mL)包含50 mM HEPES/NaOH缓冲液(pH 7.2)、200 mM (NH4)2SO4、7 mM二硫苏糖醇(DTT)、50 μM (NH4)2Fe(SO4)2和0.025 g/L过氧化氢酶。底物包括2 g/L L-色氨酸和300 μM四氢生物蝶呤(BH4)。反应在37°C、220 rpm振荡条件下进行。这些反应条件改编自先前报道的研究。对于携带厌氧启动子的菌株,在密封厌氧瓶中诱导12 h后进行细胞收集。相比之下,携带组成型启动子的菌株在标准好氧振荡条件下培养12 h后收集用于催化反应。所有后续实验步骤与上述相同。对于同步生长和催化实验,使用M9培养基。LB和M9培养基的详细组成见补充表S1。
【数据】培养基:LB(常规培养)、M9(同步生长催化);抗生素浓度:卡那霉素50 μg/mL、链霉素50 μg/mL、氯霉素30 μg/mL、氨苄青霉素100 μg/mL;复苏条件:37°C、220 rpm、12 h;诱导条件:OD600≈0.6、0.5 mM IPTG、22°C;组成型培养:37°C、220 rpm、12 h;收菌条件:3900 rpm、15 min、4°C;洗涤缓冲液:50 mM Tris-HCl(pH 7.2)+5%甘油;催化反应体系:50 mM HEPES/NaOH(pH 7.2)、200 mM (NH4)2SO4、7 mM DTT、50 μM (NH4)2Fe(SO4)2、0.025 g/L过氧化氢酶;底物:2 g/L L-色氨酸、300 μM BH4;反应条件:37°C、220 rpm
2.4 HPLC分析
在指定时间点收集的样品通过离心澄清,条件为12,000 rpm、5 min、4°C。所得上清液通过0.22 μm聚醚砜(PES)注射器滤器过滤后装入HPLC样品瓶。5-HTP的定量使用Agilent 1260 Infinity II HPLC系统,配备Agilent Poroshell 120 EC-C18色谱柱(150 × 4.6 mm,4 μm)。色谱分离在30°C下进行,流速0.7 mL/min,流动相由10 mM磷酸钾缓冲液(pH 6.5)和甲醇组成。洗脱程序为90%(v/v)缓冲液和10%(v/v)甲醇的等度混合,总运行时间15 min。检测波长为276 nm,5-HTP和Trp的洗脱时间分别约为4.09和8.21 min。
【数据】离心条件:12,000 rpm、5 min、4°C;滤膜:0.22 μm PES;HPLC系统:Agilent 1260 Infinity II;色谱柱:Poroshell 120 EC-C18(150 × 4.6 mm,4 μm);柱温:30°C;流速:0.7 mL/min;流动相:10 mM磷酸钾缓冲液(pH 6.5)+甲醇(90:10,v/v);运行时间:15 min;检测波长:276 nm;洗脱时间:5-HTP约4.09 min、Trp约8.21 min
2.5 质粒稳定性实验
携带质粒的菌株在无抗生素培养基中连续传代4次。每次传代时,将培养物涂布于非选择性和含抗生素的琼脂平板上以测定质粒保留率。同时,在相同培养条件下测定5-HTP产量。
【数据】传代次数:4次;传代条件:无抗生素培养基;检测方法:非选择性/含抗生素平板计数;同步测定:5-HTP产量
2.6 肠道传代后5-HTP生产能力评估
在小鼠口服工程菌株后4 h和23 h收集粪便样品,在无菌PBS中匀浆,梯度稀释后涂布于选择性琼脂平板。回收的菌落在与亲本菌株相同的条件下培养,随后定量5-HTP产量以评估肠道传代后5-HTP生产能力的保留情况。
【数据】采样时间点:口服后4 h和23 h;样品处理:无菌PBS匀浆、梯度稀释、选择性平板涂布;评估指标:回收菌落的5-HTP产量
2.7 动物实验
所有动物实验均按照上海交通大学动物伦理委员会批准的伦理规范执行(方案编号:A2024423-002)。C57BL/6J小鼠和Sprague–Dawley(SD)大鼠购自BioMice公司。所有动物均饲养于无特定病原体(SPF)设施中,环境条件受控,包括温度22–24°C和12 h光/暗循环,标准饲料和水自由摄取。动物群养,每笼4–5只小鼠。分组分配随机进行,结果分析在适用时采用盲法。动物在取材前按照机构批准的程序实施安乐死。
【数据】伦理批号:A2024423-002;动物品系:C57BL/6J小鼠、SD大鼠;饲养条件:SPF级、22–24°C、12 h光/暗循环;群养密度:4–5只/笼;分组方式:随机分配;分析方式:盲法
2.8 不同给药条件下全身5-HTP水平检测
12只雄性SD大鼠(6–8周龄)随机分为四组(每组n = 3):(1)对照组。(2)工程大肠杆菌组(每只大鼠1 × 10^9 CFU的EcNPconst−5−HTP)。(3)色氨酸(Trp)组(饮水中供应0.48 mg/mL Trp)。(4)联合治疗组(饮水中0.48 mg/mL Trp加每只大鼠1 × 10^9 CFU的EcNPconst−5−HTP)。Trp浓度基于先前报道的研究选择。Trp连续给药两天,工程大肠杆菌每日一次灌胃给药。第二天,在灌胃后1 h和2 h采集血样。血样收集至含EDTA-K2作为抗凝剂的管中,在3,900 rpm、15 min、4°C条件下离心。血浆样品收集后保存于−80°C待分析。
【数据】动物:12只雄性SD大鼠(6–8周龄);分组:4组(n=3);工程菌剂量:1 × 10^9 CFU/只;Trp浓度:0.48 mg/mL(饮水);给药方案:Trp连续2天、工程菌每日1次灌胃;采血时间点:第2天灌胃后1 h和2 h;抗凝剂:EDTA-K2;离心条件:3,900 rpm、15 min、4°C;保存条件:−80°C
2.9 大鼠血浆5-HTP测定
大鼠随机分为三组(每组n = 4):载体组、上清液组和细胞培养组。工程菌株首先在LB培养基中培养至OD600约为1.0,离心收集,重悬于优化催化培养基中至终细胞密度OD600 = 100。催化培养基的完整组成见补充表。
【数据】分组:3组(n=4);培养条件:LB培养基至OD600≈1.0;重悬密度:OD600=100;催化培养基组成:见补充表
研究结果
3.1 BH4依赖型5-HTP生物合成模块的建立
为建立功能性5-HTP生物合成系统,我们构建了一条包含色氨酸羟化模块以及BH4生物合成和再生模块的通路(图1A)。5-HTP合成由人色氨酸羟化酶(hTPH)催化,而细胞内BH4供应由生物合成模块(mtrA、rPTPS、rSPR)和再生模块(hPCD、hDHPR)支持。鉴于人类表达两种功能相关但组织分布不同的色氨酸羟化酶同工型——hTPH1和hTPH2,这两种酶先前均被报道为微生物5-HTP和褪黑素生物合成的候选羟化模块。因此,我们在从大肠杆菌BL21(DE3)制备的粗细胞裂解物中比较了它们的5-HTP生产活性。表达hTPH2的菌株产生的5-HTP比表达hTPH1的菌株高约1.6倍(图1B)。该结果与先前微生物5-HTP生物合成研究一致,其中工程化hTPH2变体通常被用作羟化模块。由于全长hTPH1和hTPH2在细菌宿主中易形成不溶性包涵体,可溶性表达有限可能限制可用于5-HTP生物合成的功能性酶量。尽管本研究中未直接比较hTPH1和hTPH2的可溶性表达水平,但hTPH2构建体提供了更高的有效羟化能力,因此被选用于后续通路构建。为实现无需外源补充的持续细胞内BH4供应,将hTPH2、BH4生物合成模块(mtrA–rPTPS–rSPR)和再生模块(hPCD–hDHPR)组装成双质粒表达系统(图1C)。此外,使用CRISPR–Cas9在BL21(DE3)中敲除了内源性色氨酸酶基因tnaA——该酶同时降解色氨酸和5-HTP——以减少底物和产物损失。发酵分析表明,重组的BH4系统在体外有效发挥作用,tnaA敲除显著增强了5-HTP积累。发酵8 h后,携带双质粒系统的BL21(DE3) ΔtnaA菌株的5-HTP滴度比相应的tnaA完整对照菌株高约1.7倍(图1D)。一致地,ΔtnaA菌株实现了211.44 mg/L的5-HTP滴度,而BL21(DE3)双质粒菌株为121.56 mg/L,同时产率(0.44 vs 0.19 g/g底物)和生产率(26.43 vs 15.2 mg/L/h)均有所提高,表明生物合成效率整体改善(补充表S2)。总之,这些结果表明BH4依赖型5-HTP生物合成通路可通过协调酶选择和辅因子供应在细菌宿主中功能性重建,从而为后续在EcN中实施该通路提供了基础。
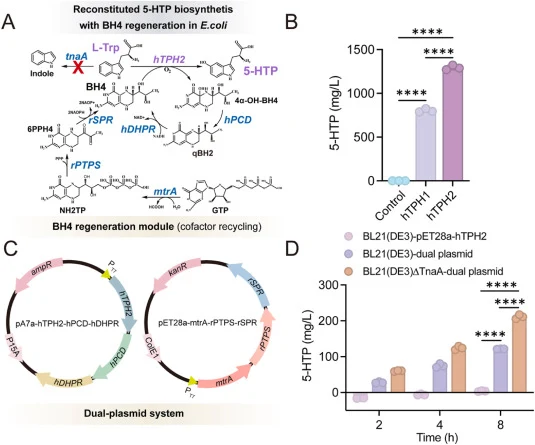
【数据】hTPH2 vs hTPH1产量比:约1.6倍;发酵时间:8 h;ΔtnaA菌株5-HTP滴度:211.44 mg/L;对照菌株滴度:121.56 mg/L;提升倍数:约1.7倍;产率:0.44 vs 0.19 g/g底物;生产率:26.43 vs 15.2 mg/L/h
3.2 EcN中5-HTP生产的表达优化
为实现体内稳健的5-HTP生产,我们将生物合成通路整合到EcN基因组中以克服质粒表达系统的局限。鉴于工程菌在肠道环境中面临的生存压力,以及质粒维持对抗生素选择的依赖——这可能破坏肠道菌群并引发生物安全担忧——该基因组整合策略可降低质粒丢失风险并最小化对可移动遗传元件的依赖,从而在非选择性条件下提高遗传稳定性。为进一步优化通路表达,我们比较了组成型启动子(Pconst)与厌氧诱导型启动子(Pfnrs),因为诱导型系统已被报道可增强某些代谢物的生产。考虑到tnaA敲除对宿主生理的潜在影响,构建了含和不含tnaA的菌株以评估其对生长和5-HTP生产率的影响。在基因间中性位点引入双标记系统(氯霉素抗性和GFP)以实现菌株追踪,同时最小化代谢负担(图2A)。通过启动子选择和tnaA敲除的组合,生成了四种工程菌株。在两种启动子配置下,tnaA完整的菌株产生的5-HTP滴度均高于tnaA敲除的对应菌株,这与在BL21(DE3)中观察到的结果相反。这一发现表明tnaA敲除的效果具有宿主依赖性,不应被泛化为跨大肠杆菌背景增强5-HTP生物合成的通用策略。在EcN中,tnaA敲除可能施加底盘特异性代谢约束,抵消了减少Trp和5-HTP降解的益处。在四种构建体中,EcNPconst−5−HTP产量最高(图2B和C),7 h后达到863.2 mg/L。该滴度比EcNΔtnaAPconst−5−HTP高约1.2倍,比EcNPfnrs−5−HTP高近两倍。与先前基于质粒的EcN系统(实现387.18 mg/L 5-HTP)相比,本研究中单拷贝染色体整合的EcN菌株在无质粒表达的情况下实现了大幅产量提升。这些发现表明BH4依赖型辅因子供应系统和所选酶组合支持EcN中高效的5-HTP生产。四种构建体的通路性能——包括5-HTP滴度、基于底物的产率和生产率——总结于补充表S2。尽管tnaA敲除在Pconst配置下提高了基于底物的产率(0.89 g/g),EcNPconst−5−HTP仍保持了最高的最终滴度和生产率(分别为863.2 mg/L和123.31 mg/L/h)。因此,tnaA敲除带来的转化效率提升并未转化为更高的总体5-HTP输出。Pfnrs下观察到的较低产量可能反映了厌氧条件下细胞适应度降低——较低的能量可用性和较慢的生长可能限制代谢能力并增加异源通路表达的负担。考虑到体外生长受损可能影响体内定植和功能表现,我们接下来检查了所有工程菌株的生长特性,以评估基因组整合和通路设计相关的潜在适应度代价。仅EcNΔtnaAPfnrs−5−HTP表现出明显的生长缺陷,表明tnaA敲除和厌氧诱导的组合施加了额外的代谢负担。其他菌株的生长与野生型EcN相当(图2D–F),Cm和GFP的基因组插入未引起可检测的生长损伤。为进一步评估确定营养限制条件下的通路性能,我们在M9培养基中评估了5-HTP生产。在这些条件下,5-HTP生物合成得以维持,EcNPconst−5−HTP和EcNΔtnaAPconst−5−HTP在36 h分别产生187.0和153.2 mg/L(图2G)。值得注意的是,两种菌株在24 h和36 h之间的5-HTP滴度未观察到显著差异,表明在营养限制条件下产量随时间持续。总之,这些结果确定EcNPconst−5−HTP为测试构建体中产量最高的菌株,同时未显示明显的生长相关适应度代价。该菌株因此被选用于后续遗传稳定性和体内性能评估。
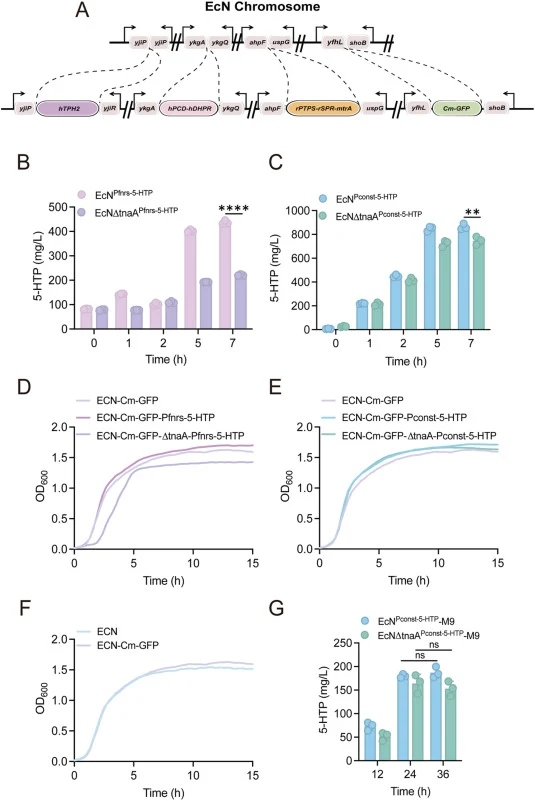
【数据】构建体数量:4种;最高产量菌株:EcNPconst−5−HTP;5-HTP滴度:863.2 mg/L(7 h);vs EcNΔtnaAPconst−5−HTP:约1.2倍;vs EcNPfnrs−5−HTP:近2倍;vs 先前质粒型EcN系统:387.18 mg/L;生产率:123.31 mg/L/h;tnaA敲除产率(Pconst):0.89 g/g;M9培养基产量(36 h):EcNPconst−5−HTP 187.0 mg/L、EcNΔtnaAPconst−5−HTP 153.2 mg/L;生长缺陷菌株:仅EcNΔtnaAPfnrs−5−HTP
3.3 非选择性条件下染色体整合5-HTP生物合成的稳定性
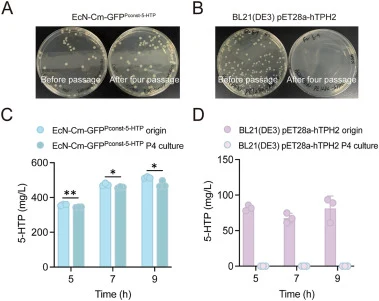
鉴于长期肠道递送不仅需要生产能力,还需要遗传和功能稳定性,我们接下来评估了5-HTP生物合成模块能否在非选择性条件下维持。先前的产5-HTP大肠杆菌系统使用基于质粒的表达以促进通路构建或提高产量;然而……
【数据】原文节选至此结束,后续内容未详述
讨论与解读
本研究在益生菌底盘EcN中建立了BH4依赖型5-HTP生物合成系统。与主要依赖质粒表达的传统微生物5-HTP生产策略不同,完整通路被整合到EcN染色体中,实现了无需抗生素选择或外源诱导的5-HTP生物合成。在单拷贝染色体整合下,该工程菌株实现了据我们所知EcN基5-HTP系统中的最高报道滴度,包括那些用于体内治疗应用评估的系统(图2)。非选择性传代和肠道再分离后5-HTP生产活性的保留进一步表明,高生产能力与功能稳定性可在同一EcN底盘中同时实现(图3和图S2)。值得注意的是,尽管EcN中5-HTP生物合成系统先前已有报道,本研究在辅因子系统、羟化模块和遗传实施策略上有所不同。先前报道的EcN系统采用MH4依赖型辅因子系统和定向进化衍生的XcP4H羟化酶,5-HTP生物合成由质粒表达驱动。相比之下,我们构建了BH4生物合成和再生模块,使用先前在高产5-HTP系统(BL21(DE3))中验证的工程化hTPH2变体作为羟化模块,并将完整通路整合至染色体。
编译者解读
该研究的核心价值在于将"基因组整合+组成型表达+辅因子自给"三重策略整合于临床级益生菌底盘,解决了质粒系统在体内应用中稳定性差、依赖抗生素选择的根本痛点。863.2 mg/L的单拷贝整合产量在EcN体系中属最高水平,且肠道传代后仍保持生产能力,展示了向转化应用推进的潜力。局限在于:体内单次给药仅引起血浆5-HTP短暂升高,重复给药的疗效依赖持续定植;tnaA敲除在EcN中反而降低产量,提示底盘特异性优化不可省略。从合成生物学角度看,该工作为"活体生物治疗药物"的遗传稳定性设计提供了可参考的范式。
参考来源
期刊:Synthetic and Systems Biotechnology, 2027
DOI: 10.1016/j.synbio.2026.08.002
DOI: 10.1016/j.synbio.2026.08.002