来源:Integrated transcriptomic and metabolomic analyses reveal terpene synthases LlTPS13 and LlTPS14 positively regulate β-ocimene biosynthesis in Lycoris longituba(International Journal of Biological Macromolecules)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
石蒜(Lycoris longituba)以芳香花瓣和动态花色变化著称,但其花香形成的生物合成途径与调控机制长期不明。本研究整合代谢组学与转录组学,在石蒜花发育五个阶段中鉴定出526种挥发性有机化合物(VOCs),发现萜类为最主要类别,甜香与青香贯穿整个发育过程。研究进一步锁定叶绿体定位的萜烯合酶LlTPS13和LlTPS14为β-罗勒烯生物合成的关键酶,并通过瞬时过表达实验验证其催化功能。该工作为石蒜花香分子育种提供了候选基因与调控网络。
研究背景
花瓣虽与叶片同源,却丧失了光合能力,转而演化出吸引传粉者的色彩、香气与形态。花香是决定被子植物繁殖成功与生态互作的关键因素,同时也深刻影响观赏园艺的消费偏好,具有可观的经济与美学价值。花香由低分子量、低沸点的挥发性次生代谢物构成,包括萜类、苯丙烷类/苯环型化合物、脂肪酸衍生物以及含硫含氮化合物。迄今植物中已鉴定约2000种花部挥发物,许多被广泛应用于医药、化妆品、香精和食品调味行业。VOCs通过吸引传粉者、介导空气信号以及调控植物与病原体及环境刺激的互作,发挥重要生物学功能。多数花香成分来源于内源生物合成途径,但石蒜花香的合成途径与调控机制此前研究甚少,限制了其芳香化合物的高效利用并推高了石蒜加工成本。为此,本研究以石蒜为对象,整合代谢组与转录组,系统解析花发育过程中VOCs的动态变化及β-罗勒烯生物合成的分子基础。
研究方法
2.1 植物材料
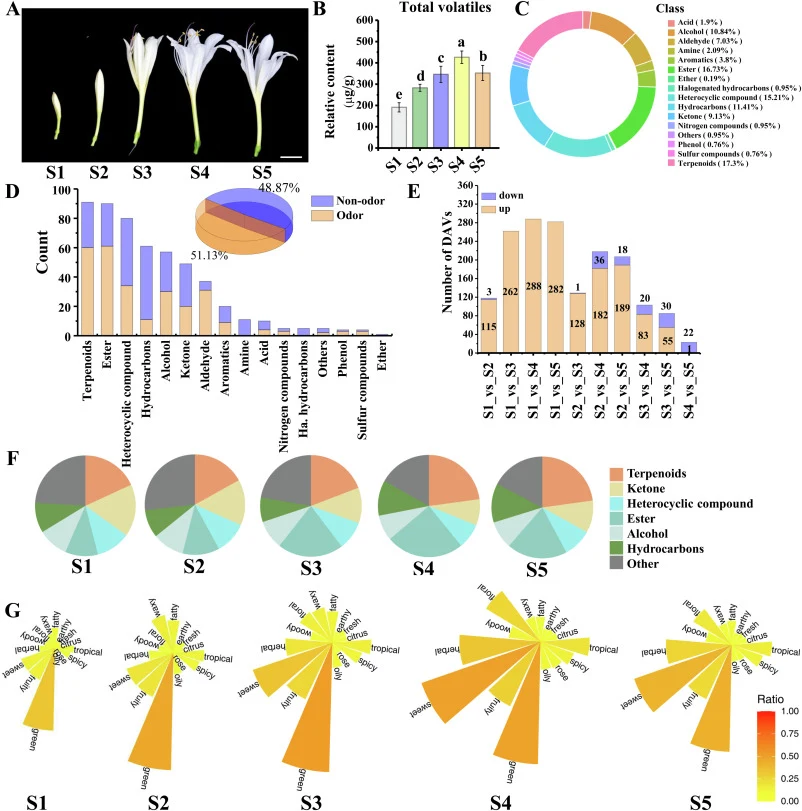
石蒜(Lycoris longituba)、L. squamigera、L. sprengeri和L. albiflora植株栽培于中国科学院江苏省植物研究所实验种植园(中国南京)。四种石蒜均于盛花期采集小花。石蒜小花在五个不同发育阶段采集:S1(花蕾期)、S2(花瓣露出期)、S3(开花前成熟花蕾期)、S4(盛花期)和S5(开花后一天)(图1A)。所有样品于2023年7月在约32 °C、40–55%相对湿度的环境条件下,于上午10:00至11:00之间采集。采集后立即用液氮冷冻,并于−80 °C保存,直至进行HS-SPME–GC–MS挥发性分析、RNA提取和RNA测序。VOC分析每个发育阶段制备六个独立生物学重复。RNA测序每个开花阶段采集三个独立生物学重复。每个生物学重复由来自三株个体的5–10朵小花混合组成。用于亚细胞定位分析的拟南芥植株在温室中培养,光周期为16 h光照/8 h黑暗,温度20–22 °C。为研究LlTPS基因的组织特异性表达模式,从石蒜中采集花茎、叶片、花瓣、花梗、种子、根、雄蕊、鳞茎和雌蕊。所有组织样品立即用液氮冷冻并于−80 °C保存直至进一步分析。
【数据】物种:L. longituba、L. squamigera、L. sprengeri、L. albiflora;发育阶段:S1–S5;采集时间:2023年7月10:00–11:00;温度:约32 °C;相对湿度:40–55%;储存温度:−80 °C;VOC分析重复数:6;RNA测序重复数:3;每重复小花数:5–10朵;拟南芥培养温度:20–22 °C;光周期:16 h光/8 h暗
2.2 样品采集与VOC GC–MS分析
花部样品采集后立即用液氮冷冻,精细匀浆后于−80 °C保存至分析。挥发物提取前,将冷冻样品在液氮下研磨成细粉。VOC提取按照先前描述的方案进行,并稍作修改(表S1)。共分析30个样品,包括四种石蒜的小花以及石蒜五个发育阶段(S1–S5)采集的小花。每个发育阶段制备六个生物学重复,每种石蒜使用三个生物学重复。冷冻花部组织在液氮中充分研磨并在分析前涡旋混匀。每个重复准确称取1.0 g花粉末,使用电子天平(MS105DU,METTLER TOLEDO,苏黎世,瑞士)称量并转移至顶空瓶中。随后加入2 mL饱和NaCl溶液(26.47%;国药集团化学试剂有限公司,北京,中国)和20 μL内标溶液——3-己酮-2,2,4,4-d4(10 μg/mL;BioBioPha,云南,中国)和正己烷(≥99%;CNW,上海,中国),终浓度为10 μg/mL,于−20 °C保存至使用。挥发性化合物使用固相微萃取(SPME)Arrow系统(CTC Analytics AG,Zwingen,瑞士)提取,配备120 μm DVB/CWR/PDMS纤维(Agilent Technologies,Santa Clara,CA,USA)。提取前,SPME纤维在250 °C下使用纤维老化站(CTC Analytics AG,Zwingen,瑞士)老化5 min。然后将萃取纤维插入密封顶空瓶中,样品在60 °C下持续搅拌孵育5 min。随后挥发性化合物在纤维上吸附15 min,并在GC–MS进样口于250 °C热解吸5 min。花部挥发性化合物的鉴定使用Agilent 8890气相色谱仪联用Agilent 7000D质谱仪(Agilent Technologies,Santa Clara,CA,USA)。吸附挥发物的解吸在GC进样口于250 °C下进行5 min,采用不分流进样模式。分离使用DB-5MS毛细管柱(30 m × 0.25 mm × 0.25 μm;Agilent Technologies),以高纯氦气(99.999%)为载气,恒定流速1.2 mL/min。进样口温度维持250 °C,溶剂延迟3.5 min。柱温程序如下:初始40 °C保持5 min,以10 °C/min升至100 °C,再以7 °C/min升至180 °C,最后以25 °C/min升至280 °C并保持5 min。质谱仪操作条件为电子电离(EI)源230 °C,四极杆150 °C,接口280 °C。电子电离能量设为70 eV,数据采集在选择离子监测(SIM)模式下进行。
【数据】样品总数:30;每重复花粉末:1.0 g;饱和NaCl:2 mL(26.47%);内标:3-己酮-2,2,4,4-d4,20 μL,10 μg/mL;SPME纤维:120 μm DVB/CWR/PDMS;纤维老化:250 °C,5 min;孵育:60 °C,5 min;吸附:15 min;解吸:250 °C,5 min;载气:高纯氦气99.999%,1.2 mL/min;色谱柱:DB-5MS 30 m × 0.25 mm × 0.25 μm;进样口温度:250 °C;溶剂延迟:3.5 min;柱温程序:40 °C 5 min → 100 °C(10 °C/min)→ 180 °C(7 °C/min)→ 280 °C(25 °C/min)5 min;EI源:230 °C;四极杆:150 °C;接口:280 °C;电离能量:70 eV;采集模式:SIM
2.3 挥发性化合物的定性分析
GC–MS分析后,原始数据使用Agilent MassHunter Qualitative Analysis软件(Agilent Technologies)处理。该软件用于挥发性化合物的定性鉴定和半定量分析。数据处理过程中,去卷积峰宽参数设为20,分辨率、灵敏度和色谱峰形标准配置为中等设置。最低库匹配分数设为70。检测到的挥发性化合物的身份通过将其实验测定的保留指数(RIs)与NIST质谱库(NIST20.L)和自建MWGC数据库中的参考值进行比较来确认[29]。Kovats保留指数使用正构烷烃同系物(C7–C40)计算,随后与相应的理论RI值比较。挥发性代谢物基于其质谱图和保留指数匹配进行鉴定。定量通过积分所选定量离子的色谱峰面积进行,随后进行适当的信号校正。本研究采用的定性鉴定策略基于先前建立的分析方法[30]。石蒜花中挥发性化合物的相对定量采用基于内标的半定量方法。如下列方程所示:1,Xi = Vs × Cs / M × Ii / Is × 10−3,(1)其中Xi代表待测样品中挥发性化合物i的量(μg/g)。Vs是加入的内标(3-己酮)体积(μL)。Cs代表内标浓度(μg/mL)。M是待测样品量(g)。Is是内标的峰面积。Ii是待测样品中挥发性化合物i的峰面积。每种挥发性化合物对石蒜整体香气的贡献通过计算其气味活性值(OAV)来评估,OAV定义为化合物浓度与其报道的水中气味阈值之比[31–33]。气味阈值取自Leffingwell风味数据库[34]以及空气、水和其他介质中气味阈值汇编。OAV ≥1的挥发性化合物被认为对石蒜特征性花香有显著贡献,而OAV <1的化合物被认为对整体香气特征影响相对较小[35]。
【数据】去卷积峰宽:20;最低库匹配分数:70;保留指数标准品:正构烷烃C7–C40;内标:3-己酮;OAV阈值:≥1为显著贡献;原文未详述其他参数
2.4 RNA提取、文库构建、测序和转录组组装
使用植物RNA提取试剂盒(天根,中国;DP441)按照制造商说明从石蒜花瓣中提取总RNA。在五个发育阶段(S1–S5;图1A)采集的花瓣样品用于转录组分析。每个发育阶段制备三个独立生物学重复,RNA质量使用Agilent 2100 Bioanalyzer和RNA Nano 6000 Assay Kit(Agilent Technologies,Santa Clara,CA,USA)评估。RNA完整性数(RIN)≥7的样品用于互补DNA(cDNA)文库构建,使用TruSeq Strand...
【数据】RNA提取试剂盒:天根DP441;发育阶段:S1–S5;生物学重复:3;RIN阈值:≥7;原文未详述其他参数
研究结果
3.1 VOCs代谢物谱揭示石蒜花不同发育阶段花香变化
为表征小花发育过程中花部VOCs的动态变化,在五个代表性发育阶段采集石蒜小花进行代谢物谱分析(图1A)。五个发育阶段共鉴定出526种VOCs。PCA解释了72.89%的总方差,并根据发育阶段清晰分离样品,表明存在明显的阶段特异性VOC谱(图S2A,表S3)。鉴定出的VOCs被分类为16个化学类别。VOCs总体丰度在S1阶段最低,随花发育逐渐增加,在盛花期(S4)达到最大,随后在S5阶段急剧下降(图1B–D)。在鉴定出的化合物中,萜类代表最大的VOC类别,包含526种检测代谢物中的91种,平均占总VOC丰度的19.96%。萜类比例在S4阶段最高(22.83%),在S1阶段最低(16.90%)。丰度最高的三个VOC类别——萜类、酯类和酮类——在整个小花发育过程中平均占总VOC丰度的49.72%。为研究花部挥发物的发育变化,在S1与每个后续发育阶段(S2、S3、S4和S5)之间进行成对比较。在所有四次比较中一致鉴定出75种差异积累挥发性化合物(DAVs),表明这些代谢物在整个花发育过程中持续贡献于花香(图S3)。在不同发育阶段比较中检测到约372种DAVs,突显了小花成熟过程中实质性的代谢重编程(图1E)。发育阶段VOC组成分析显示,萜类、酯类、酮类和杂环化合物是主要化学类别,平均比例分别为19.96%、17.46%、12.28%和9.56%(图1F)。气味特征评估进一步揭示,青香和甜香是整个花发育过程中的主要花香属性。最强的青香和甜香气味强度在盛花期(S4)观察到,超过其他发育阶段检测到的强度(图1G)。整体花香强度在小花发育过程中逐渐增加,S4阶段相对于S1阶段,两种主要气味属性——甜香和青香——的丰度分别达到约49.96%和48.63%(表S4)。这些结果表明,VOC组成和花香特征在小花发育过程中均发生显著变化。
【数据】VOCs总数:526;PCA解释方差:72.89%;萜类数量:91种;萜类平均占比:19.96%;S4萜类占比:22.83%;S1萜类占比:16.90%;三大类平均占比:49.72%;一致DAVs:75种;DAVs总数:约372种;萜类/酯类/酮类/杂环平均比例:19.96%/17.46%/12.28%/9.56%;S4甜香丰度:约49.96%;S4青香丰度:约48.63%
3.2 石蒜开花过程中差异积累挥发物及相关代谢途径
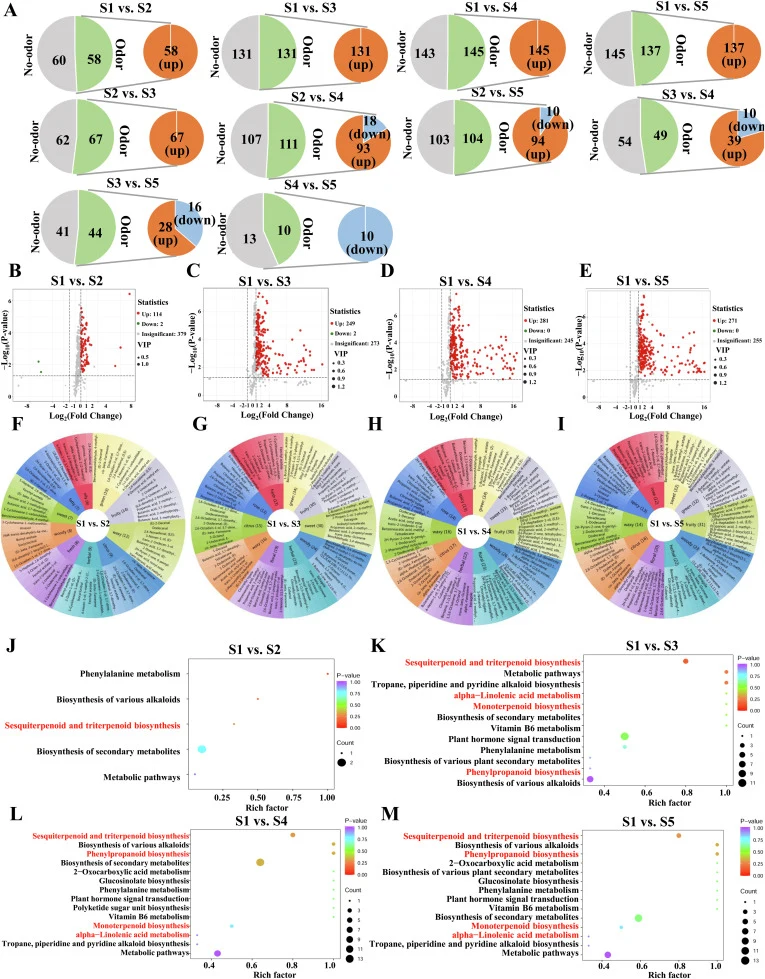
为鉴定导致花香气味阶段依赖性变化的VOCs,在S1阶段与每个后续发育阶段之间进行VOC丰度的成对差异分析。大多数气味活性DAVs在花发育过程中显著上调,与S1阶段相比,S2、S3、S4和S5阶段分别有58/58、131/131、145/145和137/137的气味相关VOCs显示积累增加。相比之下,从S4到S5转变过程中,超过100种气味活性VOCs显著下调(q < 0.05),表明盛花期后花香显著下降(图2A)。火山图分析进一步证明整个小花发育过程中VOC积累的广泛阶段特异性变化(图2B、C、D和E)。总体而言,372种香气挥发物在五个发育阶段差异积累,并分为五种主要时间积累模式。相对于S1阶段,S2、S3、S4和S5阶段分别有114、249、281和271种VOCs上调,表明花发育过程中VOC积累逐步增强。为可视化花发育过程中香气特征的变化,为每次成对比较生成分子气味轮(图2F、H和I)。差异香气挥发物根据其气味描述符分类,并根据VIP分数排序,每次比较中前10个DAVs被归入青香、果香、花香、甜香或硫磺气味类别。在S1到S2转变过程中,果香和青香气味相对于蜡质气味变得更加突出。从S2到S3,花香、甜香和果香属性进一步增加。从S3到S4以及S3到S5的转变以甜香气味的显著富集为特征,对应于盛花期挥发性含硫化合物积累的增加。为进一步阐明与DAV积累阶段特异性变化相关的代谢途径,以S1为参考阶段对每次比较进行KEGG富集分析(图2J、K、L和M)。在S2与S1比较中,DAVs显著富集于倍半萜和三萜生物合成、各种生物碱生物合成以及苯丙氨酸代谢途径。与S1相比,S3阶段显示出更广泛的途径富集,包括倍半萜和三萜生物合成、α-亚麻酸代谢、单萜生物合成和苯丙烷生物合成。在S4与S1以及S5与S1比较中观察到相似的富集模式,DAVs仍显著富集于倍半萜和三萜生物合成、α-亚麻酸代谢、单萜生物合成和苯丙烷生物合成。尽管整体富集谱在不同发育阶段有所变化,但α-亚麻酸代谢和萜类生物合成在整个小花发育过程中持续富集,突显了它们在调控花部挥发物产生中的核心作用。
【数据】S2/S3/S4/S5气味相关VOCs上调数:58/131/145/137;S4到S5下调气味活性VOCs:>100种(q < 0.05);差异积累香气挥发物:372种;S2/S3/S4/S5上调VOCs数:114/249/281/271;KEGG富集通路:倍半萜和三萜生物合成、α-亚麻酸代谢、单萜生物合成、苯丙烷生物合成等
3.3 开花过程中关键气味活性挥发物的时间模式与网络共调控
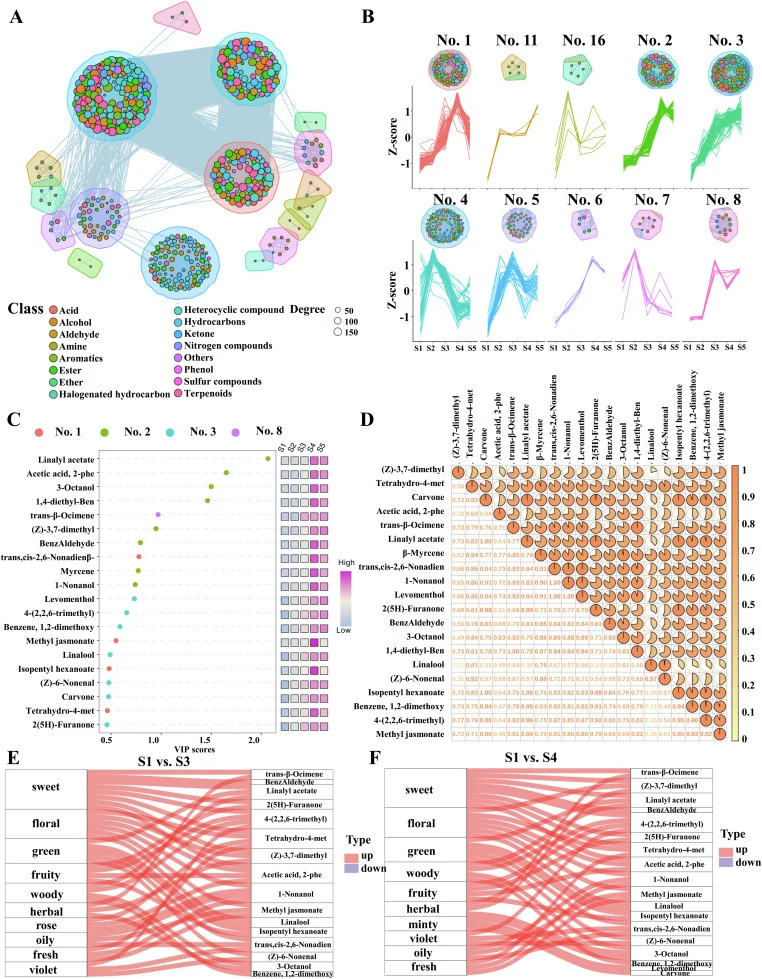
为研究小花发育过程中VOCs的协调积累,对开花期所有鉴定VOCs进行成对相关分析。在493种VOCs中检测到显著相关性(q < 1.0 × 10⁻¹⁰),并可视化为相关网络(图3A)。网络分析鉴定出三个最大的共表达群落,共包含332种VOCs,每个群落在花发育过程中表现出不同的积累模式(图3B)。每个群落内VOCs之间的强相关性表明开花过程中代谢物积累的高度协调变化。为表征每个群落的时间行为,计算每个群落内VOC平均丰度并用于代表其发育积累模式(图3B)。VIP分析鉴定出20种最具区分性的VOCs,主要为萜类和酯类,以及少量醛类(图3C)。基于相对气味活性值(rOAV >1),鉴定出六种关键香气活性化合物:β-罗勒烯、香芹酮、芳樟醇、β-月桂烯、(Z)-6-壬烯醛和1-壬醇,被确定为石蒜花香气的主要贡献者,均在S4阶段显示最高丰度(表S5)。绝对定量进一步证实了这些关键香气化合物在开花过程中的显著发育变化(图S4,表S5)。这些气味活性挥发物的积累伴随着花香气特征从以青香为主逐渐向更强烈的果香、甜香和草本特征转变(图3E和F)。这些结果表明,石蒜花香的形...
【数据】显著相关VOCs:493种(q < 1.0 × 10⁻¹⁰);三大共表达群落VOCs总数:332种;关键香气活性化合物:β-罗勒烯、香芹酮、芳樟醇、β-月桂烯、(Z)-6-壬烯醛、1-壬醇(rOAV >1);最高丰度阶段:S4
讨论与解读
石蒜是中国具有重要商业价值的多年生鳞茎属植物,以其迷人的花朵和盛花期独特的花香备受青睐。然而,其花香形成的分子机制此前研究甚少。本研究通过整合代谢组与转录组,在石蒜花发育五个阶段中系统描绘了VOCs的动态变化。萜类作为最大VOC类别,平均占总丰度的19.96%,在盛花期达到峰值。β-罗勒烯等六种关键香气化合物被鉴定为花香的主要贡献者。转录组分析揭示萜类和苯丙烷生物合成途径的差异表达基因对β-罗勒烯生物合成调控贡献显著。WGCNA鉴定出NAC、MADS、HSF、WRKY、bZIP、C2H2和GARP-G2等转录因子为关键调控因子。整合分析进一步证明两个TPS基因与四种石蒜及小花发育过程中的萜类生物合成密切相关。功能表征确认叶绿体定位的LlTPS13和LlTPS14是β-罗勒烯生物合成的主要酶,瞬时过表达实验证实其催化β-罗勒烯和反式-β-罗勒烯的产生。这些发现为不同品种和发育阶段花香的变异提供了新见解,并突显了所鉴定TPS基因和转录因子在石蒜萜类生物合成中的潜在调控作用。
编译者解读:该研究以多组学整合策略高效锁定了石蒜花香的关键合成酶与调控网络,LlTPS13/LlTPS14的功能验证为合成生物学途径工程提供了明确的候选元件。叶绿体定位提示β-罗勒烯合成可能依赖MEP途径的质体前体供给,这为后续在微生物底盘或植物中重构萜类合成通路提供了亚细胞区室化设计的参考。局限在于瞬时过表达仅验证了催化功能,未进行稳定遗传转化或体内敲除验证,调控网络中的转录因子也尚缺直接靶标验证。总体而言,该工作为石蒜花香分子育种和萜类化合物异源生产奠定了基因资源基础。
参考来源
期刊:International Journal of Biological Macromolecules, 2026
DOI: 10.1016/j.ijbiomac.2026.154414
DOI: 10.1016/j.ijbiomac.2026.154414