来源:Chromosome doubling drives saponin enrichment in Aralia elata (Miq.) Seem: Multi-omics dissection of terpenoid biosynthesis regulation in tetraploid germplasm(Industrial Crops and Products)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
辽东楤木是富含五环三萜皂苷的药食两用木本植物,其野生资源远不能满足工业需求。本研究以秋水仙素处理体细胞胚诱导染色体加倍,筛选出稳定四倍体种质,并系统比较了二倍体与四倍体在形态、光合生理、药用成分及转录-代谢层面的差异。最优诱导条件为0.02%秋水仙素处理3天,诱导率17.26%;四倍体表现为矮壮株型、气孔增大、叶绿素升高、净光合速率提升至1.6倍,总黄酮与总皂苷分别提高2.26倍和1.32倍。转录组与代谢组联合分析锁定24个与齐墩果烷型皂苷高度相关的萜类合成基因,为多倍体药用植物育种提供了多组学证据。
研究背景
辽东楤木(Aralia elata (Miq.) Seem)为五加科落叶小乔木,主要分布于中国、俄罗斯远东、日本和韩国,在中国东北兼具药用与食用价值。其嫩芽富含必需微量元素、芳香挥发油、氨基酸和蛋白质。除传统用途外,辽东楤木因积累大量五环三萜皂苷和黄酮类化合物而成为有工业开发潜力的生物资源。目前从其根皮和叶中分离到的皂苷以齐墩果酸和常春藤皂苷元衍生物为主,此外还鉴定出生物碱、香豆素和多糖等成分。这些次生代谢物具有显著的两亲性和生物活性,在化妆品、农用化学品和生物基工业配方中可作为天然表面活性剂、乳化剂和发泡剂,其结构多样性还支持在绿色化学合成和可持续材料科学中的应用。然而,野生和常规栽培资源难以满足工业化对活性成分产量与稳定性的需求,亟需通过种质创新提升目标代谢物积累水平。多倍体育种是药用植物遗传改良的快速有效策略,常带来"巨大化"效应和次生代谢物含量提升,但辽东楤木中协调初级生理适应与次生代谢通量的转录机制尚不清楚。
研究方法
2.1 实验材料与秋水仙素诱导四倍体
体细胞胚由本实验室辽东楤木胚性愈伤组织诱导获得(Dai et al., 2010),接种于含不同秋水仙素浓度(0.02%、0.05%、0.1%和0.15%)的愈伤组织诱导培养基中,处理3天或5天。处理后的体细胞胚转移至不含秋水仙素的培养基中进行愈伤组织诱导。新形成的体细胞胚转移至组织培养基中进行植株再生。8–12周后,将叶片完全展开、高5.0 cm的植株进行驯化,并移栽至含土壤、蛭石和珍珠岩(2:1:1,v/v)混合基质的塑料盆中。实验所用体细胞胚发生途径的方案源自Dai et al.(2010)和Sui et al.(2022)的研究。培养环境始终保持在23–25 ℃。愈伤组织和体细胞胚在黑暗环境中培养,再生植株在16 h光照/8 h黑暗环境中培养。
【数据】秋水仙素浓度:0.02%、0.05%、0.1%、0.15%;处理时间:3天或5天;培养温度:23–25 ℃;再生植株高度:5.0 cm;炼苗移栽时间:8–12周;基质配比:土壤:蛭石:珍珠岩=2:1:1(v/v);光周期:16 h光/8 h暗
2.2 倍性鉴定
为排除嵌合组织并确认倍性稳定性,实施多阶段流式细胞术筛选方案(Partec Cyflow PA,德国)。流式细胞术方法参照Feng et al.(2022)。取约0.05 g愈伤组织或叶片(约1 cm²)在400 μL细胞核裂解缓冲液中切碎,用800 μL染色液染色,并通过30 μm尼龙网过滤。在间隔一个月的两个时间点上均表现出单一、尖锐的G0/G1峰、对应4 C DNA含量的植株被保留。从这些株系切取根段重新诱导胚性愈伤组织,再生第二代的植株并进行最终流式细胞术确认。虽然流式细胞术可快速评估相对DNA含量,但明确的细胞学确认对于验证精确染色体数目和排除潜在非整倍体至关重要。因此,按如下方法进行常规根尖染色体计数:根尖在冰水中预处理24 h,在卡诺固定液(乙酸:乙醇=1:3,v/v)中固定24–48 h,在室温下用1 mol/L HCl水解30 min,用卡宝品红染色20 min。制备染色体铺片并在光学显微镜600 ×放大下观察以进行精确核型分析。在所有发育阶段和继代周期中均保持一致的4 C图谱的株系被归类为稳定同源四倍体,用于后续所有表型、生理和多组学分析。该多阶段筛选方案,结合体细胞胚发生固有的遗传同质性(通常来源于单细胞或小细胞团),有效降低了周缘嵌合体或扇形嵌合体的风险,符合体外多倍体诱导和嵌合体排除的既定方法学标准(Dhooghe et al., 2011; Touchell et al., 2020)。
【数据】裂解缓冲液体积:400 μL;染色液体积:800 μL;尼龙网孔径:30 μm;样本量:约0.05 g;冰水预处理时间:24 h;卡诺固定液配比:乙酸:乙醇=1:3(v/v);固定时间:24–48 h;HCl浓度:1 mol/L;水解时间:30 min;染色时间:20 min;显微镜放大倍数:600 ×;筛选间隔:1个月
2.3 四倍体培养体系优化
四倍体愈伤组织体细胞胚发生所需时间比二倍体长,产生的体细胞胚数量也更少。因此对四倍体体细胞胚发生体系进行优化。将验证为非嵌合体的四倍体愈伤组织接种于不同基础培养基(SH和MS)和不同浓度吲哚丁酸(IBA,2.0–3.5 mg/L)上进行体细胞胚发生,直至出现褐化或分化。每个处理设30个愈伤组织,三次重复。记录分化时间、平均体细胞胚数和分化率。分化率计算公式为:分化愈伤组织数/总愈伤组织数 × 100%。
【数据】基础培养基:SH和MS;IBA浓度:2.0–3.5 mg/L;每处理愈伤组织数:30个;重复次数:3次;分化率公式:分化愈伤组织数/总愈伤组织数×100%
2.4 形态特征与气孔观察
移栽后1、2和6个月测量土培植株的形态性状(株高、茎粗、叶尺寸)。移栽入土2个月后,从二倍体和四倍体植株上选取完整的羽状复叶,测量整个复叶长度以及复叶上单个小叶的长度、宽度和叶面积。气孔观察:叶片用1%碘液(I2KI)染色,在光学显微镜(400 ×)下观察。气孔长度、宽度和密度各测量三次(Zhang, 2023)。
【数据】形态测量时间点:移栽后1、2、6个月;复叶取样时间:移栽后2个月;碘液浓度:1%;显微镜放大倍数:400 ×;气孔测量重复次数:3次
2.5 四倍体辽东楤木叶绿素含量测定
取90日龄植株的新鲜叶片(每份0.2 g)剪成1–2 mm条状,在10 mL 80%丙酮中于4 °C黑暗条件下浸泡过夜。提取液在12,000 ×g离心15 min。收集上清液,用分光光度计在470、647和663 nm处测定吸光度。类胡萝卜素和叶绿素浓度按以下公式计算(Pan et al., 2014):Ca = 12.25A663 - 2.79A647;Cb = 21.50A647 - 5.10A663;Ca+b = 7.15A663 + 18.71A647;Cx+c = (1000A470 - 1.82Ca - 85.02Cb)/198。
【数据】叶片鲜重:0.2 g;丙酮浓度:80%;浸泡温度:4 °C;离心转速:12,000 ×g;离心时间:15 min;测定波长:470、647、663 nm;植株日龄:90天
2.6 四倍体辽东楤木叶片光合特性与叶绿素荧光参数测定
选取移栽后90天的二倍体和四倍体辽东楤木植株最下部复叶的顶生小叶进行光合和叶绿素荧光参数测定。在晴天9:30–11:30使用便携式Li-6800光合系统(Li-COR,美国)进行测量。记录的参数包括净光合速率(Pn,μmol·m⁻²·s⁻¹)、气孔导度(Gs,mmol·m⁻²·s⁻¹)、胞间CO2浓度(Ci,μmol·mol⁻¹)、蒸腾速率(Tr,mmol·m⁻²·s⁻¹)和水分利用效率(WUE = Pn/Tr,mmol·m⁻²·s⁻¹)。荧光测定前,将相应位置的叶片用铝箔完全包裹进行30 min暗适应。评估的叶绿素荧光参数包括PSII最大量子产率(Fv/Fm)、光化学淬灭(qP)、非光化学淬灭(NPQ)和电子传递速率(ETR)。在人工红蓝光(1000 μmol·m⁻²·s⁻¹)下测量,流速500 μmol·s⁻¹,CO2浓度400 μmol·mol⁻¹,叶室温度维持环境室温。每组测量3片叶,每片叶3次重复。
【数据】植株日龄:90天;测量时间:9:30–11:30;暗适应时间:30 min;光强:1000 μmol·m⁻²·s⁻¹;流速:500 μmol·s⁻¹;CO2浓度:400 μmol·mol⁻¹;每组叶片数:3片;每叶重复:3次
2.7 生物活性化合物测定
2.7.1 总黄酮含量测定
采用硝酸铝比色法测定总黄酮含量,在550 nm处测定吸光度(Sui et al., 2022)。取60日龄辽东楤木组培植株风干后研磨成粉。准确称取干燥样品粉末0.5 g于10 mL离心管中,加入5 mL 50%(v/v)乙醇,超声处理90 min。加入1 mL 5%亚硝酸钠溶液,混匀,孵育6 min。随后加入1 mL 10%硝酸铝溶液,混匀,再孵育6 min。最后加入10 mL 4%氢氧化钠溶液,用50%乙醇定容至25 mL。充分混匀后孵育15 min。在550 nm附近扫描吸光度。以溶剂空白调零,测定550 nm处吸光度。
【数据】样品粉末:0.5 g;乙醇浓度:50%(v/v);乙醇体积:5 mL;超声时间:90 min;亚硝酸钠浓度:5%;亚硝酸钠体积:1 mL;第一次孵育时间:6 min;硝酸铝浓度:10%;硝酸铝体积:1 mL;第二次孵育时间:6 min;氢氧化钠浓度:4%;氢氧化钠体积:10 mL;定容体积:25 mL;最终孵育时间:15 min;检测波长:550 nm;植株日龄:60天
2.7.2 常春藤皂苷元和齐墩果酸单体检测方法建立
常春藤皂苷元和齐墩果酸单体标准溶液及供试品溶液的制备方法以及标准曲线制作方法参照Xia et al.(2024)。精确称取样品粉末0.5 g,加入少量沸石于100 mL圆底烧瓶中。加入25 mL盐酸-乙醇溶液(2:8),加热……
【数据】样品粉末:0.5 g;盐酸-乙醇配比:2:8;盐酸-乙醇体积:25 mL;圆底烧瓶:100 mL
研究结果
3.1 秋水仙素对体细胞胚和愈伤组织诱导的影响
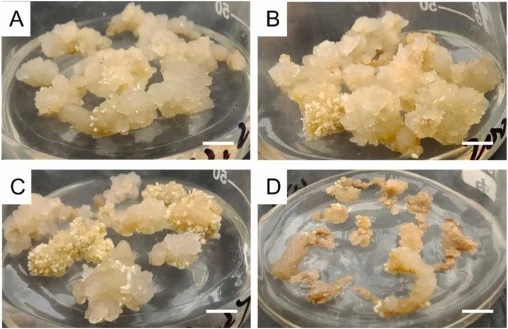
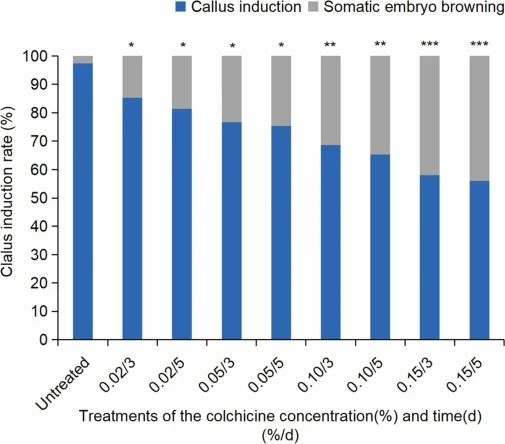
秋水仙素处理8周后显著影响体细胞胚的活力和分化(图1,图2)。0.02%秋水仙素处理3天后,组织损伤最小,愈伤组织生长与未处理对照相当,愈伤组织诱导率最高达85.33%(图1A和B)。然而,随着秋水仙素浓度增加(0.05%和0.1%)和处理时间延长(5天),组织活力恶化。愈伤组织诱导率降至58%–81%,同时死亡或褐化的体细胞胚增加(图1C,图2)。在最高浓度(0.15%处理5天)下,秋水仙素表现出严重毒性,导致大面积褐化,愈伤组织诱导率骤降至56%(图1D,图2)。
【数据】秋水仙素浓度:0.02%、0.05%、0.1%、0.15%;处理时间:3天或5天;观察时间:8周;最高愈伤诱导率:85.33%(0.02%秋水仙素处理3天);褐化/死亡时诱导率范围:58%–81%;0.15%处理5天诱导率:56%
3.2 辽东楤木四倍体倍性验证
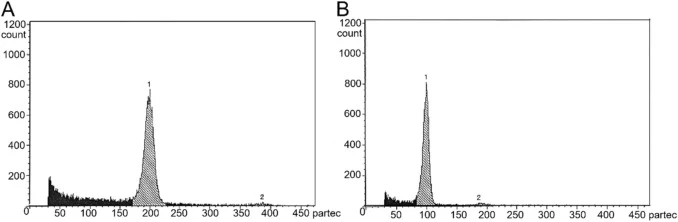
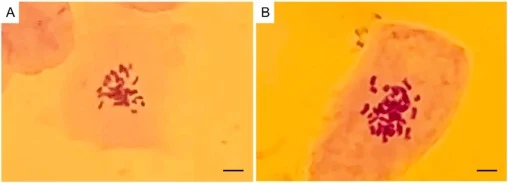
二倍体叶细胞的流式细胞术分析显示主G0/G1峰位于通道98(2 C DNA含量),次G2/M峰位于通道187(4 C DNA含量)(图3A)。相比之下,秋水仙素处理外植体来源的体细胞胚显示出偏移的峰,位于通道199(4 C,G0/G1)和通道387(8 C,G2/M)(图3B)。这些成比例倍增模式(二倍体中2 C→4 C;四倍体中4 C→8 C)确认了多倍化成功。常规染色体计数进一步验证了这些结果,二倍体为2 n = 2x = 24(图4A),同源四倍体为2n = 4x = 48(图4B)。在测试条件中,0.02%秋水仙素处理3天的四倍体诱导率最高,为17.26%(表1)。
【数据】二倍体G0/G1峰通道:98(2 C);二倍体G2/M峰通道:187(4 C);四倍体G0/G1峰通道:199(4 C);四倍体G2/M峰通道:387(8 C);二倍体染色体数:2n = 2x = 24;四倍体染色体数:2n = 4x = 48;最高四倍体诱导率:17.26%(0.02%秋水仙素处理3天)
3.3 四倍体培养体系优化
四倍体愈伤组织分化周期比二倍体长,产生的体细胞胚更少,因此对培养体系进行了优化。在SH培养基中,愈伤组织保持活力(淡黄色),在40–70天内分化(表2,图5A–C)。增加吲哚丁酸(IBA)浓度显著增强体细胞胚发生。在3.5 mg/L IBA时,分化时间缩短至40天,分化率峰值达95.83%。相反,在MS培养基中培养的愈伤组织出现严重褐化,活力差,需要长达90天才能分化,成功率极低(最高1.67%)(图5D–F)。因此,选择SH培养基添加3.5 mg/L IBA用于四倍体繁殖。
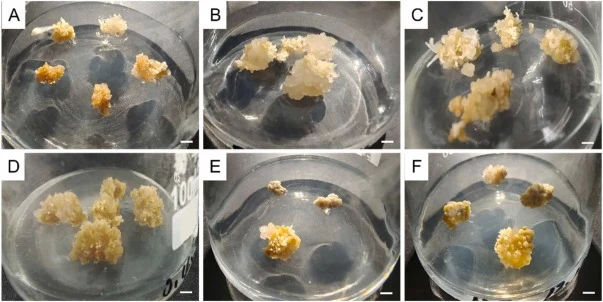
【数据】SH培养基分化时间:40–70天;IBA浓度:2.0–3.5 mg/L;3.5 mg/L IBA分化时间:40天;最高分化率:95.83%(SH + 3.5 mg/L IBA);MS培养基分化时间:长达90天;MS培养基最高分化率:1.67%
3.4 形态学比较
染色体加倍从根本上改变了植株形态。移栽后90天,与二倍体相比,四倍体植株表现出矮壮株型,茎显著增粗,茎长缩短(图6A、6B;表3)。此外,四倍体叶片显著更宽、颜色更深绿,小叶分割更明显。在6个月生长期内,四倍体和二倍体表现出相似的整体生长轨迹(初期缓慢、中期快速、后期平台),但四倍体始终维持其独特的粗壮紧凑表型(图6C-D)。
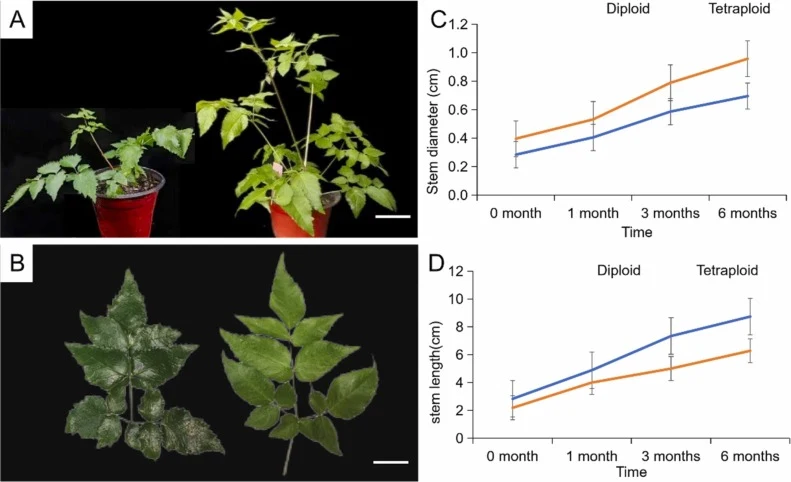
【数据】观察时间点:移栽后90天及6个月;四倍体表型:矮壮、茎增粗、茎长缩短、叶片更宽更深绿;生长阶段:初期缓慢、中期快速、后期平台
3.5 气孔观察
显微观察显示,多倍化显著增大了气孔,同时降低了气孔密度。四倍体平均气孔长度和宽度分别为30.93 μm和19.82 μm,显著大于二倍体(23.19 μm和13.08 μm)(p < 0.05)(图7A)。四倍体叶片气孔显著大于二倍体叶片(P < 0.05)。因此,四倍体叶片表现出更低的气孔密度,平均每视野约5个气孔,而二倍体为9个(图7A-C)。
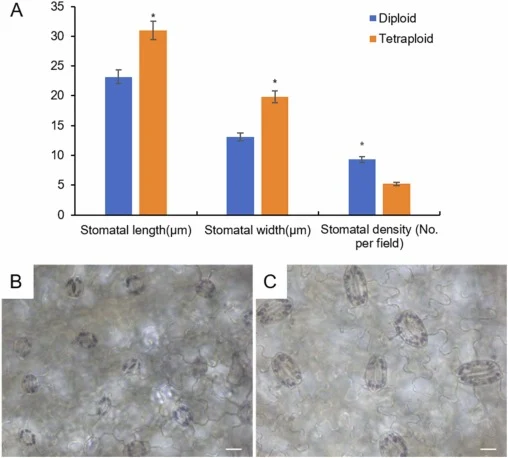
【数据】四倍体气孔长度:30.93 μm;四倍体气孔宽度:19.82 μm;二倍体气孔长度:23.19 μm;二倍体气孔宽度:13.08 μm;显著性:p < 0.05;四倍体气孔密度:约5个/视野;二倍体气孔密度:9个/视野
3.6 叶绿素含量比较
四倍体植株(移栽后90天)积累了显著更高浓度的光合色素(图8)。叶绿素a和b含量分别达到710.07 μg/g和296.51 μg/g,比二倍体高1.93倍和1.99倍。总叶绿素含量几乎翻倍(高1.94倍)。此外,四倍体株系总类胡萝卜素含量比二倍体高139.75 μg/g。
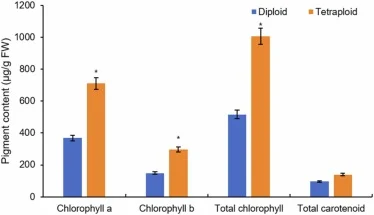
【数据】四倍体叶绿素a:710.07 μg/g(为二倍体的1.93倍);四倍体叶绿素b:296.51 μg/g(为二倍体的1.99倍);总叶绿素:高1.94倍;总类胡萝卜素增加量:139.75 μg/g;植株日龄:90天
3.7 光合与叶绿素荧光特性
与二倍体叶片相比,四倍体辽东楤木叶片在标准测量条件下总体增强了基线光合效率(表4)。四倍体净光合速率(Pn)达到4.15 μmol·m⁻²·s⁻¹,显著高于二倍体(2.59 μmol·m⁻²·s⁻¹)。虽然胞间CO₂浓度(Ci)在统计上保持不变,但气孔导度(Gs)和蒸腾速率(Tr)分别增加了41%和59.8%。这些增强共同促进了四倍体叶片水分利用效率(WUE)的显著提高。叶绿素荧光分析支持了这些发现(表5)。PSII最大量子产率(Fv/Fm)从二倍体的0.66升至四倍体的0.75,表明PSII结构完整性增强。电子传递效率方面,电子传递速率(ETR)从二倍体的39.48 ± 0.01增至四倍体的40.89 ± 1.09(增幅约3.6%)。同样,非光化学淬灭(NPQ)系数在四倍体中显著增强(比二倍体高0.38),反映光保护能力改善。光化学淬灭(qP)也持续升高,为二倍体的1.76倍,表明开放PSII反应中心比例增加。
【数据】四倍体Pn:4.15 μmol·m⁻²·s⁻¹;二倍体Pn:2.59 μmol·m⁻²·s⁻¹;Gs增加:41%;Tr增加:59.8%;Ci:统计不变;四倍体Fv/Fm:0.75;二倍体Fv/Fm:0.66;四倍体ETR:40.89 ± 1.09;二倍体ETR:39.48 ± 0.01;ETR增幅:约3.6%;NPQ增加:0.38;qP为二倍体的1.76倍
3.8 二倍体与四倍体辽东楤木生物活性化合物积累
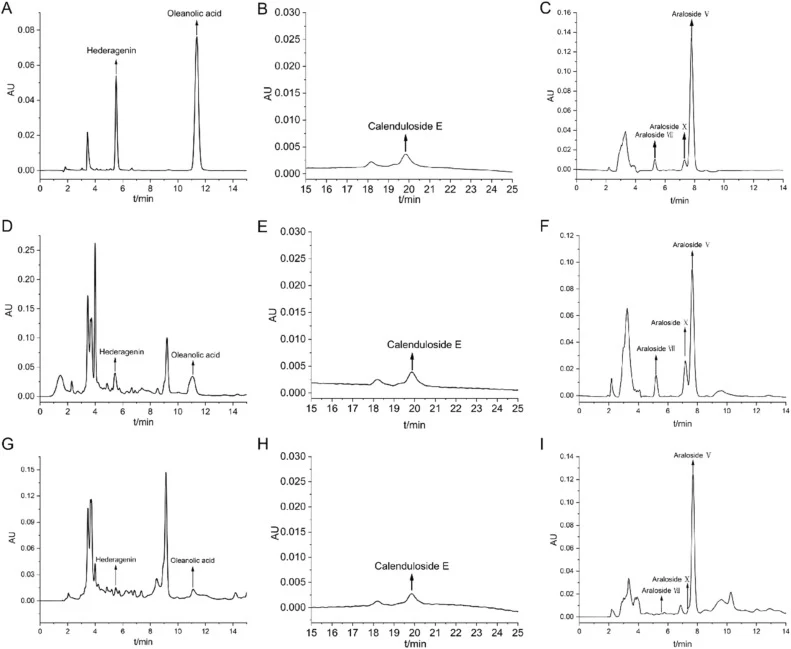
多倍化显著刺激了药用化合物的生物合成。黄酮和皂苷含量的定量依赖经过验证的标准曲线(表S2)。如箱线图分析所示(图10),四倍体叶片总黄酮含量大幅升高,中位数和整体分布显著高于二倍体(平均浓度增加约2.26倍)。六种不同皂苷的积累谱进一步证实了三萜类产量的增强(图10)。采用HPLC方法研究了二倍体和四倍体植株中六种皂苷的积累(Cheng et al., 2021b; Li, 2023)。HPLC定量六种不同皂苷进一步证实了三萜类积累增强(图9)。四倍体中常春藤皂苷元和齐墩果酸的分布中位数高于二倍体。对于 calenduloside E,四倍体组中位数含量略高,分布范围更宽。值得注意的是,四倍体辽东楤木中 Araloside V 含量显著升高;然而箱线图显示较大的四分位距(IQR),表明个体间积累变异大。Araloside VII 和 Araloside X 在二倍体中几乎检测不到(箱体压缩在零附近),而四倍体可检测到且变异较大(须较长)。因此,四倍体株系中总皂苷含量显著富集,总黄酮在四倍体组中呈现明显的高值离群点。
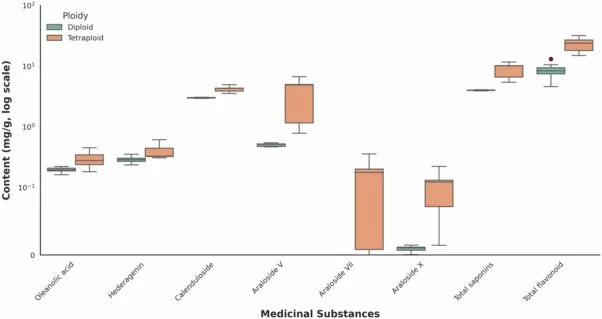
【数据】总黄酮增加倍数:约2.26倍;检测皂苷种类:6种;HPLC检测成分:常春藤皂苷元、齐墩果酸、calenduloside E、Araloside V、Araloside VII、Araloside X;Araloside V:四倍体显著升高,IQR较大;Araloside VII和X:二倍体几乎检测不到,四倍体可检测;总皂苷:四倍体显著富集
3.9 整合转录组与代谢组揭示四倍体协调代谢重编程
为研究辽东楤木四倍体相关的分子变化,我们对二倍体(WT)和四倍体(Te)叶片的cDNA文库进行了转录组测序。转录组测序获得高质量数据(Q30 > 92%;表S3),比对率超过90%(表S4)。共有33,370个组装基因在六个公共数据库中进行注释。其中,30,333个基因(90.9%)成功注释(表S5)。具体而言,22,543个(67.55%)、26,382个(86.97%)和16,569个(49……)
【数据】Q30:> 92%;比对率:> 90%;组装基因总数:33,370个;成功注释基因:30,333个(90.9%);注释率:22,543个(67.55%)、26,382个(86.97%)、16,569个(49%……原文截断)
讨论与解读
多倍体诱导的"巨大化"和次生代谢物积累增强虽已有大量报道,但辽东楤木中协调初级生理适应与次生代谢通量的转录机制此前尚不清楚。本研究首先建立了高效的四倍体诱导方案(0.02%秋水仙素处理3天,诱导率17.26%),通过流式细胞术和染色体计数确认了稳定同源四倍体(2 n = 4x = 48),并记录了其矮壮形态、气孔增大、基线光合效率增强以及黄酮和齐墩果烷型皂苷积累显著升高。在此基础上,整合转录组和代谢组分析,鉴定出24个与齐墩果烷型皂苷谱高度相关(|r| > 0.9)的基因,包括Aeβ-AS、AeCYP450s和AeUGTs。这些发现提供了多组学证据,表明辽东楤木染色体加倍并非被动增加细胞体积,而是主动重编程转录网络,增强光合库强度并将碳通量重新导向三萜类生物合成。
编译者解读:该研究将经典秋水仙素诱导与多组学关联分析结合,在木本药用植物中实现了从"诱导—筛选—评价—解析"的完整闭环。其亮点在于用严格的嵌合体排除流程保证四倍体纯度,并通过转录-代谢相关分析锁定β-AS、P450和UGT家族候选基因。局限在于相关分析尚不能证明因果,且Araloside V等成分个体变异大,后续需通过毛状根或悬浮细胞体系进行功能验证,并评估四倍体在大田长期栽培中的稳定性与产量表现。
参考来源
期刊:Industrial Crops and Products, 2026
DOI: 10.1016/j.indcrop.2026.124252
DOI: 10.1016/j.indcrop.2026.124252