来源:Recombinant expression and functional characterization of Aspergillus niger β-glucosidase in Pichia pastoris for enhanced synergistic saccharification of lignocellulosic biomass toward biofuel applications(Biomass and Bioenergy)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
木质纤维素生物质的高效糖化是可持续生物燃料生产的关键环节。本研究将来自黑曲霉BE-2的β-葡萄糖苷酶基因(bg1)经密码子优化后,在毕赤酵母X-33中实现异源分泌表达,系统优化了甲醇诱导条件,并对重组酶的生化特性进行了表征。研究发现,1%甲醇诱导第6天酶活最高,重组酶最适pH为5.5、最适温度为70°C,在60-70°C下72小时仍保留超过96%的残余活性。将重组β-葡萄糖苷酶与重组内切葡聚糖酶复配后,对甘蔗渣、小麦秸秆和稻草的糖化效率分别达到96%、86%和94%。
研究背景
全球化石能源消耗带来的温室气体排放问题日益严峻,寻找可持续的可再生能源已成为迫切需求。生物质能源目前被公认为世界第四大能源资源。在各类生物燃料中,以木质纤维素为原料生产的第二代乙醇(2G乙醇)因能显著减少温室气体排放而备受关注。将木质纤维素高效转化为可再生燃料和高附加值生化产品,是绿色生物经济发展的核心目标。利用农业废弃物生产生物燃料契合循环经济原则,有助于资源高效利用和废弃物价值化。近年来,循环生物经济、可持续生物燃料供应体系和废弃物价值化已被视为实现长期环境与经济可持续性的关键策略。
研究方法
2.1 菌株、质粒与培养条件
表达载体pPICZαA(Invitrogen,美国加州Carlsbad)用于克隆和分泌表达来自黑曲霉BE-2菌株(GenBank:KJ724529.1)的全长β-葡萄糖苷酶基因(bg1)。为最大化在毕赤酵母中的翻译效率,bg1编码序列(CDS)在合成前进行了密码子优化。完整的密码子优化bg1序列见补充图S1。基因组装由Chromous Biotech Limited(印度班加罗尔)采用递归PCR方法完成,如图1所示,遵循Hoover和Lubkowski(2002)[39]所述方法。所得重组构建体命名为pPICZαA/bg1,首先转化至大肠杆菌DH5α中进行质粒扩增和序列验证。确认后,将线性化构建体导入毕赤酵母X-33菌株(Invitrogen,美国)以实现异源表达。所有培养、筛选和诱导程序均按照EasySelect™毕赤酵母表达试剂盒方案(Invitrogen,美国)执行。
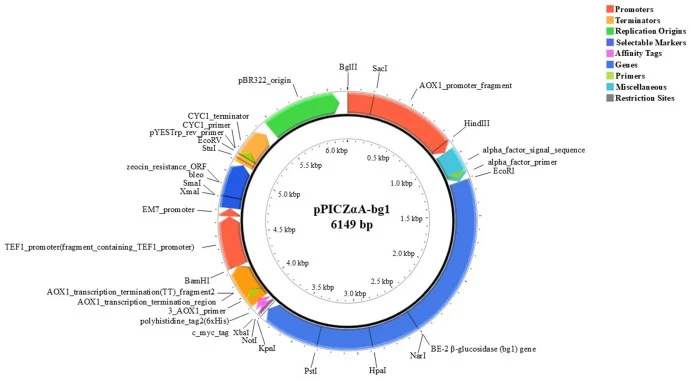
【数据】菌株:黑曲霉BE-2(GenBank:KJ724529.1)、大肠杆菌DH5α、毕赤酵母X-33;质粒:pPICZαA;方法:递归PCR;原文未详述其他具体参数
2.2 培养基
大肠杆菌DH5α细胞在低盐Luria-Bertani(LB)肉汤中培养,添加Zeocin™(50 μg/mL),于37°C、200 rpm振荡条件下培养。毕赤酵母培养和重组蛋白表达在不同阶段使用不同培养基。YPD培养基含1%酵母提取物、2%蛋白胨和2%葡萄糖。缓冲甘油复合培养基(BMGY)组成为1%酵母提取物、2%蛋白胨、100 mM磷酸钾缓冲液、1.34%无氨基酸酵母氮源、4 × 10⁻⁵%生物素和1%甘油。缓冲甲醇复合培养基(BMMY)基本组成与BMGY相同,但甘油被不同浓度的甲醇(0.5%、1%和1.5%)替代以优化表达条件。所有培养基均按EasySelect毕赤酵母表达试剂盒手册说明配制。研究中使用的化学试剂购自Sigma-Aldrich。
【数据】LB培养基:Zeocin 50 μg/mL,温度37°C,转速200 rpm;YPD:1%酵母提取物、2%蛋白胨、2%葡萄糖;BMGY:1%酵母提取物、2%蛋白胨、100 mM磷酸钾缓冲液、1.34%酵母氮源、4×10⁻⁵%生物素、1%甘油;BMMY:甲醇0.5%、1%、1.5%
2.3 基因克隆与序列验证
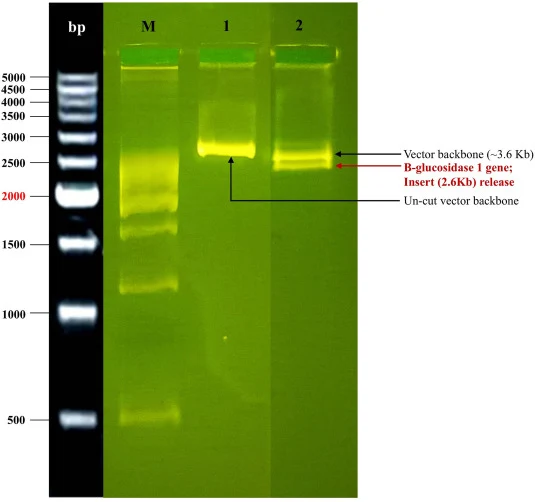
经密码子优化和序列确认后的合成基因片段,首先通过EcoRI和KpnI限制性位点插入pUC克隆载体。载体和插入片段均在37°C消化2小时,所得片段在0.8%(w/v)琼脂糖凝胶上分析以确认酶切完全。纯化的插入片段随后使用快速DNA连接试剂盒连接至线性化载体。连接混合物通过热激转化法[40]导入化学感受态大肠杆菌DH5α细胞。转化细胞涂布于含氨苄青霉素(100 μg/mL)的LB琼脂平板,37°C过夜培养进行筛选。选取的菌落于液体培养基中培养,提取质粒DNA进行进一步确认。重组克隆通过限制性分析和DNA测序验证序列完整性[41]。
【数据】限制性内切酶:EcoRI、KpnI;酶切温度:37°C;酶切时间:2h;琼脂糖凝胶浓度:0.8%(w/v);氨苄青霉素浓度:100 μg/mL;培养温度:37°C;原文未详述连接试剂盒具体参数
2.4 重组表达载体的构建
确认的pUC-bg1构建体作为供体载体,将目标基因亚克隆至pPICZαA表达载体。插入片段和pPICZαA用EcoRI和KpnI于37°C消化2小时,随后按制造商说明使用DNA连接试剂盒进行纯化和连接。连接混合物转化至感受态大肠杆菌DH5α细胞。阳性菌落培养后分离质粒DNA。重组克隆通过限制性消化和DNA测序确认正确插入。
【数据】限制性内切酶:EcoRI、KpnI;酶切温度:37°C;酶切时间:2h;原文未详述连接试剂盒具体参数
2.5 毕赤酵母整合体的转化与筛选
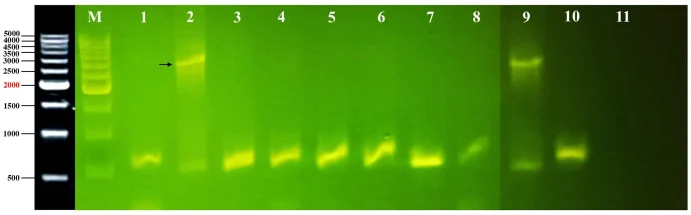
验证后的pPICZαA/bg1构建体使用SacI于37°C线性化2小时,以促进通过同源重组定点整合至毕赤酵母基因组的AOX1位点。线性化DNA通过乙醇沉淀回收并重悬于无菌去离子水中。转化至感受态毕赤酵母X-33细胞使用EasyCom™化学法按制造商方案进行。在YPD肉汤中恢复培养后,转化体在含Zeocin(100 μg/mL)的YPD琼脂上筛选,30°C培养3-10天。抗性菌落中的成功基因组整合通过使用AOX1特异性引物的PCR确认。所得扩增产物通过琼脂糖凝胶电泳分析,以鉴定用于后续表达分析的阳性克隆。
【数据】线性化酶:SacI;线性化温度:37°C;线性化时间:2h;Zeocin浓度:100 μg/mL;筛选培养温度:30°C;筛选培养时间:3-10天
2.6 产β-葡萄糖苷酶菌株的定性筛选
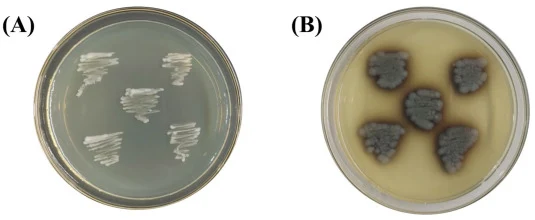
重组毕赤酵母转化体(pPICZαA/bg1)的初步筛选采用Mattéotti等人(2011)[42]描述的七叶苷琼脂试验。选取的克隆单点接种于含1%(w/v)七叶苷、0.5%(w/v)柠檬酸铁铵、Zeocin(100 μg/mL)和1%(v/v)甲醇的YPD琼脂上,以在AOX1启动子下诱导表达。平板于30°C培养48小时。β-葡萄糖苷酶阳性菌落通过菌体周围出现深棕色至黑色晕圈来鉴定。
【数据】七叶苷浓度:1%(w/v);柠檬酸铁铵浓度:0.5%(w/v);Zeocin浓度:100 μg/mL;甲醇浓度:1%(v/v);培养温度:30°C;培养时间:48h
2.7 异源蛋白表达与诱导
重组毕赤酵母(pPICZαA/bg1)菌落首先在含Zeocin(100 μg/mL)的YPD琼脂平板上于30°C培养48小时。挑取单菌落转接至BMGY培养基,30°C、240 rpm振荡培养48小时至对数中期(OD600在2至6之间)。细胞通过室温下1500 × g离心5分钟收获,用100 mM磷酸钾缓冲液(pH 6.0)洗涤一次。细胞沉淀重悬于BMMY培养基中,培养物调整至OD600为1.0。AOX1启动子下的蛋白表达通过在30°C、240 rpm振荡培养6天进行。为维持诱导,每24小时补充新鲜甲醇,评估0.5%、1.0%和1.5%(v/v)浓度以优化酶产量[43]。每24小时收集样品用于生长监测和酶活性分析。培养物于4°C、10,000 × g离心10分钟。上清液分离后用于后续酶活性测定。所有实验均使用三个独立生物学重复进行。
【数据】Zeocin浓度:100 μg/mL;YPD培养温度:30°C;YPD培养时间:48h;BMGY培养温度:30°C;BMGY转速:240 rpm;BMGY培养时间:48h;OD600:2-6;离心条件:1500 × g,5min,室温;缓冲液:100 mM磷酸钾,pH 6.0;BMMY起始OD600:1.0;诱导温度:30°C;诱导转速:240 rpm;诱导时间:6天;甲醇补充:每24h,0.5%/1.0%/1.5%(v/v);离心条件:10,000 × g,10min,4°C;生物学重复:n=3
2.8 重组酶的SDS-PAGE表征
蛋白表达通过12%分离聚丙烯酰胺凝胶的SDS-PAGE按标准方案检测。无细胞培养上清液与等体积5×样品上样缓冲液(含Tris-HCl、SDS、溴酚蓝、甘油和β-巯基乙醇)混合。样品于100°C加热5分钟使蛋白变性,随后9400 × g离心3分钟去除不溶性物质。电泳初始在50 V下进行30分钟,随后在100 V下继续至适当分离。凝胶用考马斯亮蓝R-250染色以显示蛋白条带[44,45]。上清液中总蛋白浓度使用Bradford法测定,以牛血清白蛋白(BSA)作为校准标准[46]。
【数据】凝胶浓度:12%;加热温度:100°C;加热时间:5min;离心条件:9400 × g,3min;电泳电压:50V(30min)→100V;染色剂:考马斯亮蓝R-250;蛋白定量方法:Bradford法;标准品:BSA
2.9 β-葡萄糖苷酶活性测定
β-葡萄糖苷酶活性使用对硝基苯基-β-D-吡喃葡萄糖苷(pNPG)作为底物,通过标准比色法测定。简言之,20 μL酶样品与180 μL溶于50 mM柠檬酸钠缓冲液(pH 5.5)的5 mM pNPG混合。反应混合物于50°C孵育10分钟。加入100 μL冰冷0.5 M碳酸钠(Na₂CO₃)终止反应。β-葡萄糖苷酶水解pNPG释放对硝基苯酚(pNP),形成黄色。释放的pNP吸光度使用微板分光光度计在405 nm处测定。为确定……
【数据】底物:pNPG;底物浓度:5 mM;缓冲液:50 mM柠檬酸钠,pH 5.5;酶样品体积:20 μL;底物体积:180 μL;反应温度:50°C;反应时间:10min;终止液:0.5 M Na₂CO₃,100 μL;检测波长:405 nm
研究结果
3.1 bg1基因的克隆与序列验证
本研究首先将来自黑曲霉BE-2的密码子优化bg1开放阅读框(ORF)克隆至pUC载体进行质粒扩增和序列确认。通过DNA测序验证基因序列并确认插入片段处于正确阅读框且无突变。测序结果显示清晰的峰形,确认了克隆bg1插入片段的预期序列。重组质粒进一步通过EcoRI和KpnI双酶切确认,随后在0.8%琼脂糖凝胶上分析。如图2所示,酶切后的重组质粒产生两条明显条带,分别对应bg1插入片段(约2.6 kb)和载体骨架(约3.6 kb)。这些片段的总大小与预期质粒大小约6.2 kb一致。预期插入片段和载体骨架片段的出现确认了bg1基因的成功克隆。
【数据】插入片段大小:约2.6 kb;载体骨架大小:约3.6 kb;质粒总大小:约6.2 kb;琼脂糖凝胶浓度:0.8%;限制性内切酶:EcoRI、KpnI
3.2 毕赤酵母中的线性化与转化
使用SacI线性化的pPICZαA/bg1构建体转化毕赤酵母X-33后,转化体在YPD-Zeocin琼脂平板上筛选。使用AOX1特异性引物通过PCR筛选多个克隆的bg1基因组整合。阳性菌落基因组DNA的PCR扩增产生约3.0 kb的明显条带(对应2.6 kb bg1插入片段加上约500 bp载体序列),确认了整合表达盒的存在(图3)。
【数据】线性化酶:SacI;PCR产物大小:约3.0 kb;bg1插入片段:2.6 kb;载体序列:约500 bp
3.3 重组毕赤酵母菌株的定性筛选
携带pPICZαA/bg1的重组毕赤酵母转化体使用七叶苷琼脂试验筛选β-葡萄糖苷酶活性。在30°C孵育48小时后,重组菌落因七叶苷水解在含七叶苷平板上产生明显的深棕色至黑色晕圈,表明β-葡萄糖苷酶活性。相比之下,野生型毕赤酵母X-33对照未显示晕圈形成,表明缺乏β-葡萄糖苷酶活性(图4)。
【数据】培养温度:30°C;培养时间:48h;七叶苷浓度:1%(w/v);阳性结果:深棕色至黑色晕圈
3.4 BMMY培养基中甲醇诱导表达条件的优化
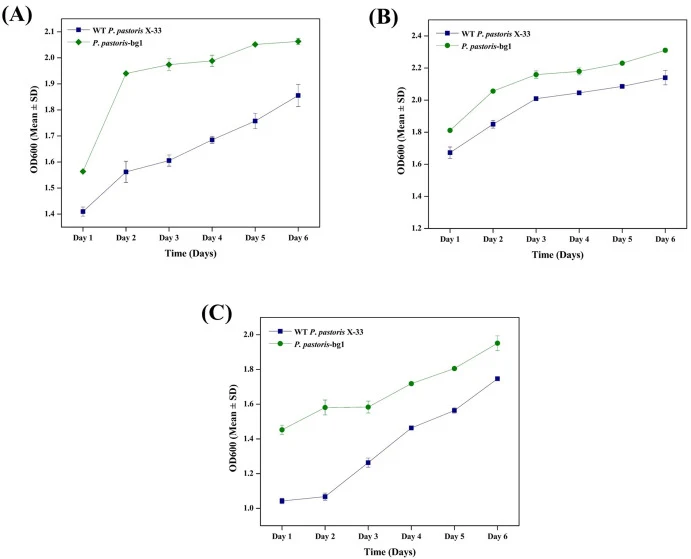
在BMMY培养基中监测重组毕赤酵母-bg1在不同甲醇浓度下6天的生长情况,并与野生型毕赤酵母X-33进行比较(图5)。在所有条件下,重组菌株的细胞密度均高于野生型菌株。在测试浓度中,1.0%甲醇在第6天支持最高的细胞密度,表明表达诱导高效。0.5%甲醇下生长略低但稳定,而1.5%甲醇导致生长相对降低,表明1.0%甲醇是重组毕赤酵母中bg1基因甲醇诱导表达的最佳浓度。
【数据】甲醇浓度:0.5%、1.0%、1.5%;培养时间:6天;最佳甲醇浓度:1.0%;最高细胞密度时间:第6天
3.5 重组Bg1的SDS-PAGE分析
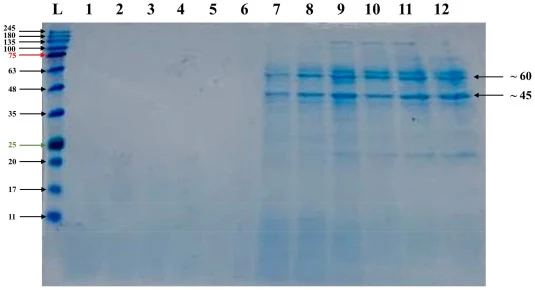
进行SDS-PAGE分析以检测重组Bg1蛋白的表达。培养上清液中的蛋白在12%聚丙烯酰胺凝胶上分离,并使用考马斯亮蓝R-250染色显示。泳道L代表用于估计蛋白大小的分子量标记。泳道1-5对应野生型毕赤酵母菌株,在预期分子量处未显示明显蛋白条带。相比之下,泳道6-12代表重组菌株,显示明显的蛋白条带。在约60 kDa处观察到一条显著条带,与重组Bg1的预期分子量一致。还检测到约45 kDa的额外条带。约60 kDa显著条带特异性地出现在重组菌株中,加上检测到的β-葡萄糖苷酶活性,支持重组Bg1在毕赤酵母中的表达(图6)。
【数据】凝胶浓度:12%;重组Bg1分子量:约60 kDa;额外条带:约45 kDa;染色剂:考马斯亮蓝R-250
3.6 重组Bg1的生化表征与热稳定性
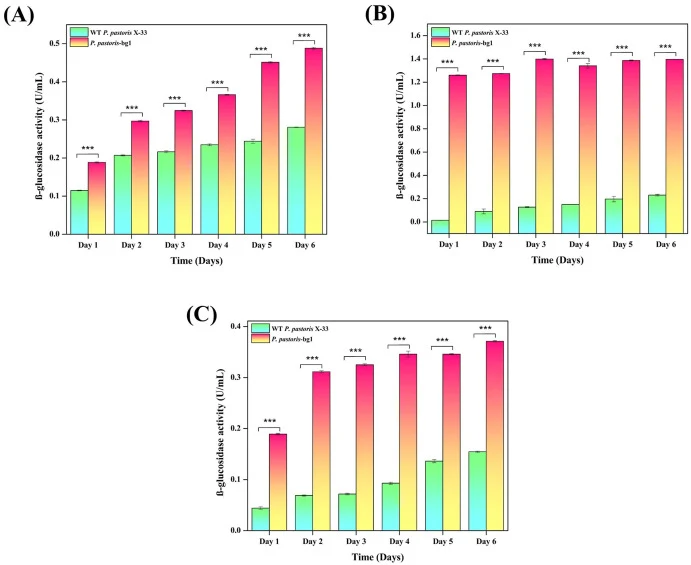
使用pNPG作为底物测定β-葡萄糖苷酶活性,并将重组菌株的活性与野生型毕赤酵母X-33进行比较。重组毕赤酵母-bg1菌株在整个培养期间的β-葡萄糖苷酶活性显著高于野生型菌株。在不同甲醇浓度诱导下,酶活性从第1天到第6天逐渐增加。如图7A、B和7C所示,酶活性分别在0.5%、1%和1.5%甲醇下测定。最高活性在第6天观察到。重组菌株在0.5%甲醇下显示0.48813 ± 0.00225 U/mL,在1%甲醇下显示1.39584 ± 0.00145 U/mL,在1.5%甲醇下显示0.3712 ± 0.00150 U/mL,而野生型菌株仅显示低背景活性。在测试条件中,1%甲醇产生最高的β-葡萄糖苷酶活性,表明其为重组酶生产的最佳诱导浓度。
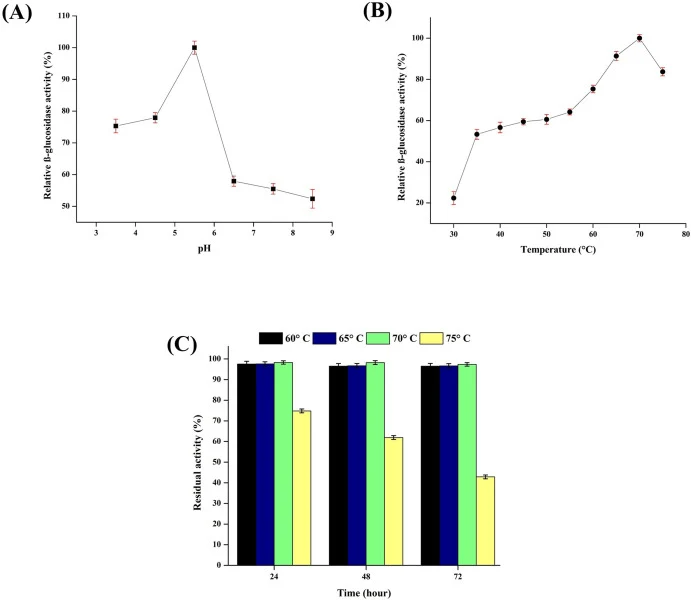
pH和温度对酶活性的影响分别如图8A和8B所示。酶在pH 5.5和70°C下表现出最大活性,表明重组Bg1酶在中等酸性条件和相对高温下功能良好。Bg1的热稳定性通过在60、65、70和75°C下孵育24、48和72小时进一步测试(图8C)。酶在60-70°C下保持高度稳定,在整个孵育期间保留超过96%的残余活性。相比之下,75°C下稳定性下降,残余活性随孵育时间增加而降低。这些结果表明重组Bg1在测试条件下于60-70°C具有显著的热稳定性。
【数据】底物:pNPG;0.5%甲醇酶活:0.48813 ± 0.00225 U/mL;1%甲醇酶活:1.39584 ± 0.00145 U/mL;1.5%甲醇酶活:0.3712 ± 0.00150 U/mL;最高活性时间:第6天;最适pH:5.5;最适温度:70°C;热稳定性:60-70°C保留>96%残余活性(72h);75°C稳定性下降
3.7 农业废弃物的比较糖化效率
使用重组β-葡萄糖苷酶(pPICZαA/bg1)和含重组β-葡萄糖苷酶与重组内切葡聚糖酶(pPICZαA/TreglI)的酶混合物评估农业废弃物SCB、WS和RS的糖化效率(图9)。在所有底物中,还原糖释放随孵育时间从24小时到72小时增加。单独使用重组β-葡萄糖苷酶处理产生的还原糖释放高于未处理生物质。酶混合物获得最高的糖化效率,72小时后SCB约96%、WS约86%、RS约94%。这些值基于每种生物质的初始纤维素含量计算,因此代表实验条件下纤维素部分的转化效率。酶混合物观察到的糖化改善表明重组β-葡萄糖苷酶和重组内切葡聚糖酶在生物质水解过程中的协同作用。
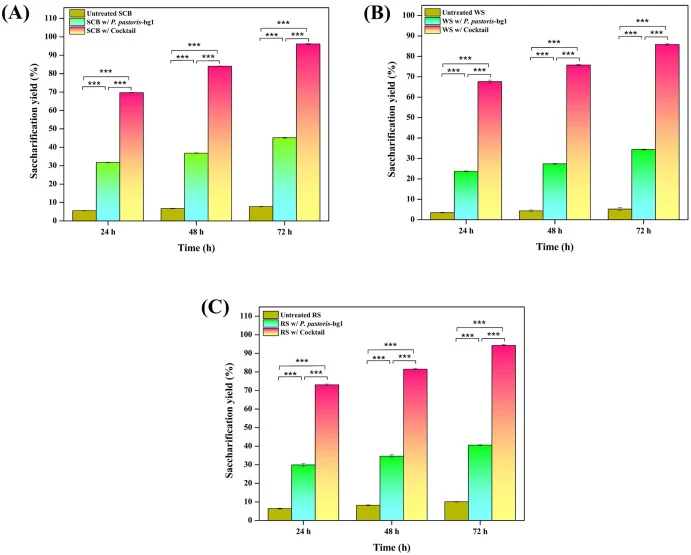
【数据】底物:SCB(甘蔗渣)、WS(小麦秸秆)、RS(稻草);糖化时间:24h、48h、72h;SCB糖化效率:约96%;WS糖化效率:约86%;RS糖化效率:约94%;酶混合物:β-葡萄糖苷酶+内切葡聚糖酶
3.8 扫描电子显微镜(SEM)
使用扫描电子显微镜检查酶处理后的SCB、WS和RS的结构变化。未处理样品(图10A-D和G)显示紧凑光滑的表面和紧密堆积的纤维。用重组β-葡萄糖苷酶(pPICZαA/bg1)处理的样品(图10B-E和H)显示部分纤维破坏和表面粗糙度增加。用含β-葡萄糖苷酶和内切葡聚糖酶的酶混合物(pPICZαA/TreglI)处理的样品(图10C-F和I)观察到更大的结构损伤,特征为裂纹、断裂纤维和多孔结构,表明木质纤维素基质受到更大程度的破坏。
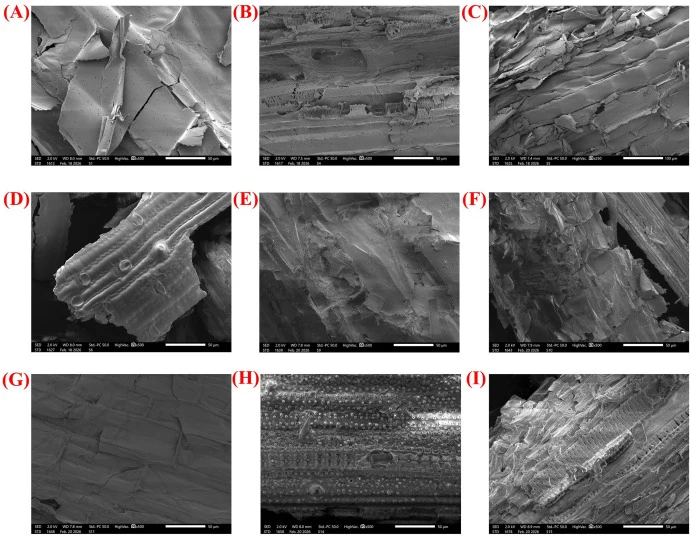
【数据】未处理样品:紧凑光滑表面、紧密堆积纤维;β-葡萄糖苷酶处理:部分纤维破坏、表面粗糙度增加;酶混合物处理:裂纹、断裂纤维、多孔结构
3.9 傅里叶变换红外光谱(FT-IR)
FT-IR分析用于评估酶处理后SCB、WS和RS的化学变化(图11A-C)。与未处理样品相比,用重组β-葡萄糖苷酶(pPICZαA/bg1)处理的生物质显示光谱变化,表明木质纤维素结构的修饰。在用含β-葡萄糖苷酶和重组内切葡聚糖酶的酶混合物处理的样品中观察到更明显的变化,表明生物质降解增强。
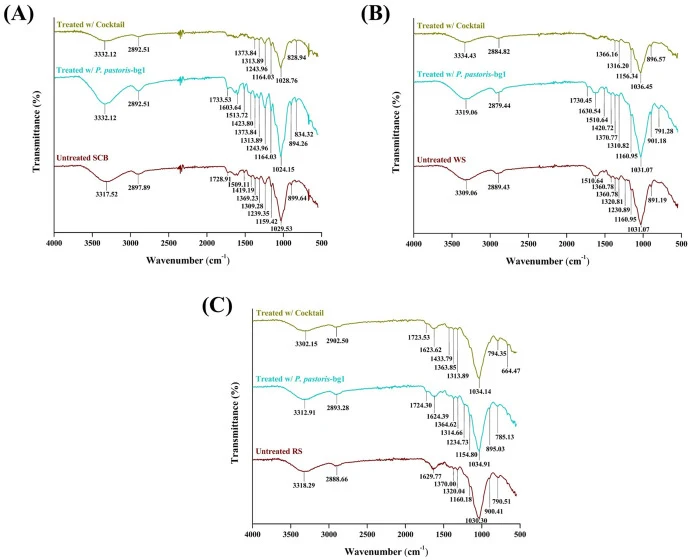
【数据】β-葡萄糖苷酶处理:光谱变化,木质纤维素结构修饰;酶混合物处理:更明显的光谱变化,降解增强
3.10 X射线衍射(XRD)
进行XRD分析以评估酶处理后农业废弃物SCB、WS和RS的结构变化(图12)。所有生物质的CrI在酶处理后均增加……
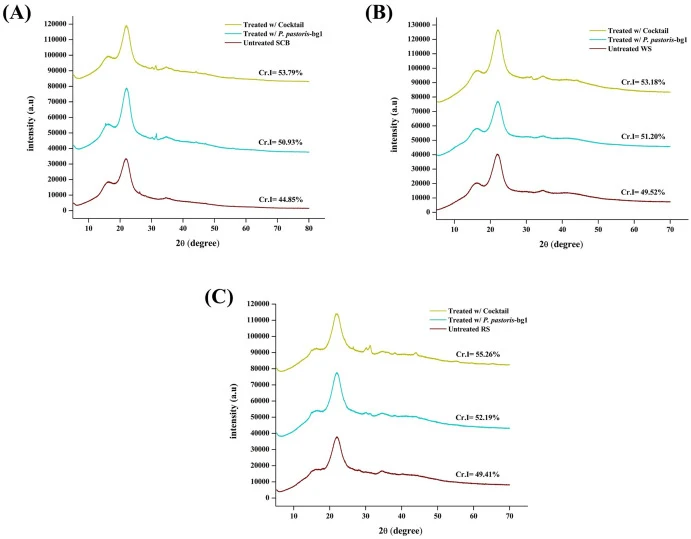
【数据】原文节选在此处中断,CrI具体数值未详述
讨论与解读
β-葡萄糖苷酶在纤维素水解中发挥关键作用,通过将纤维二糖转化为葡萄糖,减少纤维二糖积累并支持纤维素分解酶的活性[50-52]。本研究成功利用AOX1启动子调控的pPICZαA系统在毕赤酵母X-33中表达了β-葡萄糖苷酶基因(bg1)。α-因子分泌信号促进了重组酶的胞外分泌,PCR筛选确认了表达盒的基因组整合。虽然重组β-葡萄糖苷酶在毕赤酵母中的表达已有广泛报道,但本研究聚焦于密码子优化的黑曲霉Bg1的表征及其与重组内切葡聚糖酶联合用于物理预处理农业废弃物水解的应用。重组菌株在整个甲醇诱导期间显示高于野生型菌株的β-葡萄糖苷酶活性,1%甲醇第6天获得最高活性。0.5%和1.5%甲醇下观察到的较低活性表明甲醇浓度影响重组酶生产。1.5%甲醇下相对较低的生长可能与甲醇暴露增加有关。
编译者解读:本研究的技术路线清晰务实——密码子优化+α因子分泌信号+组成型高拷贝整合,是毕赤酵母表达真菌糖苷酶的经典策略。重组Bg1在70°C、pH 5.5下表现出的高热稳定性和酸性偏好,使其非常适配木质纤维素同步糖化发酵(SSF)工艺。与内切葡聚糖酶复配后对三种农业废弃物的糖化效率均超过85%,验证了协同作用。但需注意,该研究停留在实验室规模,未涉及酶用量成本核算和放大可行性;此外,1.5%甲醇下生长受抑的机制(甲醇毒性还是代谢负担)原文未深入解析,这可能是后续工程优化的切入点。
参考来源
期刊:Biomass and Bioenergy, 2027
DOI: 10.1016/j.biombioe.2026.110131
DOI: 10.1016/j.biombioe.2026.110131