来源:Time-resolved transcriptomics reveals mechanisms of acute and sustained low-pH adaptation in Corynebacterium glutamicum(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
谷氨酸棒杆菌是氨基酸工业生产的核心细胞工厂,但发酵过程中酸性副产物积累会导致菌液pH下降,破坏胞质pH稳态并诱发氧化胁迫,最终削弱产量。低pH胁迫具有动态性和工艺依赖性,区分"急性酸冲击"与"持续酸化"两种模式下的响应机制,对提升菌株鲁棒性至关重要。本研究整合活力测定、时间序列RNA-seq与遗传验证,系统解析了pH 4.0急性冲击与pH 5.5持续胁迫下的适应策略,鉴定出离子转运、铁调控、β-酮己二酸代谢、脲酶及呼吸模块等关键耐酸元件,并发现其贡献具有模式依赖性。
研究背景
生物制造是实现低碳、高值化学品、药物、生物燃料和生物材料生产的重要途径。谷氨酸棒杆菌是一种含分枝菌酸细胞被膜的革兰氏阳性放线菌,作为微生物细胞工厂大规模生产L-谷氨酸和L-赖氨酸(两者年产量合计超过数百万吨),并不断拓展至有机酸、醇类、萜类、二胺和重组蛋白等产品谱。基因组编辑、系统生物学和合成生物学的进步进一步巩固了其作为领先微生物底盘的地位。
在高密度发酵且缺乏有效pH控制的条件下,酸性代谢物(如氨基酸和有机酸)的积累会迅速降低菌液pH(pHe),扰乱胞质pH(pHi)稳态并损害生产力。细菌采用多种策略抵御低pH胁迫,包括通过F1F0-ATPase驱动的质子外排、有机酸外排、产铵和耗质子脱羧反应主动清除过量胞内质子。同时,细胞通过维持质子动力势(PMF)、清除活性氧(ROS)和重塑细胞被膜来减轻低pH诱导的损伤。此前的转录组研究为理解谷氨酸棒杆菌的分子响应提供了基础性认识。
研究方法
2.1 菌株与培养基
谷氨酸棒杆菌ATCC 13032从−80 °C甘油保藏管中复苏,划线接种于TSBG琼脂平板(胰酶大豆肉汤添加0.5% w/v葡萄糖,pH 7.0)。单菌落在TSBG中于30 °C、220 rpm培养,随后转接至含4%(w/v)葡萄糖的CGXII基本培养基中。胁迫实验中,使用对数中期种子培养物接种新鲜CGXII培养基(详见下文)。
【数据】菌株:Corynebacterium glutamicum ATCC 13032;培养基:TSBG琼脂(0.5% w/v葡萄糖,pH 7.0)、CGXII基本培养基(4% w/v葡萄糖);温度:30°C;转速:220 rpm;保藏温度:−80°C
2.2 低pH条件
为评估低pH冲击响应,使用盐酸(HCl)将CGXII培养基预调至初始pH 3.0–7.0,以0.5单位为增量。培养物以约1 × 10⁸ CFU/mL(OD600 ≈ 1.0)接种,于30 °C、220 rpm孵育。菌液pH使用台式pH计(SevenCompact,Mettler Toledo,上海,中国)监测。
转录组研究采用两种确定的低pH模式。急性冲击(非pH-stat):将对数生长期细胞(约1 × 10⁸ CFU/mL,pH 7.0)快速转移至pH 4.0培养基中,平行转移至pH 7.0作为对照。持续胁迫(pH-stat):培养在5 L生物反应器(Eppendorf,汉堡,德国)中进行,含CGXII和0.1%(v/v)消泡剂。以种子培养物(50 mL TSBG,500 mL挡板瓶,30 °C,220 rpm,8 h)接种3 L工作体积。生物反应器维持30 °C,通过自动加酸/加碱将pH控制在5.5(胁迫)或7.0(对照)。溶氧(DO)通过搅拌和通气速率的级联控制调节。
【数据】pH范围:3.0–7.0(0.5单位增量);接种量:约1 × 10⁸ CFU/mL(OD600 ≈ 1.0);温度:30°C;转速:220 rpm;急性冲击pH:4.0;持续胁迫pH:5.5;对照pH:7.0;生物反应器工作体积:3 L;消泡剂:0.1%(v/v);种子培养:50 mL TSBG,500 mL挡板瓶,30°C,220 rpm,8 h
2.3 活力测定
低pH胁迫下的细胞活力通过系列稀释和平板计数评估,方法如前所述[16]。急性冲击:在转移至pH 4.0和pH 7.0后0、1、4和24 h取样。持续胁迫:在接种至pH控制生物反应器(pH 5.5 vs pH 7.0)后0、1、8和18 h取样。样品在0.9%(w/v)生理盐水中1:10系列稀释,使用easySpiral 40自动螺旋接种仪(Interscience,Saint-Nom-la-Bretèche,法国)将50 μL等分试样涂布于TSBG琼脂。平板于30 °C孵育24 h,活力计数以log10(CFU/mL)报告。
【数据】稀释液:0.9%(w/v)生理盐水;稀释比例:1:10;涂布量:50 μL;平板培养基:TSBG琼脂;孵育温度:30°C;孵育时间:24 h;取样时间点(急性):0、1、4、24 h;取样时间点(持续):0、1、8、18 h
2.4 RNA-seq与计算分析
急性冲击:在1和4 h从pH 7.0(对照)和pH 4.0(胁迫)培养物中取样;排除24 h时间点,因为细胞再生长和培养基中和会混淆对急性低pH冲击的直接转录响应。持续胁迫:在1、8和18 h从pH 7.0(对照)和pH 5.5(胁迫)培养物中取样。细胞离心沉淀(12,000×g,2 min,4 °C),去除上清,沉淀在液氮中速冻。总RNA使用磁珠法Total RNA Kit(DP761,天根生化,北京,中国)提取;RNA完整性(RIN >8)使用Bioanalyzer 2100(Agilent Technologies)验证。文库制备并在Illumina NovaSeq 6000平台测序(双端250 bp;每样本11.4–17.3百万读对;Genewiz,北京,中国)。读段使用Trimmomatic进行质量过滤和修剪,用FastQC评估,使用HISAT2 v2.2.1比对至谷氨酸棒杆菌ATCC 13032基因组(GenBank GCA_000011325.1)[17]。读段汇总使用featureCounts[18]。差异表达使用Degust中的limma-voom方法计算,将每个胁迫条件与同一时间点的pH 7.0对照进行比较[19]。|log2 fold change| > 1且错误发现率(FDR)< 0.05的基因视为差异表达。功能富集[基因本体(GO)、京都基因与基因组百科全书(KEGG)]和主成分分析(PCA)在R中进行。
【数据】离心条件:12,000×g,2 min,4°C;RNA完整性:RIN >8;测序平台:Illumina NovaSeq 6000;读长:双端250 bp;读对数量:11.4–17.3百万/样本;比对工具:HISAT2 v2.2.1;基因组:GCA_000011325.1;差异表达阈值:|log2FC| > 1,FDR < 0.05;取样时间点(急性):1、4 h;取样时间点(持续):1、8、18 h
2.5 报告基因特征分析
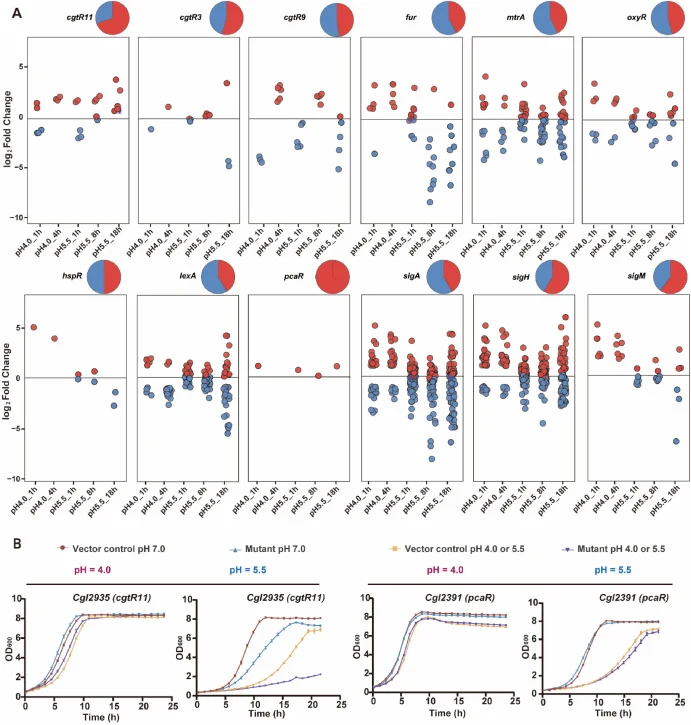
将差异表达统计与CoryneRegNet 7.0的转录调控网络整合,以鉴定低pH胁迫下的关键调控驱动因子[20]。报告转录因子(TF)按照报告框架计算,其中每个TF的Z-score定义为Z = (μ target – μ bg)/σ bg,使用–log10(校正p值)作为基因显著性的度量[21]。调控相互作用注释为激活、抑制或双重调控,去除冗余或模糊的边。低丰度基因(平均每百万计数 <1)被排除。
【数据】调控网络:CoryneRegNet 7.0;Z-score公式:Z = (μ target – μ bg)/σ bg;显著性度量:–log10(校正p值);低丰度过滤阈值:平均CPM <1
2.6 单基因过表达和敲除突变体验证
单基因过表达菌株从阵列化IPTG(异丙基-β-D-硫代半乳糖苷)诱导文库中选取,在含卡那霉素(25 μg/mL)的CGXII培养基中培养(补充表S1)。在指示情况下,基因过表达用0.05 mM IPTG诱导,方法如前所述[22]。此外,敲除突变体通过自杀质粒介导的同源重组使用pK18mobsacB构建。简言之,扩增每个靶基因约1 kb的上游和下游同源臂,连接至BamHI线性化的pK18mobsacB以生成相应的敲除质粒,通过电穿孔引入亲本菌株以实现等位基因交换。突变体候选者通过菌落PCR验证,并进一步通过Sanger测序确认[23]。过表达和敲除菌株的生长验证均在急性和持续低pH胁迫条件下进行。生长使用MicroScreen HT自动微生物生长曲线分析仪(格林仪器有限公司,天津,中国)实时监测。急性冲击:将对数生长期细胞(pH 7.0,OD600 ≈ 1)快速转移至pH 4.0的CGXII中,平行转移至pH 7.0作为对照;持续低pH胁迫:将对数生长期细胞(pH 7.0,OD600 ≈ 1)快速转移至调至pH 5.5[用39.04 g/L 2-(N-吗啉代)乙磺酸,MES缓冲;有效缓冲范围pH 5.5–6.7;pKa ≈6.1]和pH 7.0的CGXII中。所有培养物于220 rpm、30 °C孵育24 h。所有实验进行生物学三重复。最大比生长速率(μ max)从指数期计算为ln(OD600)对时间的斜率。简言之,OD600值进行ln转换,在时间序列上执行滑动7点线性回归。指数期定义为R²首次达到≥0.90的连续窗口,当R²降至0.90以下时结束。μ max取合格窗口中的最大斜率。计算在Excel中完成。
【数据】抗生素:卡那霉素25 μg/mL;IPTG诱导浓度:0.05 mM;同源臂长度:约1 kb;限制性内切酶:BamHI;自杀质粒:pK18mobsacB;急性冲击pH:4.0;持续胁迫pH:5.5(MES缓冲,39.04 g/L,有效缓冲范围pH 5.5–6.7,pKa ≈6.1);对照pH:7.0;温度:30°C;转速:220 rpm;时间:24 h;生物学重复:3;μ max计算:滑动7点线性回归,R² ≥0.90
2.7 荧光显微镜成像
低pH胁迫下的细菌细胞使用碘化丙啶(PI)染色通过荧光显微镜观察,遵循既定方案[24]。在急性冲击(pH 4.0)和持续胁迫(pH 5.5)启动后2和4 h取样,以pH 7.0为对照,离心沉淀(5600×g,3 min,4 °C),用生理盐水(0.1%,w/w)洗涤三次,重悬至约1 × 10⁸细胞/mL。PI添加至终浓度1 μM,样品在室温黑暗孵育3 min。染色后,细胞用生理盐水洗涤三次,然后加载到玻璃载玻片上。图像使用配备63 ×油镜的荧光显微镜(Apotome-3,ZEISS,德国)采集。PI荧光在激发波长535 nm和发射波长570–620 nm检测。对同一视野采集明场和荧光图像。图像处理和定量使用ImageJ进行。
【数据】取样时间点:2、4 h;离心条件:5600×g,3 min,4°C;洗涤液:0.1%(w/w)生理盐水;细胞浓度:约1 × 10⁸细胞/mL;PI终浓度:1 μM;孵育时间:3 min;孵育温度:室温;激发波长:535 nm;发射波长:570–620 nm;物镜:63 ×油镜
研究结果
3.1 急性低pH冲击后的生长抑制、活力丧失与菌液碱化
急性低pH冲击显著抑制生长和存活(图1)。随着初始pH从7.0降至3.0,细菌增殖逐渐下降,在pH 3.0–3.5时完全停止生长(图1A)。动力学分析显示,比生长速率(μ)随pH下降而急剧降低;在pH 4.0时,μ在8 h内保持>0.2 h⁻¹,之后生长停止,而在pH ≤ 3.5时接近零(图1B)。ODmax在pH 7.0时达到峰值(31.5),在pH 4.0时降至约18,在pH ≤ 3.5时接近基线;而μ max在pH 6.5时最高(0.44 h⁻¹),pH 7.0时略低(0.42 h⁻¹),pH 4.0时约0.25 h⁻¹,pH ≤ 3.5时接近零(图1C)。
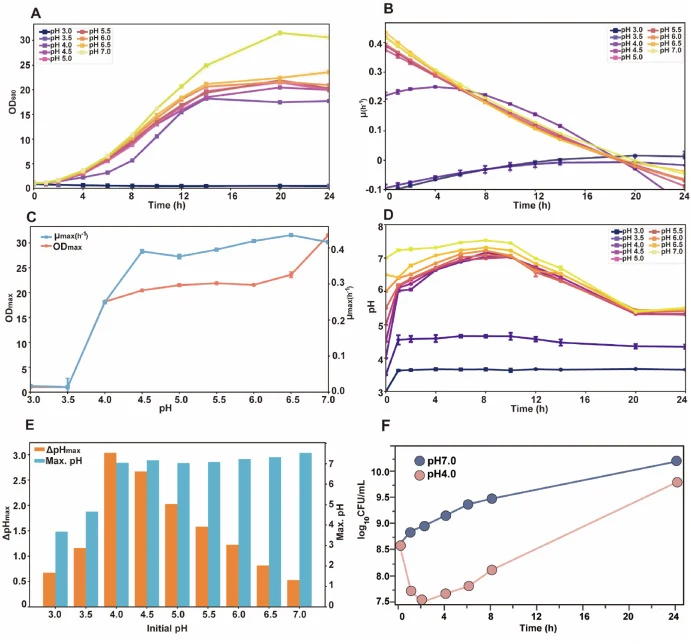
培养基pH呈现双相漂移(图1D和E)。在初始pH 4.0–7.0时,培养物在8 h内碱化至pH 7.0–7.2,然后在24 h前重新酸化至约5.5,表明谷氨酸棒杆菌在低pH冲击后主动改变其环境(图1D)。最大漂移(ΔpH ≈ 3.0)发生在pH 4.0时,可能反映了初始适应期间活跃的耗质子或质子中和代谢过程。在初始pH ≤ 3.5时,pHmax和ΔpHmax均显著降低,表明代谢崩溃(图1E)。活力测定证实了这些趋势(图1F)。在pH 7.0时,活菌计数从4.1 × 10⁸增加到24 h时的1.6 × 10¹⁰ CFU/mL,而在pH 4.0时,活菌计数在2 h内下降1.1 log10(约93%损失),并在24 h时部分恢复至6.3 × 10⁹ CFU/mL(图1F)。pH 4.0时OD600早期增加而CFU降低,表明积累了活的但不可培养(VBNC)细胞、死细胞和细胞碎片,而非真正的增殖。与这一假设一致,PI染色显示pH 4.0挑战后2和4 h分别有62%和55%的PI阳性细胞,而在pH 7.0时几乎未观察到(图S1)。用盐酸(HCl)或硫酸(H₂SO₄)施加的急性pH 4.0冲击产生几乎不可区分的生长抑制(图S2)。根据滴定体积,相关反离子负荷适中,即约6.7 mM Cl⁻(每250 mL培养基140 μL 12 M HCl)对比2.4 mM SO₄²⁻(每250 mL培养基600 μL 1 M H₂SO₄),支持表型主要由质子胁迫而非阴离子特异性效应驱动的结论。总体而言,这些数据确定pH 4.0为低pH冲击的临界阈值,并揭示菌液碱化是早期适应响应的标志。
【数据】pH范围:3.0–7.0;ODmax:pH 7.0时31.5,pH 4.0时约18,pH ≤3.5时接近基线;μ max:pH 6.5时0.44 h⁻¹,pH 7.0时0.42 h⁻¹,pH 4.0时约0.25 h⁻¹,pH ≤3.5时接近零;ΔpH:pH 4.0时约3.0;活菌计数:pH 7.0从4.1 × 10⁸增至1.6 × 10¹⁰ CFU/mL(24 h),pH 4.0下降1.1 log10(约93%损失,2 h),恢复至6.3 × 10⁹ CFU/mL(24 h);PI阳性细胞:pH 4.0时2 h为62%,4 h为55%,pH 7.0时几乎为零;反离子负荷:Cl⁻约6.7 mM(140 μL 12 M HCl/250 mL),SO₄²⁻约2.4 mM(600 μL 1 M H₂SO₄/250 mL)
3.2 持续低pH胁迫下的受限生长与代谢
通过比较控制pH 5.5和7.0的平行分批发酵评估细菌对持续低pH胁迫的响应,两者溶氧均维持在约30%(图2A)。pH 7.0发酵显示瞬时pH偏移,可能由于过度滴定,在3.4 h短暂偏差至3.7,在6.6 h至10.7,而pH 5.5保持更稳定(图2A)。pH 5.5时生长显著受抑(图2B和C);最终OD600在pH 5.5时达到15.9,而pH 7.0时为53.8(约70%降低),μ max从0.68 h⁻¹(pH 7.0)降至0.34 h⁻¹(pH 5.5,约50%降低)(图2C)。pH 5.5时约6 h的滞后期先于缓慢再生长,表明恢复前发生了代谢重编程。pH 7.0对照的活菌计数从4.1 × 10⁸增加到24 h时的2.0 × 10¹³ CFU/mL(约4.7-log10增加),而在pH 5.5时计数最初下降36.5%,然后恢复并稳定在约10⁹ CFU/mL(图2D)。pH 5.5时早期OD600增加与CFU下降的解耦再次表明光密度捕获的是VBNC细胞、死细胞和碎片,而非活跃的细胞分裂和增殖,PI染色显示持续酸性条件下59%和51%的膜受损细胞进一步支持了这一点(图S1)。总体而言,持续pH 5.5施加了慢性代谢抑制,使μ max减半,最终OD600降低70%,并导致显著的适应滞后,与急性模式不同,后者引起快速活力崩溃随后通过环境中和部分恢复。
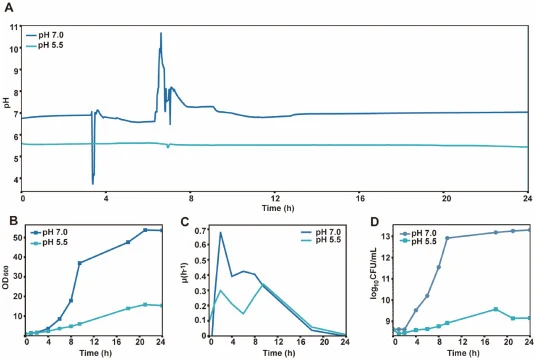
【数据】溶氧:约30%;pH 7.0瞬时偏移:3.4 h至3.7,6.6 h至10.7;最终OD600:pH 5.5为15.9,pH 7.0为53.8(约70%降低);μ max:pH 7.0为0.68 h⁻¹,pH 5.5为0.34 h⁻¹(约50%降低);滞后期:约6 h(pH 5.5);活菌计数:pH 7.0从4.1 × 10⁸增至2.0 × 10¹³ CFU/mL(24 h,约4.7-log10增加),pH 5.5最初下降36.5%后稳定在约10⁹ CFU/mL;PI阳性细胞:pH 5.5时59%和51%
3.3 全局转录重编程
低pH暴露在两种模式下均诱导了显著的、时间依赖的转录重编程。PCA清楚地将胁迫样本与pH 7.0对照分离,重复间一致性高(图3A和B)。差异表达基因(DEG)数量在两种模式下均随时间增加(补充表S2)。急性冲击引发快速且广泛的转录响应,相对于pH 7.0,1 h时有905个DEG(491上调,414下调),4 h时有847个(458上调,389下调)(图3C)。核心集包括235个持续上调基因和154个持续下调基因,以及14个从1 h下调转为4 h上调的基因和15个呈相反趋势的基因。持续胁迫产生较温和的早期响应,随时间加剧,1 h时有643个DEG(400上调,243下调),8 h时有608个(277上调,331下调),18 h时有1857个(851上调,1006下调),核心集较小(29个持续上调,22个持续下调)(图3D),反映了适应过程中的动态转录重编程(补充表S2)。
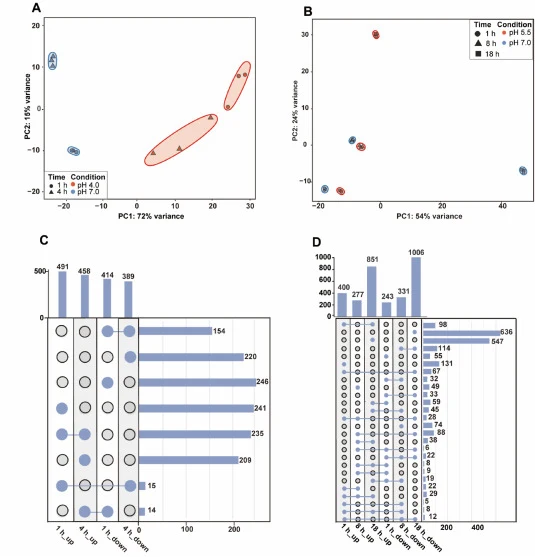
在共享的1 h时间点,pH 4.0和pH 5.5下仅147个基因共诱导、105个基因共抑制,定义了酸胁迫早期响应的狭窄核心集,包括β-酮己二酸分解代谢、跨膜转运和NAD生物合成的激活,以及TCA循环、有氧呼吸、Na⁺/H⁺反向转运和精氨酸生物合成的同步抑制。相比之下,在1 h时,24个基因在急性冲击下被抑制但在持续胁迫下被诱导,包括糖酵解中的eno、ppc、tpi、fda、pyk和pgk,27个基因显示相反模式,包括gltBD、groESL、dnaK和Na⁺/溶质同向转运体,表明碳分解代谢和离子转运功能的模式特异性早期分配。通路分析显示,急性冲击快速(1–4 h)增加与芳香化合物降解、膜组织和转运相关的转录本,同时抑制中心碳代谢、氨基酸生物合成和氧化磷酸化,与生长停滞和资源转向胁迫防御一致。在持续胁迫下,早期变化(1 h)包括苯甲酸降解和糖酵解的富集,以及氨基酸和次级代谢物生物合成、碳和硫代谢及氧化磷酸化的降低(补充表S3)。在8 h时,下调集中在ABC(ATP结合盒)转运体和丙酸代谢。到18 h时,翻译和细胞被膜功能部分恢复,而代谢和外排过程仍然活跃,表明持续胁迫下的渐进恢复。GO术语分析与这些趋势一致。急性胁迫上调胁迫响应和蛋白质重折叠类别,同时下调糖酵解和氨基酸生物合成(补充表S4)。持续胁迫显示L-精氨酸生物合成、铁稳态和输入通路的早期富集,随后是翻译和细胞壁功能的晚期恢复。总之,结果表明不同的时间响应,特征是急性低pH冲击时快速的、以防御为中心的系统关闭,以及持续低pH胁迫下分阶段的、资源节约型适应,膜、转运体、铁处理和核糖体机器成为适应网络的核心组件。
【数据】DEG数量(急性):1 h为905(491上调,414下调),4 h为847(458上调,389下调);DEG数量(持续):1 h为643(400上调,243下调),8 h为608(277上调,331下调),18 h为1857(851上调,1006下调);核心集(急性):235持续上调,154持续下调,14下调转上调,15上调转下调;核心集(持续):29持续上调,22持续下调;共享1 h:147共诱导,105共抑制;模式特异性1 h:24个急性抑制/持续诱导,27个急性诱导/持续抑制
3.4 中心碳代谢的转录重塑
急性pH 4.0冲击在1 h内引起糖酵解、TCA循环、回补反应和PPP的快速广泛抑制,同时选择性诱导甲基柠檬酸操纵子(Cgl0694–96和Cgl0657–59)……
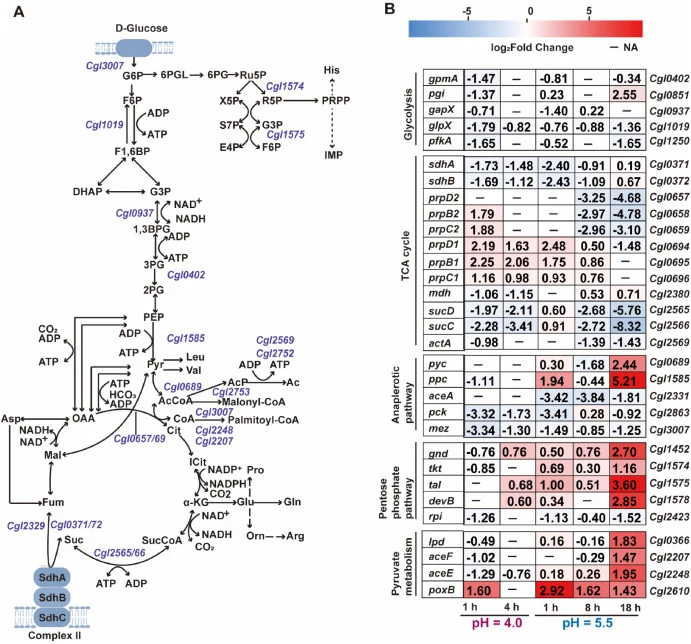
【数据】原文节选至此结束,后续具体数据原文未详述
3.5 能量与离子转运适应
(原文节选未包含此节完整内容)
【数据】原文未详述
3.6 氨基酸、尿素和芳香族代谢对低pH适应的贡献
(原文节选未包含此节完整内容)
【数据】原文未详述
3.7 ROS和机械敏感离子通道对低pH适应的贡献
(原文节选未包含此节完整内容)
【数据】原文未详述
3.8 介导低pH适应的转录调控因子
(原文节选未包含此节完整内容)
【数据】原文未详述
讨论与解读
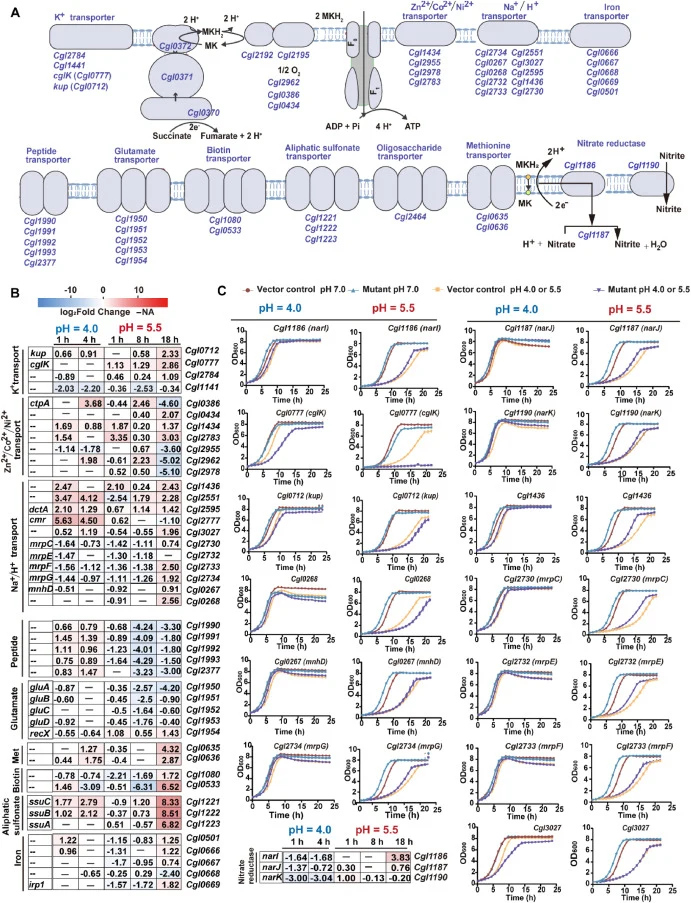
工业发酵中,微生物频繁暴露于由酸性副产物积累、铵同化失衡、混合不均和滴定延迟或不均引起的动态低pH胁迫。这些过程产生瞬时pH下降随后持续中等酸度,形成严重挑战胞内稳态的波动。为反映这两种模式,研究选择pH 4.0作为急性冲击条件,pH 5.5作为允许长期适应的持续亚致死温和酸胁迫(图1和图2)。该实验设计通过明确区分急性冲击与持续适应,补充了此前的研究。先前工作在不含缓冲液的乳酸基条件下检查急性低pH响应,而长期pH适应在缓冲培养中跨广泛pH范围用H₂SO₄调节pH进行分析。与急性胁迫研究一致,研究观察到在高度酸性pH下快速生长崩溃,支持pH 4.0作为临界冲击阈值,而pH 5.5位于可持续胁迫的下边界附近,因此适合模拟长期适应(图1和图2)。酸种类和培养基组成在不同研究间也存在差异,可塑造响应模式。乳酸可能引入超出质子胁迫的弱酸效应,且在丰富TSB培养基中测试,而缓冲控制的pH适应在含低碳源的基本培养基中进行。
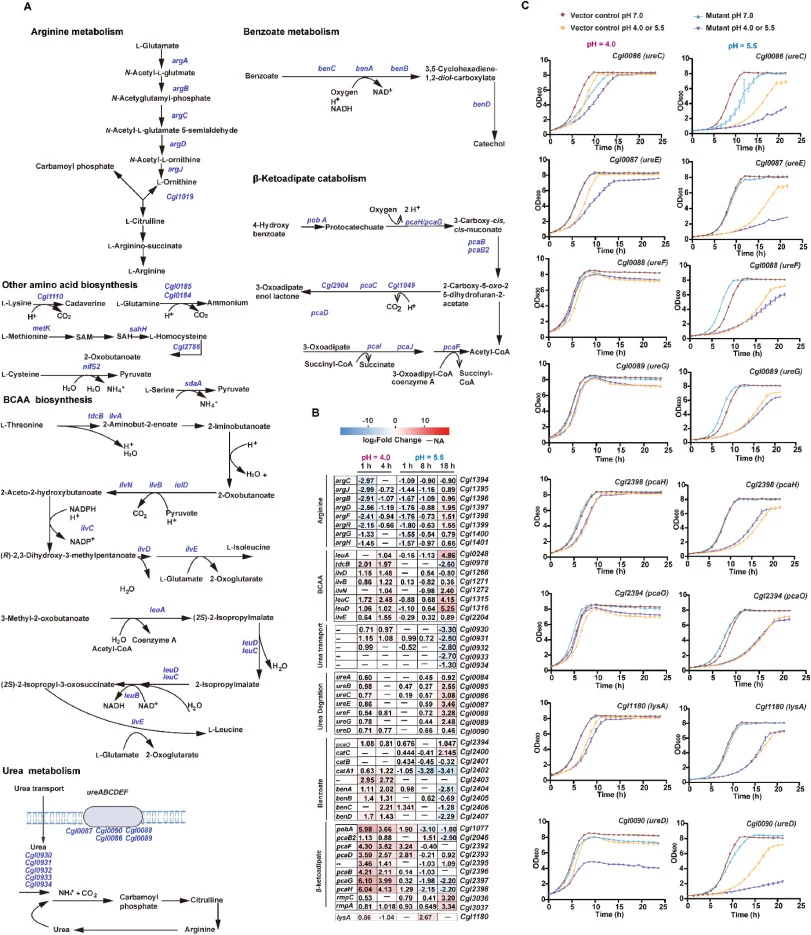
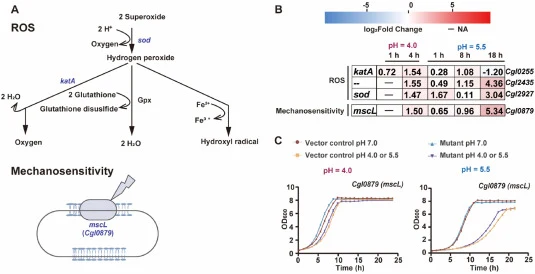
本研究首次提供了谷氨酸棒杆菌低pH适应的时间分辨、模式特异性转录组解析,鉴定出可用于工程化耐酸菌株的关键模块。通过整合活力测定、时间序列RNA-seq和遗传验证,研究揭示了急性冲击下以氧化保护和离子通量控制为主的快速全局重编程,与持续胁迫下渐进代谢重塑、细胞被膜强化和氧化还原缓冲之间的本质差异。功能验证通过过表达和敲除突变体确认了离子转运、铁调控、β-酮己二酸代谢、脲酶和呼吸模块对低pH耐受性的贡献,且这些贡献具有模式依赖性。
编译者解读:该研究的方法学价值在于将"急性冲击"与"持续胁迫"明确分离,避免了此前研究中两种模式混淆导致的响应信号叠加。时间序列设计(1、4、8、18 h)结合报告基因特征分析,使调控驱动因子的推断更具时间分辨率。然而,研究局限于转录组和生长表型层面,缺乏代谢通量、胞内pH和ATP水平的直接测量,部分模块(如呼吸链重塑)的因果贡献仍需生化验证。此外,验证实验在基本培养基中进行,与工业发酵的复杂基质差异较大,工程化应用前需在真实发酵条件下评估候选靶点的稳健性。总体而言,该工作为谷氨酸棒杆菌耐酸工程提供了可操作的靶点清单和模式分层的设计逻辑。
参考来源
期刊:Synthetic and Systems Biotechnology, 2026
DOI:10.1016/j.synbio.2026.03.004
作者:Yuqing Hao
DOI: 10.1016/j.synbio.2026.03.004