来源:Metabolic engineering and adaptive laboratory evolution enhance squalene production in Yarrowia lipolytica(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
角鲨烯是一种具有免疫调节、抗氧化、抗炎及抗癌等多种生物活性的天然三萜类化合物,在食品、化妆品和营养保健品领域商业前景广阔。传统深海鲨鱼肝脏提取面临病原体污染风险,植物提取则受季节性和高成本限制。本研究以解脂耶氏酵母为底盘,通过脂滴工程、MVA途径调控、酶融合策略及过氧化氢驱动的适应性实验室进化,系统优化角鲨烯合成,最终在2.4 L生物反应器中实现4.53 g/L的角鲨烯滴度。
研究背景
角鲨烯是一种天然无环三萜类化合物,具有免疫调节、抗氧化、抗炎、抗癌及改善心血管健康等多种生物活性。据Growth Insights全球市场数据,2024年角鲨烯市场价值1.45亿美元,预计以4.4%的年复合增长率增长,到2033年达到2.15亿美元。在制药领域,高纯度角鲨烯可用作疫苗佐剂。传统动物来源的角鲨烯提取自深海鲨鱼肝油,存在潜在病原体污染风险,限制了其在人用药物中的适用性。植物来源的橄榄油或棕榈油提取虽可作为替代方案,但仍受季节性、高生产成本和复杂纯化工艺的限制。微生物发酵因其生产周期短、绿色化学特性和成本效益而成为有前景的解决方案。随着代谢工程和合成生物学的进展,工程菌株的角鲨烯产量已通过多种策略得到显著提升。
研究方法
2.1 菌株、培养基和培养化学试剂
本研究以本实验室构建的解脂耶氏酵母(Y. lipolytica)菌株YL-1为起始菌株。大肠杆菌DH5α用于构建和扩增质粒。酵母在YPD培养基(10 g/L酵母提取物、20 g/L蛋白胨和20 g/L葡萄糖)中培养。工程酵母菌株在YNB培养基(酵母氮源碱6.7 g/L、葡萄糖20 g/L)中于营养限制条件下筛选。通过在YPD培养基中添加1 g/L的5-氟乳清酸(5-FOA)去除整合的URA3筛选标记。大肠杆菌在LB培养基(蛋白胨10 g/L、NaCl 10 g/L和酵母提取物5 g/L)中培养,添加氨苄青霉素(100 μg/mL)。
【数据】菌株:YL-1(解脂耶氏酵母起始菌株)、大肠杆菌DH5α;培养基:YPD(10 g/L酵母提取物、20 g/L蛋白胨、20 g/L葡萄糖)、YNB(6.7 g/L酵母氮源碱、20 g/L葡萄糖)、LB(10 g/L蛋白胨、10 g/L NaCl、5 g/L酵母提取物);5-FOA浓度:1 g/L;氨苄青霉素浓度:100 μg/mL
2.2 DNA操作
本研究构建的工程菌株和质粒分别列于补充表S2和S3。所有基因均直接从解脂耶氏酵母中克隆。片段通过PCR获得,并使用AxyPrep DNA凝胶回收试剂盒(Axygen,美国)回收。引物信息见补充表S4。质粒构建使用ClonExpress II一步克隆试剂盒(诺唯赞,中国),质粒提取使用AxyPrep质粒小量制备试剂盒(Axygen,美国)。二酰甘油酰基转移酶编码基因DGA1(GenBank ID: 2911905)、磷脂:二酰甘油酰基转移酶编码基因LRO1(GenBank ID: 2911637)、乙酰辅酶A乙酰转移酶编码基因ERG10(GenBank ID: 2907383)、羟甲基戊二酰辅酶A编码基因ERG13(GenBank ID: 2907642)、法尼基焦磷酸合酶编码基因ERG20(GenBank ID: 2912329)和角鲨烯合酶SQS(GenBank ID: 2906604)分别从解脂耶氏酵母Po1f Δku70菌株的cDNA中扩增。来自酿酒酵母的3-羟基-3-甲基戊二酰辅酶A还原酶编码基因ScHMG1(GenBank ID: 854900)经密码子优化后合成(金唯智,苏州,中国)。质粒pUC19用于质粒构建,重组质粒在大肠杆菌DH5α中使用Clone Xpress II一步克隆试剂盒(诺唯赞,南京,中国)组装。所有功能表达盒用引物扩增后,通过Frozen-EZ酵母转化试剂盒II(Zymo Research,Irvine,美国)转化到解脂耶氏酵母中。
【数据】基因:DGA1(GenBank ID: 2911905)、LRO1(GenBank ID: 2911637)、ERG10(GenBank ID: 2907383)、ERG13(GenBank ID: 2907642)、ERG20(GenBank ID: 2912329)、SQS(GenBank ID: 2906604)、ScHMG1(GenBank ID: 854900);质粒:pUC19;试剂盒:ClonExpress II一步克隆试剂盒、AxyPrep DNA凝胶回收试剂盒、AxyPrep质粒小量制备试剂盒、Frozen-EZ酵母转化试剂盒II、Clone Xpress II一步克隆试剂盒
2.3 工程酵母的培养
摇瓶发酵:将单个酵母菌落接种到10 mL YPD培养基中,在30 °C、200 rpm条件下培养24 h。将所得种子培养液接种到20 mL新鲜YPD培养基中,在相同条件下培养48 h制备种子培养液。将种子培养液以10%(v/v)接种量接种到50 mL YNB培养基中,在30 °C、200 rpm条件下培养72 h。补料分批发酵在2.4 L平行生物反应器(上海T&J生物工程有限公司,中国)中进行。将解脂耶氏酵母单菌落接种到10 mL YPD液体培养基中,在30 °C、200 rpm条件下培养24 h。随后,将5 mL培养液转移到含有100 mL YPD培养基的250 mL摇瓶中制备种子培养液。然后,将50 mL种子培养液接种到1.0 L发酵培养基中培养240 h。发酵参数包括:温度维持28 °C,搅拌速度控制在300–850 rpm范围内,溶解氧浓度维持在20%以上,通气量2.0 vvm。初始葡萄糖浓度设定为60 g/L,24 h后以2 g/L/h的速率补加800 g/L葡萄糖。
【数据】摇瓶发酵:接种量10%(v/v)、YNB培养基50 mL、温度30 °C、转速200 rpm、时间72 h;补料分批发酵:生物反应器2.4 L、温度28 °C、搅拌速度300–850 rpm、溶解氧>20%、通气量2.0 vvm、初始葡萄糖60 g/L、补料葡萄糖800 g/L、补料速率2 g/L/h、补料起始时间24 h、培养时间240 h
2.4 H₂O₂诱导的ALE
ALE过程参照Jiang等人的方法并做了一些修改。将工程菌株SY-8的单菌落接种到10 mL YPD液体培养基中,在30 °C、200 rpm条件下培养至稳定期(OD600 = 8.0–10.0)。然后,将500 μL培养液与1 mL 100 mM过氧化氢(H₂O₂)混合,在相同条件下振荡30 min。处理后,用超纯水(ddH₂O)洗涤细胞一次,重悬于1 mL ddH₂O中。随后,将500 μL重悬细胞转移到新鲜10 mL YPD培养基中,再次培养至稳定期。该培养液随后作为下一轮H₂O₂处理的接种物。H₂O₂浓度从100 mM以100 mM的增量逐步增加至600 mM(100、200、300、400、500和600 mM),每个浓度维持连续两代。总共进行了12轮迭代适应。将工程解脂耶氏酵母菌株SY-8划线到YNB琼脂平板上,在30 °C培养2天。将单菌落接种到10 mL YPD液体培养基中,在30 °C、200 rpm条件下培养至600 nm光密度(OD600)达到8.0–10.0(用紫外分光光度计测量)。然后,将500 μL培养液转移到10 mL无菌离心管中,与1 mL 100 mM过氧化氢(H₂O₂)混合,在30 °C、200 rpm条件下振荡30 min。处理后,用超纯水(ddH₂O)洗涤细胞一次,重悬于1 mL ddH₂O中。最后,将500 μL重悬细胞转移到新鲜10 mL YPD培养基中,培养至恢复正常生长(OD600值达到8.0–10.0)。在相同H₂O₂浓度(100 mM)下重复该处理一次。随后H₂O₂浓度以100 mM的增量逐步增加至600 mM(100、200、300、400、500和600 mM)。总共在12代中进行了12轮迭代适应。
【数据】菌株:SY-8;H₂O₂浓度梯度:100、200、300、400、500、600 mM;每浓度维持代数:2代;总适应轮数:12轮;处理时间:30 min;处理温度:30 °C;转速:200 rpm;OD600起始:8.0–10.0;接种量:500 μL培养液+1 mL H₂O₂;洗涤液:ddH₂O
2.5 角鲨烯的提取和检测
从50 mL培养物中收集细胞沉淀,在−40 °C真空条件下冻干。将50 mg冻干生物质与500 μL甲醇(国药集团化学试剂有限公司,中国)使用高通量研磨仪(40 Hz,6 min)匀浆,随后加入1 mL氯仿(国药集团化学试剂有限公司,中国),在30 °C、200 rpm条件下搅拌提取12 h。使用氮吹浓缩仪蒸发溶剂,细胞用1 mL正己烷(国药集团化学试剂有限公司,中国)复溶。角鲨烯滴度通过气相色谱(GC)在Rtx-5柱(30 m × 0.32 mm × 0.25 μm)上定量,使用高纯氮气作为载气(1.5 mL/min恒流模式)。火焰离子化检测器(FID)温度设定为300 °C,柱温程序包括:初始200 °C保持4 min,以20 °C/min升温至280 °C,最终280 °C保持4 min。
【数据】冻干温度:−40 °C;生物质用量:50 mg;甲醇体积:500 μL;研磨条件:40 Hz、6 min;氯仿体积:1 mL;提取条件:30 °C、200 rpm、12 h;复溶液:1 mL正己烷;GC色谱柱:Rtx-5(30 m × 0.32 mm × 0.25 μm);载气:高纯氮气、1.5 mL/min恒流;FID温度:300 °C;柱温程序:200 °C保持4 min→20 °C/min升至280 °C→280 °C保持4 min
2.6 脂质的提取和检测
称取0.05 g冻干细胞,加入500 μL甲醇,使用高通量研磨仪在40 Hz下匀浆6 min。向粉碎后的溶液中加入1 mL氯仿,在30 °C、200 rpm条件下孵育4 h。使用氮吹浓缩仪干燥上清液以获得脂质。
【数据】冻干细胞用量:0.05 g;甲醇体积:500 μL;研磨条件:40 Hz、6 min;氯仿体积:1 mL;孵育条件:30 °C、200 rpm、4 h
2.7 分析方法
使用SBA-40E酶生物传感器分析仪(山东省科学院生物研究所,济南,中国)测定发酵液中残留葡萄糖水平。使用Five Easy Plus pH计(梅特勒-托利多,上海,中国)测定发酵液pH。细胞生物量以冻干后的干细胞重量表示,使用SCIENTZ-10 N真空冷冻干燥机(宁波新芝生物科技股份有限公司,宁波,中国)和分析天平测定。
【数据】仪器:SBA-40E酶生物传感器分析仪、Five Easy Plus pH计、SCIENTZ-10 N真空冷冻干燥机;测量指标:残留葡萄糖、pH、干细胞重量
2.8 酵母脂滴的尼罗红染色
培养48 h后收集细胞,用PBS(pH 7.4)洗涤,重悬至OD600为1.0。将溶于二甲基亚砜(DMSO)的尼罗红溶液(1 mg/ml)直接加入细胞悬液(0.1 v/v),在室温避光条件下孵育30 min。离心收集染色细胞,用PBS洗涤一次,重悬于PBS中,然后转移到玻璃载玻片上。荧光观察使用激光扫描共聚焦显微镜(LSCM)。
【数据】培养时间:48 h;PBS pH:7.4;OD600:1.0;尼罗红浓度:1 mg/ml;溶剂:DMSO;染色比例:0.1 v/v;孵育时间:30 min;孵育温度:室温;避光条件:是
研究结果
3.1 脂滴工程增强解脂耶氏酵母角鲨烯合成
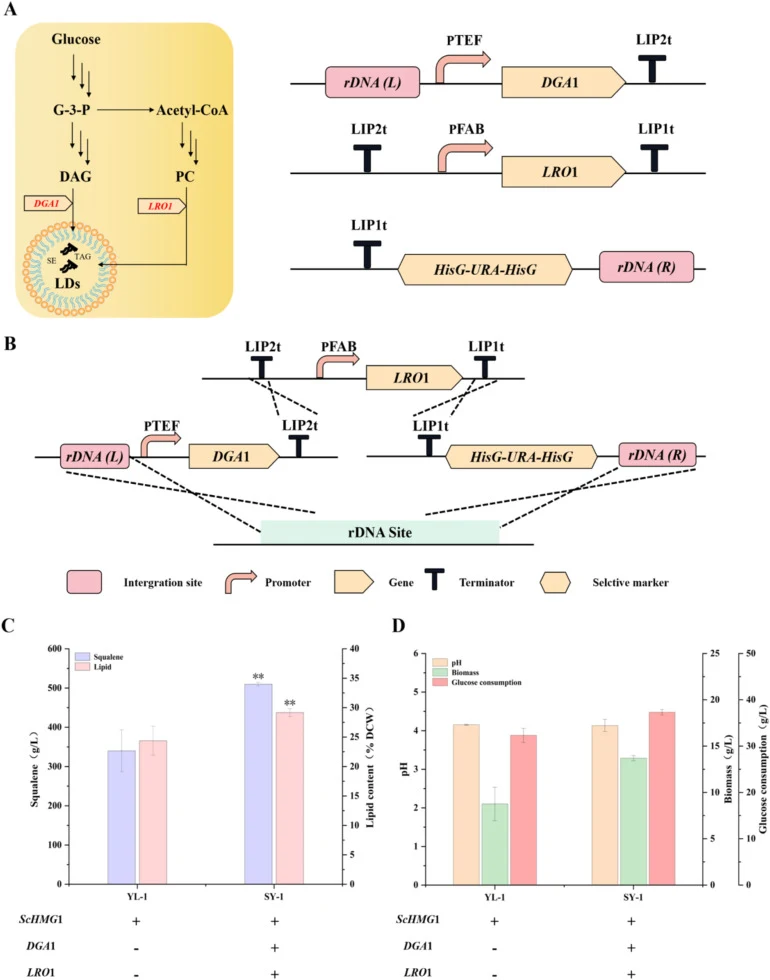
在解脂耶氏酵母中,过表达脂滴(LDs)形成关键基因DGA1和LRO1可增强角鲨烯的胞内储存能力(图2A)。以YL-1为起始菌株,以28S rDNA为整合位点构建DGA1和LRO1的共过表达盒,随后基因组整合到YL-1中产生工程菌株SY-1(图2B)。工程菌株SY-1的角鲨烯滴度为509.76 mg/L,比对照菌株YL-1高49.93%。此外,SY-1的脂质含量从24.3% DCW增加到29.2% DCW,比YL-1高16.78%(图2C)。此外,SY-1的生物量为13.7 g/L,比YL-1的8.8 g/L高35.77%。同时,SY-1的葡萄糖摄取比YL-1高15.82%,比对照菌株YL-1增加49.93%(图2D)。这些结果表明,DGA1和LRO1的共过表达可以增强工程菌株SY-1中角鲨烯合成和脂质积累,并促进菌株生长。
尼罗红荧光强度与胞内脂质含量相关,可用于定量评估脂质积累。为评估工程菌株中LDs的形态变化并研究角鲨烯产量、脂质含量与LDs之间的相关性,对菌株YL-1和SY-1在摇瓶发酵48 h后进行尼罗红染色和激光扫描共聚焦显微镜(LSCM)观察。结果显示,与YL-1相比,SY-1的尼罗红荧光强度显著增强,LD密度也增加(图3)。结果进一步表明,LDs的增加与脂质含量的升高呈正相关。
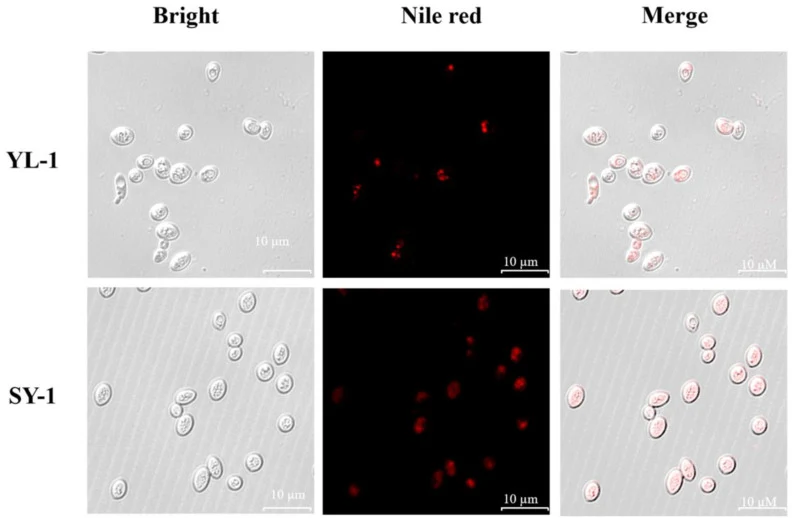
LDs是酵母细胞中中性脂质的主要储存细胞器,主要由三酰甘油和甾醇酯组成。例如,角鲨烯、α-红没药烯和番茄红素等亲脂性化合物储存在LDs中。增强LDs生物发生可扩大中性脂质储存能力,促进萜类化合物的高效胞内积累。例如,Lu等人表明,过表达参与三酰甘油合成调控的基因(GPD1、PAH1和DGA1)导致脂滴增殖并增加胞内α-红没药烯积累。Wei等人过表达DGA1并敲除PEX10和URE2,导致三酰甘油合成增强,解脂耶氏酵母中角鲨烯产量增加115倍。我们之前的研究已成功表达DGA1以促进角鲨烯积累。这些结果表明,增强解脂耶氏酵母中三酰甘油合成可实现更高效的角鲨烯生产。DGA1和LRO1的共过表达能够调控三酰甘油合成并增强解脂耶氏酵母中萜类化合物的积累。
【数据】菌株:SY-1(DGA1+LRO1共过表达)、YL-1(对照);角鲨烯滴度:SY-1 509.76 mg/L、YL-1对照;提升幅度:49.93%;脂质含量:SY-1 29.2% DCW、YL-1 24.3% DCW;脂质提升:16.78%;生物量:SY-1 13.7 g/L、YL-1 8.8 g/L;生物量提升:35.77%;葡萄糖摄取提升:15.82%;整合位点:28S rDNA;培养时间:48 h
3.2 调控MVA途径促进解脂耶氏酵母角鲨烯合成
在酵母中,角鲨烯生物合成途径遵循甲羟戊酸(MVA)途径,分为上游(包括ERG10、ERG13和HMGR)、中游(包括ERG12、ERG8、ERG19和IDI)和下游(包括ERG20和SQS)模块。为研究增强MVA途径通量对角鲨烯产量的影响,通过分别过表达内源性ERG10、ERG13、ERG20和SQS对菌株SY-1进行工程改造,分别构建菌株SY-2、SY-3、SY-4和SY-5(图4A)。SY-2的角鲨烯产量为497.29 mg/L,与SY-1相比略有下降。同时,SY-3、SY-4和SY-5的角鲨烯产量分别为541.81 mg/L、569.05 mg/L和620.45 mg/L,与SY-1相比分别增加6.28%、11.63%和21.63%(图4B)。此外,SY-2、SY-3、SY-4和SY-5的生物量均高于SY-1(图4C)。结果表明,过表达ERG13、ERG20和SQS可增加解脂耶氏酵母中MVA途径通量,从而提高角鲨烯产量并改善菌株生长。相反,过表达ERG10的菌株SY-2表现出角鲨烯滴度降低和生物量增加,表明碳通量重新分配至细胞生长而非萜类合成。由于MVA途径中乙酰辅酶A转化的初始步骤由ERG10催化,进一步增加角鲨烯产量可能需要扩大胞质乙酰辅酶A池。这些结果表明,通过过表达ScHMG1将通量从上游途径导向下游途径的策略比将通量从上游途径导向甲羟戊酸更有效。
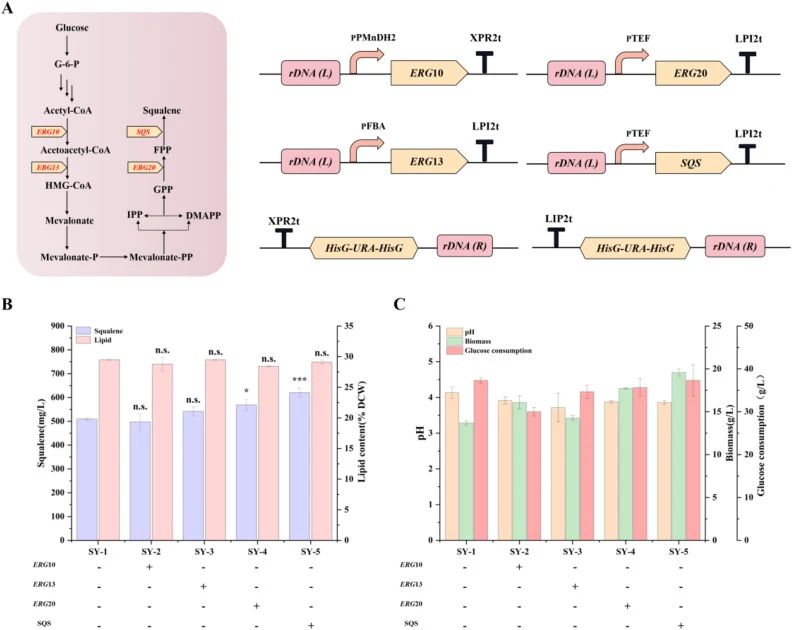
上调MVA途径被视为酵母中角鲨烯生产的关键策略。先前的研究一致强调该途径中的特定酶作为关键控制节点。例如,Ma等人证明ERG10、ERG13和tHMGR的协同过表达可显著增强通量并增加角鲨烯滴度。Shi等人和Xu等人证实了ERG10、ERG13、tHMG1、ERG12、IDI和ERG20在角鲨烯合成途径中的功能。Wei等人鉴定了解脂耶氏酵母角鲨烯生产中MVA途径的限速反应,表明ERG9和ERG20是进一步提高三萜滴度的理想工程靶点。基于已报道的角鲨烯生物合成途径中关键节点(包括ERG10、ERG13、ERG20和SQS)的作用,本研究选择这些基因进行单独评估。因此,在过表达ScHMGR的基础菌株中分别过表达关键基因ERG10、ERG13、ERG20和SQS,以评估它们对角鲨烯通量和积累的影响。结果表明,过表达ERG13、ERG20和SQS有效增强了碳流向角鲨烯的导入并显著提高了其产量,证实这些酶是提高角鲨烯生物合成的关键代谢工程靶点。
【数据】菌株:SY-2(ERG10过表达)、SY-3(ERG13过表达)、SY-4(ERG20过表达)、SY-5(SQS过表达);角鲨烯滴度:SY-2 497.29 mg/L、SY-3 541.81 mg/L、SY-4 569.05 mg/L、SY-5 620.45 mg/L;相比SY-1提升:SY-3 6.28%、SY-4 11.63%、SY-5 21.63%;SY-2较SY-1略降
3.3 ERG20-SQS融合酶对解脂耶氏酵母角鲨烯生物合成的影响
先前的研究表明,将ERG20(法尼基焦磷酸合酶)与萜类合酶融合是减少前体损失和提高萜类化合物滴度的有效策略。最近,Wei等人进行了ERG20与ScERG9的融合表达,导致热带假丝酵母中角鲨烯产量增强。基于这些方法,我们采用两种不同的融合策略来评估ERG20与角鲨烯合酶(SQS)融合对解脂耶氏酵母角鲨烯合成的影响。以SY-1为亲本菌株,通过ERG20和SQS直接融合构建菌株SY-6。此外,通过柔性连接肽GGGGS介导的ERG20和SQS融合产生菌株SY-7(图5A)。SY-6和SY-7的角鲨烯滴度分别为607.42 mg/L和675.50 mg/L,与SY-1相比分别增加19.09%和32.43%(图5B)。此外,SY-6和SY-7的生物量分别比SY-1高50.05%和55.38%(图5C)。与直接融合相比,柔性连接肽促进ERG20和SQS之间的高效底物通道化,同时减少结构干扰,增强角鲨烯合成。此外,在菌株SY-6和SY-7中观察到的角鲨烯滴度与脂质含量之间的负相关表明碳通量成功重定向(图5B)。乙酰辅酶A是解脂耶氏酵母中MVA途径和脂肪酸生物合成的共同前体。ERG20-SQS酶融合增强了酶间催化效率,从而创造……
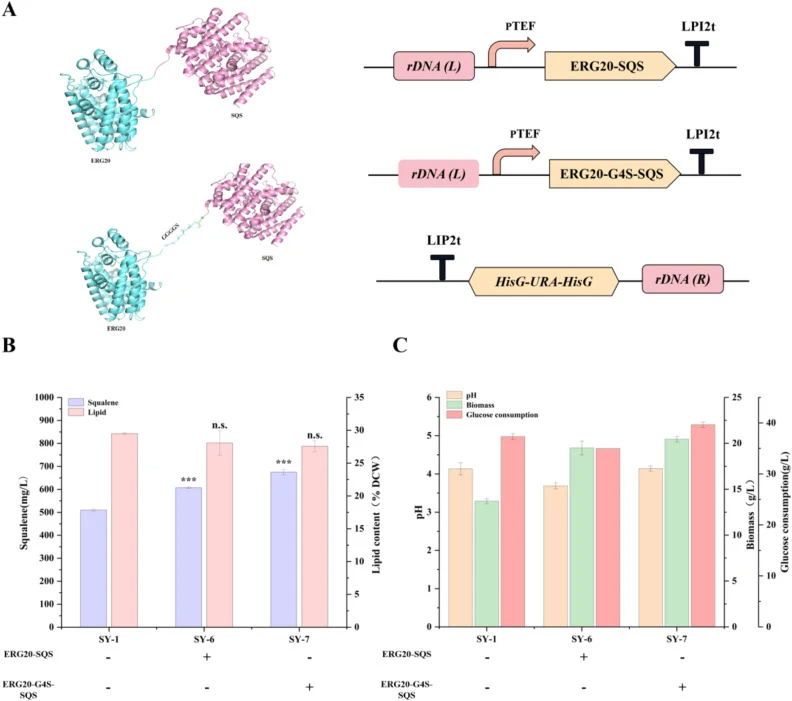
【数据】菌株:SY-6(ERG20-SQS直接融合)、SY-7(GGGGS连接肽融合);角鲨烯滴度:SY-6 607.42 mg/L、SY-7 675.50 mg/L;相比SY-1提升:SY-6 19.09%、SY-7 32.43%;生物量提升:SY-6 50.05%、SY-7 55.38%;连接肽序列:GGGGS
讨论与解读
本研究通过多维工程策略和适应性实验室进化系统优化了解脂耶氏酵母中角鲨烯的生物合成。首先,增强LDs增殖以提高角鲨烯储存能力。其次,实施ERG20和SQS之间的酶融合策略以提高催化效率并将代谢通量导向角鲨烯生物合成。然后,通过过表达ScHMG1增强MVA途径。最后,应用ALE提高菌株鲁棒性。最终,在2.4 L生物反应器中通过补料分批发酵实现了4.53 g/L的角鲨烯滴度,单位细胞产量为53.0 mg/g DCW,葡萄糖得率为9.2 mg/g。
编译者解读: 该研究的方法学价值在于将脂滴储存容量扩充、酶融合底物通道化与氧化胁迫驱动的适应性进化三条路线有序叠加,而非简单堆砌。ALE采用H₂O₂梯度胁迫,以12轮迭代筛选出耐受株,为合成生物学中"非理性进化补足理性设计"提供了可复制的操作范式。局限在于角鲨烯得率(9.2 mg/g葡萄糖)仍偏低,碳流向前体乙酰辅酶A的供给瓶颈尚未根本解决,未来或需引入胞质乙酰辅酶A强化模块与NADPH再生策略协同突破。
参考来源
期刊:Synthetic and Systems Biotechnology, 2026
DOI: 10.1016/j.synbio.2026.01.017
DOI: 10.1016/j.synbio.2026.01.017