来源:Leveraging mutagenesis for enhanced enzymatic output: Detergent-stable α-amylase and lipase co-production by Bacillus subtilis on kitchen waste(International Journal of Biological Macromolecules)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
全球每年约13亿吨食物被浪费,其中厨余垃圾富含淀粉与脂质,是微生物发酵的潜在廉价底物。本研究以枯草芽孢杆菌为出发菌株,经EMS诱变获得突变株Bacillus subtilis 250,可在同一发酵体系中同时高产α-淀粉酶与脂肪酶。通过OFAT与响应面法(RSM)序贯优化,两种酶活性分别提升1.53倍和1.45倍,最终产量达89.4 IU/ml和74.1 IU/ml。部分纯化的酶在pH 7、50 °C(α-淀粉酶)和pH 7、60 °C(脂肪酶)表现最佳活性,并与商业洗涤剂高度兼容,展现出厨余垃圾资源化与工业酶联产的应用潜力。
研究背景
快速城市化与饮食结构变化推动了食物生产与消费的增长,也带来了家庭和商业层面废弃物的增加。这类厨余垃圾构成了城市固体废弃物的主要部分。据联合国粮农组织统计,全球每年约13亿吨预加工或剩余食物被浪费,价值约1万亿美元,约占城市固体废弃物总量的70%,相当于全球每年食物总产量的三分之一。传统废弃物处理方式难以有效开发厨余垃圾在微生物发酵中的生化潜力。厨余垃圾主要含淀粉和脂质,可用于生产多种生物产品,但这些有机化合物结构复杂,需要高效稳健的微生物系统才能实现成功转化。酶即是其中一类高价值工业生物产品,因其高效性、专一性和环境友好性而广泛应用于制药、食品加工、生物能源、纺织和造纸等领域。然而,酶的大规模应用常受限于其生产成本与稳定性。
研究方法
2.1 细菌培养与保藏
枯草芽孢杆菌(FCBP-SB0324)分离自巴基斯坦拉合尔菩提树(Ficus religiosa)土壤,由巴基斯坦旁遮普大学第一真菌菌种保藏中心(FCBP)提供。将菌株划线接种于营养琼脂平板,37 °C培养。挑取分离单菌落接种于琼脂斜面(蛋白胨5 g/l、酵母提取物2 g/l、NaCl 5 g/l、琼脂15 g/l),pH 7.0,4 °C保存。菌株定期活化。
【数据】菌株:Bacillus subtilis FCBP-SB0324;培养基:营养琼脂/斜面(蛋白胨5 g/l、酵母提取物2 g/l、NaCl 5 g/l、琼脂15 g/l);pH:7.0;温度:37 °C(培养)、4 °C(保存)
2.2 初步酶学筛选
通过平板试验确认枯草芽孢杆菌产淀粉酶和脂肪酶的能力。检测淀粉酶时,将枯草芽孢杆菌接种于淀粉琼脂,进行革兰碘液试验检测淀粉存在情况。细菌生长周围形成透明圈即确认产淀粉酶。检测脂肪酶时,将枯草芽孢杆菌划线接种于三丁酸甘油酯琼脂平板。细菌生长周围形成透明圈表明产脂肪酶。
【数据】方法:淀粉-琼脂平板+革兰碘液试验(α-淀粉酶);三丁酸甘油酯-琼脂平板(脂肪酶);指示:透明圈形成
2.3 枯草芽孢杆菌诱变
采用甲基磺酸乙酯(EMS)诱变产生可存活突变株。将五种浓度0.5%、1%、1.7%、2.8%和4%(v/v)的EMS分别制备于含3×10⁸ CFU/ml枯草芽孢杆菌细胞的生理盐水中,依次命名为M1、M2、M3、M4和M5。所有试管置于37 °C摇床孵育1小时,随后加入5%(w/v)硫代硫酸钠溶液终止反应。离心15分钟后,用无菌生理盐水洗涤细胞两次。将所有突变菌落涂布于营养琼脂平板,37 °C培养24小时。所有诱变浓度均出现明显的存活细菌菌落,但存活率随EMS浓度增加而下降。对所有突变株进行初步淀粉酶和脂肪酶平板筛选,并进行定量酶学测定。定量酶学测定中酶活性最高的菌株被鉴定为Bacillus subtilis 250,选为最佳突变株用于后续分析。突变株常规保藏于营养琼脂上并定期传代。在反复传代培养中,突变株的活性保持稳定。
【数据】诱变剂:EMS;浓度:0.5%、1%、1.7%、2.8%、4%(v/v);菌液浓度:3×10⁸ CFU/ml;孵育:37 °C、1 h、摇床;终止剂:5%(w/v)硫代硫酸钠;离心:15 min;洗涤:无菌生理盐水×2;培养:37 °C、24 h;筛选方法:平板 assay + 定量酶学测定;最佳突变株:Bacillus subtilis 250
2.4 厨余垃圾预处理
选取过期饼干、面包屑、剩余薯条、熟米饭和废弃植物油作为厨余垃圾用于α-淀粉酶和脂肪酶生产。固体废弃物经干燥、悬浮于水中,轻度匀浆后高压灭菌。废弃植物油经加热、离心后过滤。所有预处理厨余垃圾在干燥条件下室温保存,48小时内使用。严格遵循底物选择、预处理及保存条件和参数,以确保各批次间一致性。
【数据】厨余种类:过期饼干、面包屑、剩余薯条、熟米饭、废弃植物油;固体废弃物处理:干燥→悬浮于水→轻度匀浆→高压灭菌;废弃油脂处理:加热→离心→过滤;保存:干燥、室温、48 h内使用
2.5 发酵与定量酶学测定
为同时表达α-淀粉酶和脂肪酶,将野生型和所有突变株枯草芽孢杆菌接种于含1%预处理厨余垃圾作为底物的营养肉汤中。每个摇瓶接种新鲜培养的细菌培养物,37 °C、150 rpm连续振荡培养3天。发酵液离心,收集培养上清液作为粗酶液用于α-淀粉酶和脂肪酶的定量测定。
【数据】底物浓度:1%预处理厨余垃圾;培养基:营养肉汤;温度:37 °C;转速:150 rpm;时间:3天
2.5.1 α-淀粉酶测定
为定量α-淀粉酶活性,将1%淀粉(溶于50 mM磷酸缓冲液,pH 7)与培养上清液在40 °C孵育20分钟。随后加入DNS试剂,煮沸10分钟,用分光光度计在540 nm处记录吸光度。使用麦芽糖标准曲线测定还原糖生成量。1 U α-淀粉酶活性定义为在测定条件下每分钟释放1 μmol麦芽糖。
【数据】底物:1%淀粉(50 mM磷酸缓冲液,pH 7);温度:40 °C;时间:20 min;显色剂:DNS试剂;煮沸:10 min;检测波长:540 nm;标准曲线:麦芽糖;酶活定义:1 μmol麦芽糖/min
2.5.2 脂肪酶测定
脂肪酶活性采用pNPP法测定。将7 mg pNPP加入65 ml 50 mM Tris-HCl缓冲液(pH 8)中。加入4 ml异丙醇溶解pNPP。加入0.2% Triton X-100乳化释放的棕榈酸残基。将制备溶液与培养上清液按7:3体积比混合,40 °C孵育20分钟。加入300 μl乙醇-丙酮终止反应。用分光光度计在405 nm处测定吸光度。使用对硝基苯酚(pNP)标准曲线测定测定反应中生成的pNP量。1 U脂肪酶活性定义为在测定条件下每分钟释放1 μmol pNP。
【数据】底物:7 mg pNPP + 65 ml 50 mM Tris-HCl(pH 8)+ 4 ml异丙醇 + 0.2% Triton X-100;混合比:溶液:上清液=7:3(v/v);温度:40 °C;时间:20 min;终止剂:300 μl乙醇-丙酮;检测波长:405 nm;标准曲线:pNP;酶活定义:1 μmol pNP/min
2.6 发酵过程参数优化
#### 2.6.1 OFAT优化
采用单因素一次法(OFAT)筛选显著因素并确定各参数的有效范围,用于B. subtilis 250产α-淀粉酶和脂肪酶。物理参数包括温度(25–45 °C)、pH(4–9)和孵育时间(24–120 h),营养参数包括碳源(1%葡萄糖、麦芽糖、乳糖、蔗糖、半乳糖)、氮源(硫酸铵、尿素、蛋白胨、胰蛋白胨、酵母提取物)和诱导物(1%预处理过期饼干、面包屑、剩余薯条、熟米饭和废弃植物油)。
【数据】温度范围:25–45 °C;pH范围:4–9;时间范围:24–120 h;碳源:1%葡萄糖、麦芽糖、乳糖、蔗糖、半乳糖;氮源:硫酸铵、尿素、蛋白胨、胰蛋白胨、酵母提取物;诱导物:1%过期饼干、面包屑、剩余薯条、熟米饭、废弃植物油
#### 2.6.2 响应面法(RSM)优化
采用响应面法(RSM)的面心中心复合设计(CCD)对3个对酶产量有显著影响的有效因素进行最终优化(表1)。设计包含20次运行,其中8个析因点、6个轴向点和6个重复,以确定最佳pH、最佳氮源(酵母提取物)浓度和各自酶的最佳诱导物(70%剩余薯条和30%废弃植物油的混合物)浓度,以实现最大酶产量。CCD的各响应以三变量因素的二阶多项式方程描述:(1)Y₁ = β₀ + β₁A + β₂B + β₃C + β₁₂AB + β₁₃AC + β₂₃BC + β₁₁A² + β₂₂B² + β₃₃C²(2)Y₂ = β₀ + β₁A + β₂B + β₃C + β₁₂AB + β₁₃AC + β₂₃BC + β₁₁A² + β₂₂B² + β₃₃C²,其中Y₁ = α-淀粉酶活性,Y₂ = 脂肪酶活性,β₀ = 常数项,β₁A至β₃C为线性项,β₁₂AB至β₂₃BC为交互项,β₁₁A²至β₃₃C²为二次项。
【数据】设计方法:面心中心复合设计(CCD);运行次数:20(8析因点+6轴向点+6重复);优化因素:pH、诱导物浓度、酵母提取物浓度;最佳诱导物配比:70%剩余薯条+30%废弃植物油
2.7 α-淀粉酶和脂肪酶的部分纯化
通过硫酸铵沉淀法部分纯化酶,α-淀粉酶和脂肪酶分别采用50–80%和40–80%饱和度分级。沉淀溶液在12000 rpm离心。α-淀粉酶沉淀悬浮于50 mM磷酸缓冲液(pH 6.5),脂肪酶沉淀悬浮于50 mM Tris-HCl缓冲液(pH 8.0),并对相同缓冲液透析48小时,每12小时更换缓冲液。采用12%(w/v)凝胶SDS-PAGE评估酶纯度,样品用3×样品缓冲液制备,98 °C加热5分钟。参照标准蛋白Marker(Rainbow™ Marker, Sigma, USA)确定蛋白质分子量。
【数据】纯化方法:硫酸铵沉淀;α-淀粉酶饱和度:50–80%;脂肪酶饱和度:40–80%;离心:12000 rpm;α-淀粉酶缓冲液:50 mM磷酸缓冲液(pH 6.5);脂肪酶缓冲液:50 mM Tris-HCl(pH 8.0);透析:48 h,每12 h换液;SDS-PAGE凝胶:12%(w/v);样品处理:3×样品缓冲液、98 °C、5 min;Marker:Rainbow™ Marker, Sigma, USA
2.8 总蛋白含量定量
采用Lowry法测定粗酶和纯化α-淀粉酶及脂肪酶的总蛋白含量,以牛血清白蛋白(BSA)为标准品。
【数据】方法:Lowry法;标准品:牛血清白蛋白(BSA)
2.9 α-淀粉酶和脂肪酶的表征
#### 2.9.1 最适温度、pH及相应稳定性
通过在20 °C–70 °C温度和pH 4–9范围内进行酶学测定,使用不同缓冲液(pH 4–5柠檬酸缓冲液、pH 6–7磷酸缓冲液、pH 8–9 Tris-HCl缓冲液)确定酶活性的最适条件。在50 °C、60 °C和70 °C以及pH 6、7和8条件下评估酶的热稳定性和pH稳定性,持续240分钟,每30分钟取样一次。
【数据】温度范围:20–70 °C;pH范围:4–9;缓冲液:柠檬酸(pH 4–5)、磷酸(pH 6–7)、Tris-HCl(pH 8–9);热稳定性温度:50 °C、60 °C、70 °C;pH稳定性:pH 6、7、8;时间:240 min;取样间隔:30 min
#### 2.9.2 表观酶动力学
使用淀粉和pNPP底物进行表观动力学测定。
【数据】底物:淀粉(α-淀粉酶)、pNPP(脂肪酶);原文未详述具体动力学参数
研究结果
3.1 产α-淀粉酶和脂肪酶突变株的筛选
对EMS诱导的突变株通过平板法和定量法筛选α-淀粉酶和脂肪酶产量。诱变时,将枯草芽孢杆菌菌落用不同浓度EMS 0.5%、1%、1.7%、2.8%和4%处理,菌株分别命名为M1、M2、M3、M4和M5。突变株首先通过平板法初步筛选α-淀粉酶和脂肪酶产量。α-淀粉酶筛选时,将野生型和突变株划线接种于淀粉琼脂平板;脂肪酶筛选时使用三丁酸甘油酯琼脂。淀粉琼脂平板用革兰碘液覆盖,随后用生理盐水冲洗。划线区域周围出现透明圈表明产α-淀粉酶。脂肪酶产量通过划线区域周围出现透明圈确认(图SF1和SF2)。初步筛选后,将野生型和突变株在同时含淀粉和三丁酸甘油酯的营养肉汤培养基中培养,以共产α-淀粉酶和脂肪酶,确认其同时分泌这两种酶的能力。酶活性通过各自特定的测定方法定量。在测试的突变株中,M4的α-淀粉酶和脂肪酶产量均为最高,分别比野生型提高2.27倍和2.48倍(图1)。M4被命名为Bacillus subtilis 250,用于后续研究。该突变株在常规传代培养中保持增强的酶产量潜力,表明突变表型表达稳定。这些发酵也证实了枯草芽孢杆菌在同一培养基中同时生产两种酶的能力。EMS引起基因组含氮碱基的烷基化,诱导点突变。它是一种强烷化诱变剂,通过将甲基基团供体给靶遗传物质的鸟嘌呤碱基(O6位),导致鸟嘌呤与胸腺嘧啶而非胞嘧啶错配。因此,在后续复制周期中异常的GC→AT转换导致后代随机突变。EMS诱变在微生物中已广泛用于通过发酵增强各种化合物的产量。然而,EMS对每种微生物都有特定的致死剂量,超过该剂量生长显著减弱。用4% EMS溶液处理的突变株生长减少,酶分泌显著降低。这些结果与已报道的关于使用EMS作为诱变剂增强淀粉酶和脂肪酶产量的数据一致。Penicillium oxalicum经EMS处理后淀粉酶产量提高89.1%。Penicillium sp. Y-21经4% EMS溶液诱变后脂肪酶活性增加50.67%。
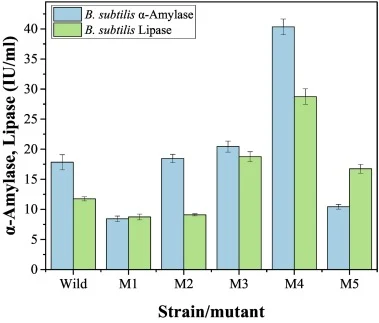
【数据】诱变剂浓度:0.5%、1%、1.7%、2.8%、4% EMS;最佳突变株:M4(Bacillus subtilis 250);α-淀粉酶提升倍数:2.27倍;脂肪酶提升倍数:2.48倍;对照文献:Penicillium oxalicum淀粉酶提升89.1%;Penicillium sp. Y-21脂肪酶提升50.67%
3.2 不同厨余垃圾的酶诱导潜力
评估了五种厨余垃圾(过期饼干、废弃面包屑、剩余薯条、熟米饭和废弃植物油)对Bacillus subtilis 250产α-淀粉酶和脂肪酶的影响。其中,剩余薯条产α-淀粉酶最高,废弃植物油产脂肪酶最高(图2)。淀粉是剩余薯条的主要成分,约占其原始组成的65%。细菌不能直接摄取聚合态淀粉,其细胞能够感知麦芽糖和麦芽糊精等较小糖类,这些糖类可能通过淀粉响应型启动子开启淀粉酶基因表达。细胞在剩余薯条上分泌淀粉酶,将淀粉水解为更易吸收的简单糖类——麦芽糖和麦芽三糖(图SF3)。因此,接触较高浓度淀粉和较低浓度葡萄糖的土豆废弃物触发微生物淀粉酶生产,提供了可持续、成本有效的底物。植物油主要由三酰甘油(TAGs)组成,含少量游离脂肪酸、甾醇和磷脂,而烹饪过程中的氧化和聚合提高了其总极性化合物含量。富含TAGs的培养基促进细菌乳化油水界面,这可能诱导脂肪酶基因表达和胞外脂肪酶生产。长链游离脂肪酸也被报道为脂肪酶的刺激物(图SF3)。厨余垃圾的异质组成——同时含淀粉和脂质成分——提供了支持枯草芽孢杆菌同时生产α-淀粉酶和脂肪酶的条件。发酵过程中两种酶的时间依赖性曲线证明了这种同时生产(图SF4C)。两种酶在整个发酵时间过程中均存在活性,且分泌高峰窗口重叠,直接证明含高淀粉和三酰甘油含量的异质厨余垃圾底物支持淀粉分解酶和脂肪分解酶的同时诱导。因此,食物残渣因其高营养含量、经济性和可持续性,是细菌脂肪酶和其他增值产品的潜在来源。芽孢杆菌属具有利用食物废弃物碳水化合物生产α-淀粉酶和生物降解有机厨余垃圾的能力。一株产生物表面活性剂的枯草芽孢杆菌和黑曲霉在橄榄油废弃物上生长时表现出显著的脂肪酶活性。虽然IU/g添加底物是固态发酵(SSF)中常用的指标,但此处计算IU/g添加底物是为了在给定条件下假设最高底物转化率的情况下,对废弃物基工艺进行技术经济评估。该计算提供了从添加底物生产多少酶的比较分析,以阐明方法的效率。当补充剩余薯条时,Bacillus subtilis 250每克剩余薯条产生2033 ± 35 IU α-淀粉酶。而脂肪酶产量为每克废弃植物油1567 ± 30 IU。这些值提供了每种底物归一化酶产量的比较指标,而非直接的底物到产物转化(表SF1)。
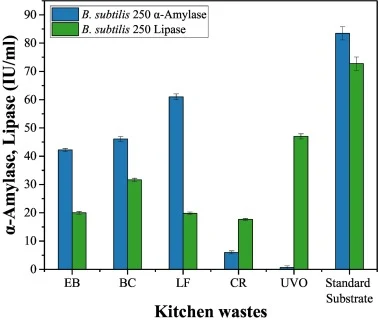
【数据】α-淀粉酶最佳底物:剩余薯条;脂肪酶最佳底物:废弃植物油;剩余薯条淀粉含量:约65%;α-淀粉酶产量:2033 ± 35 IU/g剩余薯条;脂肪酶产量:1567 ± 30 IU/g废弃植物油
3.3 α-淀粉酶和脂肪酶发酵条件的优化
#### 3.3.1 OFAT鉴定有效因素
通过单因素一次法(OFAT)评估了野生型枯草芽孢杆菌和突变株Bacillus subtilis 250产α-淀粉酶和脂肪酶发酵的显著物理和化学因素。α-淀粉酶的最适温度估计为35 °C,而脂肪酶在40 °C时产量最高(图SF4A)。两种酶的最适pH均为7,高于或低于此pH时酶产量显著下降(图SF4B)。α-淀粉酶在孵育3天后显示最大活性,而脂肪酶在孵育4天后显示最大活性(图SF4C)。此后,酶活性略有下降。时间过程生产曲线表明两种酶在同一发酵系统中分泌,确认了它们的共生产。碳氮营养因素对细菌至关重要,因为它们提供代谢、细胞生长和细胞分裂的手段。它们作为许多有用生化反应的介质,调节酶产量,是发酵培养基的关键组分,参与调节最终发酵产物的生长、动力学和特性。为评估B. subtilis 250产α-淀粉酶和脂肪酶的最佳碳氮源,为细菌培养物提供了各种碳源(葡萄糖、麦芽糖、乳糖、蔗糖、半乳糖)和氮源(硫酸铵、尿素、蛋白胨、胰蛋白胨、酵母提取物)。
【数据】α-淀粉酶最适温度:35 °C;脂肪酶最适温度:40 °C;最适pH:7(两种酶);α-淀粉酶最大活性时间:3天;脂肪酶最大活性时间:4天;碳源:葡萄糖、麦芽糖、乳糖、蔗糖、半乳糖;氮源:硫酸铵、尿素、蛋白胨、胰蛋白胨、酵母提取物
#### 3.3.2 RSM优化
采用响应面法(RSM)的面心中心复合设计(CCD)对3个有效因素进行最终优化。设计包含20次运行,其中8个析因点、6个轴向点和6个重复,以确定最佳pH、最佳酵母提取物浓度和最佳诱导物浓度(70%剩余薯条和30%废弃植物油的混合物)。CCD的各响应以二阶多项式方程描述。RSM优化结果显著提高了酶活性(图3)。
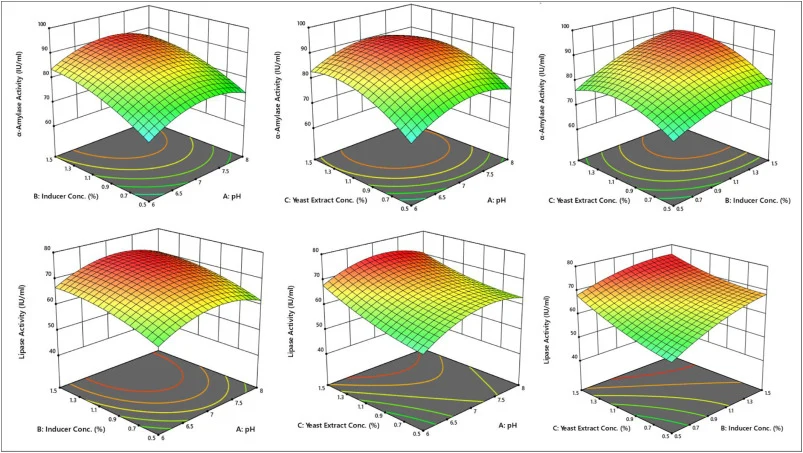
【数据】设计方法:面心CCD;运行次数:20(8析因点+6轴向点+6重复);优化因素:pH、诱导物浓度、酵母提取物浓度;最佳诱导物配比:70%剩余薯条+30%废弃植物油;α-淀粉酶活性提升:1.53倍;脂肪酶活性提升:1.45倍;最终α-淀粉酶产量:89.4 IU/ml;最终脂肪酶产量:74.1 IU/ml
3.4 部分纯化与SDS-PAGE分析
通过硫酸铵沉淀部分纯化α-淀粉酶和脂肪酶,SDS-PAGE分析显示(图4),Lane M为标准Marker蛋白,Lane 1为培养上清液,Lane 2为部分纯化脂肪酶,Lane 3为部分纯化α-淀粉酶。纯化后的酶条带清晰可见。
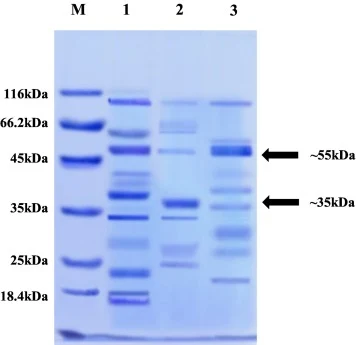
【数据】纯化方法:硫酸铵沉淀;SDS-PAGE凝胶浓度:12%(w/v);Lane M:标准Marker;Lane 1:培养上清液;Lane 2:部分纯化脂肪酶;Lane 3:部分纯化α-淀粉酶
3.5 酶学特性表征
#### 3.5.1 最适温度和pH
α-淀粉酶在pH 7和50 °C表现最高活性,脂肪酶在pH 7和60 °C表现最高活性(图5)。两种酶在碱性和高温条件下均保持相当活性。
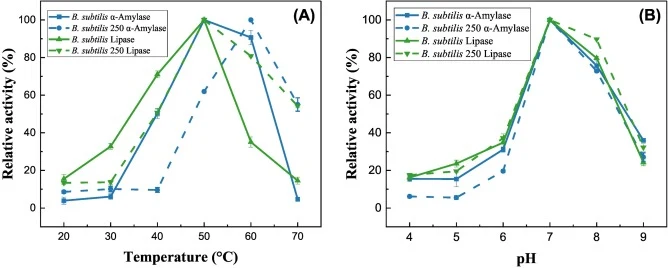
【数据】α-淀粉酶最适pH:7;α-淀粉酶最适温度:50 °C;脂肪酶最适pH:7;脂肪酶最适温度:60 °C;底物:1%可溶性淀粉(α-淀粉酶)、对硝基苯基棕榈酸酯(脂肪酶)
#### 3.5.2 热稳定性和pH稳定性
在50 °C、60 °C和70 °C以及pH 6、7和8条件下评估酶的热稳定性和pH稳定性,持续240分钟(图6)。两种酶在测试条件下均保持显著残余活性。
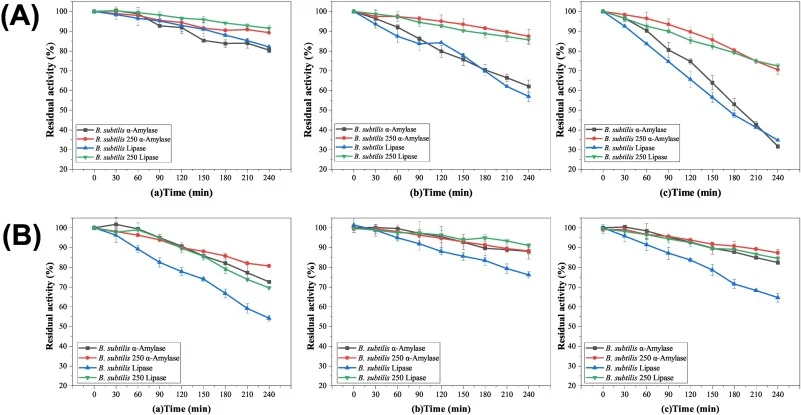
【数据】热稳定性温度:50 °C、60 °C、70 °C;pH稳定性:pH 6、7、8;时间:240 min
3.6 金属离子和添加剂的影响
评估了金属离子和添加剂对野生型枯草芽孢杆菌和突变株Bacillus subtilis 250产α-淀粉酶和脂肪酶相对活性的影响(图7)。对照为未添加任何金属盐或添加剂的酶活性;所有值以对照归一化的相对活性(%)表示。
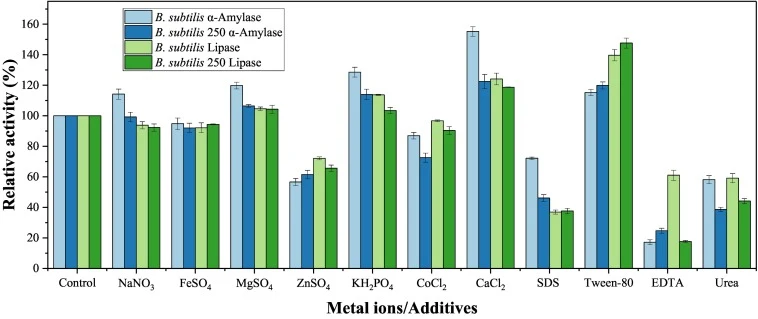
【数据】对照:未添加金属盐或添加剂;表达方式:相对活性(%)归一化至对照
3.7 与商业洗涤剂的兼容性
评估了Bacillus subtilis 250产α-淀粉酶和脂肪酶与商业洗涤剂的兼容性(图8)。两种酶在商业洗涤剂中均保持显著残余活性。
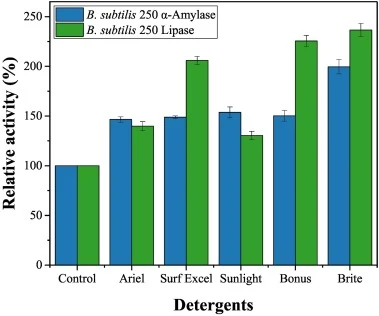
【数据】测试对象:商业洗涤剂;指标:酶残余活性
3.8 去污能力
评估了不同处理组合对四种污渍(巧克力、番茄酱、污垢和肉汁)的去污能力(图9):(1)自来水,(2)自来水+洗涤剂,(3)自来水+α-淀粉酶,(4)自来水+脂肪酶,(5)自来水+α-淀粉酶+脂肪酶,(6)自来水+α-淀粉酶+脂肪酶+洗涤剂。
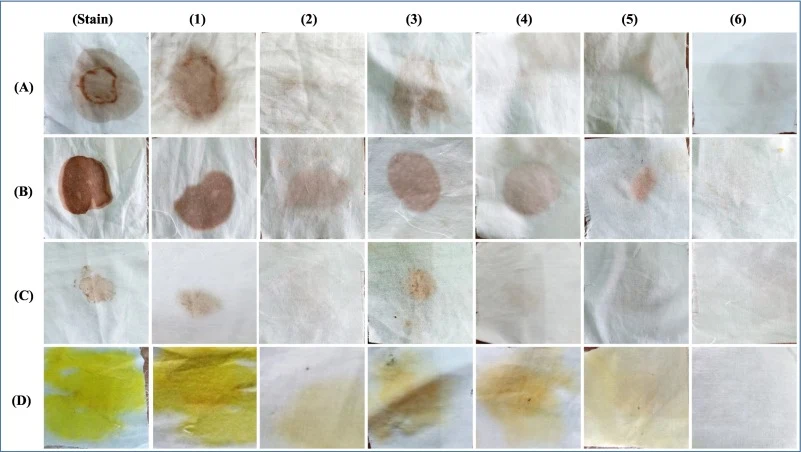
【数据】污渍类型:巧克力、番茄酱、污垢、肉汁;处理组合:自来水、自来水+洗涤剂、自来水+α-淀粉酶、自来水+脂肪酶、自来水+α-淀粉酶+脂肪酶、自来水+α-淀粉酶+脂肪酶+洗涤剂
讨论与解读
本研究描述了EMS诱变的Bacillus subtilis 250同时生产胞外α-淀粉酶和脂肪酶,并通过利用厨余垃圾作为潜在底物实现其资源化。OFAT优化表明,3天和4天发酵分别是α-淀粉酶和脂肪酶共生产的理想时间,麦芽糖和酵母提取物分别是最有效的碳源和氮源。在测试的底物中,70%剩余薯条和30%废弃植物油的混合物作为最佳诱导物,促进了可持续且成本有效的发酵方法。RSM对最有效变量(pH、诱导物浓度和酵母提取物浓度)的优化显著增强了酶活性,强调了该工艺的工业规模潜力。部分富集酶制剂的初步生化表征表明其具有表观热稳定性,α-淀粉酶在pH 7和50 °C、脂肪酶在pH 7和60 °C表现最大活性。所生产的酶表现出强生物洗涤剂潜力,展示了洗涤剂兼容性和环保型污渍去除能力。本研究的关键发现表明,枯草芽孢杆菌的EMS诱变有利地增强了酶活性和稳定性,而厨余垃圾可作为潜在、成本有效的酶底物用于可持续酶生产。
编译者解读:该研究以经典EMS诱变结合OFAT-RSM序贯优化,实现了厨余垃圾到双酶联产的高效转化,思路务实。其亮点在于同一宿主、同一发酵体系共产两种工业酶,且产物与商业洗涤剂兼容,省去了分别发酵的成本。但EMS诱变随机性强,突变位点未在节选中阐明,工业化菌株的遗传稳定性仍需长期验证。此外,厨余垃圾成分波动大,实际放大时底物标准化将是关键瓶颈。
参考来源
期刊:International Journal of Biological Macromolecules, 2026
DOI: 10.1016/j.ijbiomac.2026.153242
DOI: 10.1016/j.ijbiomac.2026.153242