来源:Semi-rational design of a hyperstable β-glucosidase Bgl1269 for enhanced soy Isoflavone bioconversion(Food Chemistry)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
大豆异黄酮糖苷需经β-葡萄糖苷酶水解为活性苷元,但酶的热不稳定性长期制约工业应用。本研究以Bgl1269为起点,整合进化保守性分析、同源建模与FoldX自由能计算,构建了6个突变体。其中T47A表现突出:45 °C半衰期延长4.6倍(1.64 ± 0.03 h),最适温度提高5 °C,T50升至51.36 °C;对daidzin和genistin的催化效率分别提升44.4%和39.1%,同时保留葡萄糖耐受性(Ki = 3.72 mM)。分子动力学模拟揭示,活性位点邻近环区柔性降低是稳定性提升的结构基础。
研究背景
植物源生物活性化合物日益受到关注,大豆异黄酮作为植物雌激素类多酚,具有抗氧化和骨保护等健康功效。其生物活性依赖于糖苷结合物向苷元的高效转化,而内源β-葡萄糖苷酶Bgl1269的热不稳定性限制了这一过程。Bgl1269在45 °C下半衰期不足30 min,构成工业规模生物转化的关键瓶颈。大豆异黄酮中超过97%以糖苷形式(daidzin和genistin)存在,苷元(daidzein、genistein、glycitein)仅占少数。苷元具有二酚色烯骨架,在C7或C5/C7位有羟基取代,生物利用度优于糖苷。因此,需要在保持催化效率的前提下提升Bgl1269的热稳定性。本研究采用半理性策略,通过靶向非催化环区实现糖苷酶热稳定化。
研究方法
2.1 菌株、质粒与试剂
大肠杆菌DH5α和BL21(DE3)分别作为克隆和表达宿主(TOLOBIO,中国)。编码Bgl1269的基因(GenBank: JQ957567.1)经合成后克隆至pET-32a(+)载体(Novagen,美国)的NcoI和XhoI限制性位点之间,获得重组质粒pET-32a(+)-Bgl1269,经测序验证(TSINGKE Biotechnology Co.,中国)。限制性内切酶(NcoI、XhoI、DpnI)和DNA聚合酶(KOD-Plus-Neo)分别购自New England Biolabs(美国)和Vazyme Biotech Co., Ltd.(中国)。Ni-NTA亲和层析树脂由Tiandirenhe Biotechnology Co.(中国)提供。底物包括4-硝基苯基-β-D-吡喃葡萄糖苷(pNPG)、daidzin和genistin(纯度≥98%),购自上海阿拉丁生化科技股份有限公司和上海源叶生物科技有限公司。其他化学品除特别说明外均购自Sigma-Aldrich(美国)。
【数据】菌株:E. coli DH5α、BL21(DE3);载体:pET-32a(+);限制性位点:NcoI、XhoI;底物纯度:≥98%;试剂来源:TOLOBIO、Novagen、NEB、Vazyme、Sigma-Aldrich
2.2 定点突变
Bgl1269突变体(Y18H、D42E、T47A、I146L、T374S及双突变体T47A&T374S)的理性设计采用多步骤生物信息学方法。使用ConsensusFinder(阈值:80%一致性)对1000条GH3家族同源序列进行进化保守性分析,鉴定保守率低于90%的残基。AlphaFold2预测的结构模型(pLDDT = 93.7)用于空间映射,折叠自由能变化(ΔΔG)使用FoldX(5.0版)以修复后的野生型结构为参考进行计算。优先选择ΔΔG < 0 kcal·mol⁻¹的突变。突变引物使用Vazyme在线工具设计(表S1),由TSINGKE Biotechnology Co.(中国)合成。PCR扩增使用KOD-Plus-Neo DNA聚合酶,循环参数如下:94 °C初始变性2 min;35个循环的98 °C 10 s和68 °C 4 min;72 °C终延伸5 min。扩增产物经DpnI消化(37 °C,2 h)后转化至大肠杆菌DH5α感受态细胞。质粒测序确认突变保真度后进行表达。
【数据】同源序列:1000条GH3家族序列;一致性阈值:80%;pLDDT:93.7;ΔΔG阈值:< 0 kcal·mol⁻¹;变性温度/时间:94 °C/2 min;循环数:35;延伸温度/时间:68 °C/4 min;DpnI消化:37 °C/2 h
2.3 蛋白表达与纯化
重组质粒转化至大肠杆菌BL21(DE3)细胞。培养物在含100 μg/mL氨苄青霉素的LB培养基中于37 °C培养至OD600达到0.6–0.8,随后以1.2 mM IPTG在25 °C诱导16 h,转速200 rpm。离心收集细胞(6000 ×g,5 min,4 °C),重悬于裂解缓冲液(20 mM磷酸钠,500 mM NaCl,pH 8.0),冰上超声破碎(5 s脉冲,5 s间隔,总计30 min)。上清液加载至预平衡的Ni-NTA亲和柱(结合缓冲液:20 mM磷酸钠,500 mM NaCl,pH 8.0)。用含60 mM咪唑的结合缓冲液洗涤后,目标蛋白用含250 mM咪唑的结合缓冲液洗脱。脱盐使用预装PD-10柱(Cytiva,美国),以柠檬酸-磷酸缓冲液(pH 7.0)平衡。蛋白纯度经10% SDS-PAGE验证,浓度通过BCA法(Tiandirenhe Biotechnology Co.,中国)定量。
【数据】氨苄青霉素浓度:100 μg/mL;OD600:0.6–0.8;IPTG浓度:1.2 mM;诱导温度/时间:25 °C/16 h;转速:200 rpm;离心:6000 ×g/5 min/4 °C;超声:5 s脉冲/5 s间隔/30 min;洗脱咪唑:250 mM;SDS-PAGE浓度:10%
2.4 酶学表征
#### 2.4.1 最适温度与热稳定性
酶活测定以10 mM pNPG为底物,在50 mM柠檬酸-磷酸缓冲液(pH 6.5)中于45 °C进行。一个单位(U)定义为在上述条件下每分钟释放1 μmol对硝基苯酚的酶量。最适温度在30–55 °C范围内通过测定各温度下的活性确定。热稳定性通过将酶在相同缓冲液中于40 °C或45 °C孵育,定时(0、15、30、45、60 min)测定残余活性来评估。半衰期(T1/2)使用一级动力学计算:T1/2 = ln2/kd,其中kd为从ln(残余活性)对时间作图得到的失活速率常数。半失活温度(T50 15)定义为在40–60 °C梯度下孵育15 min后导致50%活性损失的温度。
【数据】底物浓度:10 mM pNPG;缓冲液:50 mM柠檬酸-磷酸,pH 6.5;温度:45 °C;最适温度范围:30–55 °C;热稳定性温度:40 °C或45 °C;时间点:0、15、30、45、60 min;T50温度梯度:40–60 °C;孵育时间:15 min
#### 2.4.2 pH依赖性与金属离子效应
最适pH在McIlvaine缓冲液(pH 3.0–8.0)和甘氨酸-NaOH缓冲液(pH 8.0–10.0)中于45 °C以10 mM pNPG为底物评估。金属离子影响通过向标准反应体系中添加1 mM或10 mM终浓度的Mn²⁺、Mg²⁺、Ca²⁺、Cu²⁺、Fe³⁺、Fe²⁺、Zn²⁺或EDTA进行测试。葡萄糖耐受性通过使用两个pNPG浓度(10 mM和15 mM)的Dixon图,在0–10 mM葡萄糖存在下测定活性来评估。抑制常数(Ki)由1/v对[葡萄糖]作图的交点确定。
【数据】pH范围:3.0–10.0;金属离子浓度:1 mM或10 mM;金属离子种类:Mn²⁺、Mg²⁺、Ca²⁺、Cu²⁺、Fe³⁺、Fe²⁺、Zn²⁺、EDTA;葡萄糖浓度范围:0–10 mM;pNPG浓度:10 mM和15 mM
#### 2.4.3 动力学参数测定
daidzin和genistin水解的Michaelis-Menten动力学使用HPLC(Agilent 1260 Infinity II)配合Diamonsil C18柱(5 μm,250 × 4.6 mm)分析。反应体系含0–2 μM底物,在柠檬酸-磷酸缓冲液(pH 6.5)中于45 °C进行,通过添加酶启动反应。10 min后,煮沸5 min终止反应。产物使用0.2%(v/v)甲酸(A)和乙腈(B)梯度分离:0–10 min(5 → 80% B),10–12 min(80% B),12–16 min(80 → 5% B),流速1.0 mL/min。检测波长254 nm。校准曲线使用daidzein和genistein标准品(0–100 μM)构建。Km和Vmax通过GraphPad Prism 9.0对Michaelis-Menten方程进行非线性回归拟合获得。
【数据】底物浓度范围:0–2 μM;反应温度:45 °C;反应时间:10 min;终止条件:煮沸5 min;流速:1.0 mL/min;检测波长:254 nm;标准品浓度范围:0–100 μM
#### 2.4.4 统计分析
所有实验数据,包括酶活性、动力学参数和稳定性半衰期,均以至少三次独立重复(n ≥ 3)的平均值 ± 标准差(SD)表示。野生型酶与突变体之间差异的统计显著性使用单因素方差分析(ANOVA) followed by Dunnett's事后检验进行多重比较。p值小于0.05认为具有统计学显著性。所有统计分析使用GraphPad Prism软件(9.0版)进行。
【数据】重复次数:n ≥ 3;显著性阈值:p < 0.05;统计方法:单因素ANOVA + Dunnett's检验;软件:GraphPad Prism 9.0
2.5 分子动力学(MD)模拟
β-D-吡喃葡萄糖与Bgl1269活性位点的分子对接使用ProteinsPlus JAMDA模块以默认参数进行。MD模拟中,野生型和突变体结构在CHARMM-GUI中进行能量最小化,并溶于TIP3P水盒子中,设置周期性边界条件。模拟使用NAMD 3.0和CHARMM36力场。经过1000步最小化后,系统在NVT(100 ps)和NPT(100 ps)系综中于310 K平衡,使用Langevin恒温器(碰撞频率1.0 ps⁻¹)和Monte Carlo气压计(1 atm)。生产运行在45 °C下进行30 ns,时间步长2 fs。
【数据】力场:CHARMM36;水模型:TIP3P;最小化步数:1000步;NVT平衡:100 ps;NPT平衡:100 ps;平衡温度:310 K;碰撞频率:1.0 ps⁻¹;压力:1 atm;生产运行温度:45 °C;运行时间:30 ns;时间步长:2 fs
研究结果
3.1 突变位点的半理性设计
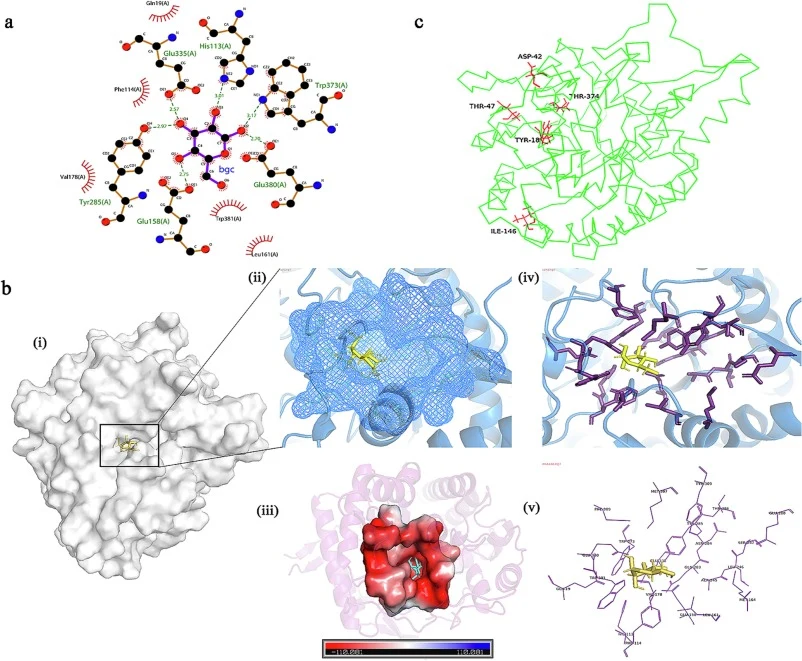
突变位点的半理性设计遵循以下顺序工作流程:(1)通过一致性分析鉴定进化上次优的残基,(2)将这些残基映射到高置信度结构模型上,评估其相对于活性位点的空间位置,(3)使用自由能计算优先选择预测具有稳定效应的突变。初始筛选使用ConsensusFinder将Bgl1269(GenBank: JQ957567.1)与GH3家族的1000条同源序列比对,应用80%一致性阈值。该分析鉴定了9个保守率次优(<90%)的残基(表S1),表明存在适合诱变的潜在结构脆弱位点。高置信度AlphaFold2建模(pLDDT = 93.7,pTM = 0.924)实现了空间映射,预测出TIM桶折叠,催化残基为Gln19(氢键)、His113(质子供给)、Phe114(底物堆叠)、Glu158(静电稳定)、Tyr285(羟基配位)、Glu335(酸催化)、Trp373(π-π堆叠)和Glu380(质子转移协同)(图1a, b)。详细的模型置信度指标和残基特异性比对误差预测见补充材料(图S1-S2),确认了预测结构用于进一步分析的稳健性。分子对接确认这些残基围绕β-D-吡喃葡萄糖形成了一个紧密的251.39 ų结合口袋(JAMDA评分:−2.3017),其中Glu335-Trp373-Glu380构成特征性GH3催化三联体。所有候选突变位点距催化残基均> 8 Å,最大限度降低了功能破坏风险(图1a, b)。基于FoldX的自由能筛选优先选择了5个具有有利ΔΔG < 0 kcal·mol⁻¹的突变体(Y18H、D42E、T47A、I146L、T374S)。T47A(ΔΔG = −1.523 kcal·mol⁻¹)和T374S(ΔΔG = −1.138 kcal·mol⁻¹)显示出显著稳定化(ΔΔG < −1.0 kcal·mol⁻¹)(表S2)。T47A缓解了β-折叠B2中的空间冲突,而T374S通过骨架熵调制增强了环区柔性。两个位点均位于远离活性位点的溶剂暴露区域,T47A靠近参与结构域运动的铰链区(图1c)。这种能量驱动的筛选为所有5个单点突变体和组合突变体T47A&T374S的实验验证提供了理论基础。该整合方法展示了一致性分析与基于能量的筛选如何能够识别非显而易见的稳定性热点,对于缺乏晶体结构的酶尤其有价值。
【数据】同源序列数:1000条;一致性阈值:80%;次优保守残基:9个(保守率<90%);pLDDT:93.7;pTM:0.924;结合口袋体积:251.39 ų;JAMDA评分:−2.3017;催化三联体:Glu335-Trp373-Glu380;突变位点距催化残基距离:>8 Å;T47A ΔΔG:−1.523 kcal·mol⁻¹;T374S ΔΔG:−1.138 kcal·mol⁻¹;D42E ΔΔG:−0.192 kcal·mol⁻¹
3.2 突变体的构建与表达
为实验验证计算预测,通过定点突变构建了5个突变体(Y18H、D42E、T47A、I146L、T374S及双突变体T47A&T374S)(表S3)。所有突变质粒首先通过菌落PCR验证(图S3),随后通过限制性消化分析(图S4a)和全长DNA测序确认,结果显示与设计序列100%匹配,从而排除了潜在的PCR引入错误。在大肠杆菌BL21(DE3)中表达并通过Ni亲和层析纯化,所有变体均获得可溶性蛋白。SDS-PAGE分析确认野生型和突变体酶的预期分子量约为62.2 kDa,观察到可忽略的降解条带,表明表达完整且纯化成功(图S4b)。纯化可溶性蛋白的定量分析揭示了变体间表达产量的显著差异(图S4c)。T47A突变体表现出最高表达水平(22.3 ± 0.7 mg/L培养物),比野生型酶(19.8 ± 0.5 mg/L;p < 0.05)显著增加约13%。这种产量提升表明蛋白折叠效率或细菌宿主溶解性改善,可能归因于Thr47 → Ala取代减少了空间位阻或优化了局部构象柔性。相比之下,Y18H和D42E突变体显示产量显著降低,分别为15.1 ± 0.9 mg/L(p < 0.05)和17.2 ± 0.6 mg/L。Y18H产量降低可能源于组氨酸引入破坏了局部静电相互作用或氢键网络。对于D42E,尽管是天冬氨酸到谷氨酸的保守突变,局部静电环境或残基相互作用的细微改变可能轻微损害了折叠效率。T374S突变体也显示可溶性表达显著降低,与其FoldX预测的中等ΔΔG(−1.138 kcal·mol⁻¹)和外周环区潜在的局部折叠扰动一致,分子动力学数据也证实了这一点(图S4c;表S2)。双突变体T47A&T374S成功表达并纯化,产量(19.1 ± 0.8 mg/L)与野生型相当,表明组合这些突变对表达没有协同负面效应。观察到重组蛋白产量与FoldX预测的折叠自由能变化(ΔΔG)之间存在总体相关性。具有更负ΔΔG值的突变体(如T47A,ΔΔG = −1.523 kcal·mol⁻¹)倾向于表现出更高的表达产量,而那些ΔΔG值较不利或为正的突变体则显示产量降低。这种相关性符合既定原则:稳定化突变通常促进更高效的蛋白折叠并减少聚集,从而增强异源表达系统中的可溶性蛋白产量。D42E变体的异常情况——尽管预测ΔΔG中等有利(−0.192 kcal·mol⁻¹)但产量降低——凸显了计算工具在捕捉体内表达所有控制因素(包括翻译效率、分子伴侣相互作用或蛋白酶敏感性)方面的固有局限性,从而强调了实验验证的必要性。所有突变体的成功构建和表达,加上预测稳定性(ΔΔG)与实验可溶性产量之间观察到的相关性,验证了我们的计算设计策略。T47A突变体表现出优越的表达产量和稳定性参数,成为后续详细功能表征的最有前景的候选者。
【数据】分子量:约62.2 kDa;T47A产量:22.3 ± 0.7 mg/L;野生型产量:19.8 ± 0.5 mg/L;T47A产量增加:约13%(p < 0.05);Y18H产量:15.1 ± 0.9 mg/L(p < 0.05);D42E产量:17.2 ± 0.6 mg/L;T374S ΔΔG:−1.138 kcal·mol⁻¹;双突变体产量:19.1 ± 0.8 mg/L;D42E ΔΔG:−0.192 kcal·mol⁻¹
3.3 突变体的热稳定性增强
#### 3.3.1 最适温度与动力学参数
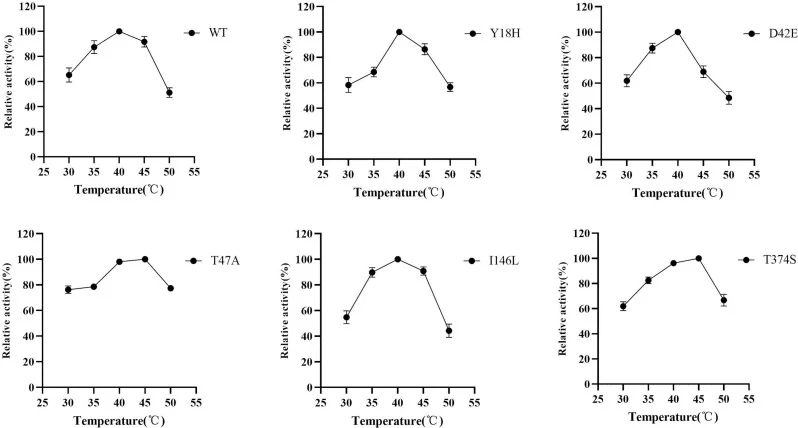
T47A突变体成为最有前景的变体,表现出优越的热稳定性和催化效率。我们首先评估了其最适温度和热稳定性,随后对天然底物进行了动力学分析。结果表明,策略性单点突变显著改善了热稳定性和催化效率,其中T47A突变体成为最有前景的变体。温度-活性曲线显示,突变体T47A和T374S的最适温度比野生型酶(40 °C)提高了5 °C至45 °C,同时在工业关键的40–50 °C范围内保持>95%的相对活性(图2)。这种热适应性对于处理粘性大豆异黄酮水解物尤其有价值,因为升高的温度可增强底物溶解度和传质效率。值得注意的是,T47A对pNPG的比活性显著增加了2倍(178.52 ± 2.62 U/mg),相比野生型(89.23 ± 1.14 U/mg;p < 0.05),挑战了糖苷酶工程中常观察到的稳定性-活性权衡。使用天然异黄酮糖苷的动力学表征提供了……
【数据】T47A和T374S最适温度:45 °C;野生型最适温度:40 °C;最适温度提升:5 °C;40–50 °C相对活性:>95%;T47A比活性:178.52 ± 2.62 U/mg;野生型比活性:89.23 ± 1.14 U/mg;比活性提升:2倍(p < 0.05)
讨论与解读
本研究通过整合进化保守性分析、同源建模和FoldX自由能计算的半理性设计策略,成功工程化改造了β-葡萄糖苷酶Bgl1269的高稳定性变体。T47A突变体表现最为突出:45 °C下半衰期延长4.6倍,半失活温度(T50)提高3.18 °C。稳定性提升并未牺牲催化功能——T47A对daidzin和genistin的水解催化效率分别提高44.4%和39.1%。突变体保留了野生型的强葡萄糖耐受性(Ki ≈ 3.72 mM),这对工业应用至关重要。分子动力学模拟揭示了改进的机制基础:T47A取代降低了活性位点邻近环区的柔性,增强结构刚性,减少高温下的去折叠倾向,同时不阻碍底物进入或催化残基运动。这凸显了靶向柔性非催化区域进行酶稳定化的有效性。T47A变体代表了工业规模生产生物活性大豆异黄酮苷元的稳健生物催化剂。
编译者解读: 该研究的亮点在于打破了糖苷酶工程中常见的"稳定性-活性权衡"。T47A单点突变同时实现半衰期延长4.6倍和催化效率提升44.4%,且葡萄糖耐受性未受损,这在工业应用中极为难得。方法层面,ConsensusFinder+AlphaFold2+FoldX的组合流程无需晶体结构即可锁定非催化环区的稳定化热点,对缺乏结构信息的GH家族酶具有推广价值。局限在于:仅验证了6个突变体,双突变体未显示协同效应;MD模拟仅30 ns,长时程构象变化可能未被充分采样;工业相关的高底物浓度和复杂基质条件下的表现尚待评估。
DOI: 10.1016/j.foodchem.2026.150041