来源:Rational design of high-productivity perfusion processes for CHO Cells: From growth inhibitory strategies to model-driven optimization(Journal of Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
灌流培养能实现连续生产和极高细胞密度,但持续快速增殖的细胞难以进入高比产率状态,且细胞放血造成产物损失。本研究系统比较了低细胞比灌流率(CSPR)、丁酸钠和温和低温三种生长抑制策略对CHO细胞生长、代谢、产率和质量的影响,结合基因组尺度代谢通量采样揭示了低CSPR与丁酸钠趋同上调能量代谢的机制,并据此建立含参数不确定性的生长动力学模型,指导设计出两种高产能灌流工艺——持续模式和高强度模式,后者使比产率和日体积滴度分别提升最高108.94%和190.36%。
研究背景
过去十年,生物药全球需求持续攀升,对更高效生物工艺的需求日益迫切。补料分批培养仍是CHO细胞生产的工业标准,但连续制造正成为生物制药的关键趋势。灌流培养作为连续制造的核心环节,将上游细胞培养与连续下游操作直接衔接,可稳定长期运行、支持极高细胞密度、减少设施占地,并对多种药物模态具有灵活性。
然而灌流工艺面临一个特殊难题。补料分批中,培养环境变化自然引导细胞进入静止期——生长减慢但比产率(q p )升高。灌流中,持续培养基更新维持细胞快速增殖。为维持目标细胞密度需进行细胞放血,但这导致产物损失,并使细胞无法进入高产能状态。因此,灌流开发的核心挑战是:在实现高细胞密度的同时,最小化产物损失并提高q p 。为此,生长抑制策略被引入灌流工艺。这些策略在补料分批中广泛用于提高产率,但在灌流中的实际实施与比较效果尚缺乏充分探索。同时,工艺开发常依赖昂贵的试错方法。
研究方法
2.1 细胞系、培养基与细胞培养
本研究使用的细胞系为产CD20单克隆抗体的CHO-DG44衍生株(Ran et al., 2025)。细胞在自研灌流培养基中培养,该培养基由基础培养基和浓缩培养基组成。半灌流实验在50 mL摇管(TPP Techno Plastic Products AG,瑞士)中进行,工作体积20 mL。培养期间,摇管置于Kuhner Shaker培养箱中,振幅50 mm(Adolf Kuhner,瑞士),300 rpm,80%湿度,5% CO₂。默认温度37°C,按需调整。半灌流从第2天开始,每日进行培养基交换。
灌流培养在3 L搅拌罐反应器(STR)(Applikon,荷兰)中进行,工作体积1.4 L。以0.9 ± 0.1 × 10⁶ cells·mL⁻¹ 的细胞密度接种。使用配备F2-RF02PES滤器(Repligen,美国)的ATF2系统(Repligen,美国)进行细胞截留。温度根据各实验要求设定。搅拌初始为250 rpm,随细胞密度上升逐步提高至最高550 rpm。通过通入CO₂维持pH 7.0 ± 0.2,通过L型1 mm喷嘴通入O₂维持溶氧40%。每日表观生长率(μ app )由活细胞计数计算,随后按公式1调整放血率(B),使其与表观比生长率匹配,以将培养维持在所需设定点。根据目标CSPR或灌流率(D)及调整后的B,设定新鲜培养基进料速率和收获流速,确保反应器体积守恒。放血率计算如下:
(1) B = μ app
其中μ app (day⁻¹)为由活细胞计数确定的表观比生长率,B为放血率(day⁻¹)。
【数据】细胞系:产CD20单抗的CHO-DG44衍生株;摇管工作体积:20 mL;摇床参数:300 rpm、50 mm振幅、80%湿度、5% CO₂;默认温度:37°C;半灌流起始:第2天;STR工作体积:1.4 L;接种密度:0.9 ± 0.1 × 10⁶ cells·mL⁻¹;搅拌:250→550 rpm;pH:7.0 ± 0.2;溶氧:40%
2.2 离线分析
活细胞密度(VCD)和活率通过自动化CountStar细胞计数仪(CountStar,中国)以台盼蓝排斥法测定。葡萄糖、乳酸和氨浓度及LDH活性使用商品化试剂盒(南京建成,中国)测定。产物滴度通过Poros A柱(Thermo Scientific,美国)上的蛋白A亲和色谱测定。氨基酸水平通过反相HPLC分析,使用ZORBAX Eclipse Plus C18柱(4.6 × 150 mm,3.5 μm;Agilent,美国),在Agilent 1260 HPLC系统上运行。
【数据】VCD/活率检测:CountStar细胞计数仪、台盼蓝排斥法;代谢物检测:南京建成试剂盒;滴度检测:Poros A柱蛋白A亲和色谱;氨基酸检测:ZORBAX Eclipse Plus C18柱(4.6 × 150 mm,3.5 μm)、Agilent 1260 HPLC
2.3 细胞比速率计算
消耗/生产比速率可通过以下公式计算:
(2) q Ci = 1/X v ∙ dC i,R /dt + B ∙ C i,R + (D − B) ∙ C i,H − D ∙ C i,f
其中X v 为活细胞密度(VCD),D为灌流率(day⁻¹),B为放血率(day⁻¹),C i,R (mM)代表反应器中的代谢物水平,q Ci (mmol·(10⁹ cells·day)⁻¹)为代谢物的细胞比速率,C i,f (mM)为补料培养基中的代谢物水平,C i,H (mM)为收获流中的代谢物水平。我们在估算真实比生长率时考虑了细胞裂解。μ app 经比死亡速率(k d )校正后得到总生长率(μ):
(3) μ = μ app + k d
其中k d 为比死亡速率,基于LDH活性测定(Zhang et al., 2025)。μ、μ app 和k d 以相同时间单位(day⁻¹)报告。
【数据】公式参数:X v 为VCD;D为灌流率(day⁻¹);B为放血率(day⁻¹);C i,R 为反应器代谢物水平(mM);q Ci 单位为mmol·(10⁹ cells·day)⁻¹;k d 基于LDH活性测定;时间单位:day⁻¹
2.4 基于约束的通量分析
本研究利用先前建立的CHO-DG44基因组尺度代谢模型(GEM)(iCHOv1_DG44)(Calmels et al., 2019)分析胞内通量变化。细胞比速率(葡萄糖、乳酸、氨、氨基酸、mAb、O₂)用于约束模型边界。为适应实验变异并缓解由此产生的解空间不可行性,测得的营养物摄取和分泌速率扩展±20%,作为具有上下限的约束边界实施。代谢通量解空间采用广泛使用的人工中心命中运行(ACHR)蒙特卡洛采样(Hong et al., 2020; Schellenberger and Palsson, 2009; Yusufi et al., 2017)进行均匀采样,纳入实验测得的摄取和分泌通量约束。共进行10,000次迭代,以10,000个随机分布点采样解空间。采样通量分布的均值作为报告通量用于代谢变化讨论。该采样均值代表在施加的实验约束下可行通量空间的中心趋势,而非任何单一优化目标的唯一预测。详细步骤见补充材料。
【数据】模型:iCHOv1_DG44 GEM;约束扩展:±20%;采样方法:ACHR蒙特卡洛;迭代次数:10,000次;采样点数:10,000个
2.5 产品质量属性分析
使用rProtein A磁珠(天梯人和,中国)从上游样品中纯化抗体。电荷变异体分布通过强阳离子交换色谱分析,使用MabPac SCX-10柱(Thermo Scientific,美国),在Agilent 1260 HPLC系统(Agilent,美国)上运行。尺寸排阻色谱在TSKgel G3000SWXL柱(TOSOH,日本)上使用同一Agilent HPLC系统进行,以测定聚集水平。抗体片段化在Agilent 7100 CE系统(Agilent,美国)上单独分析,使用SDS-MW分析试剂盒(Beckman Coulter,美国)进行样品制备。糖基化谱分析中,N-聚糖用PNGase(NEB,美国)释放,用2-AB标记试剂盒(Agilent,美国)标记,在Glycan BEH Amide柱(Waters,美国)上使用Waters H-Class Bio UPLC系统(Waters,美国)分离。
【数据】纯化:rProtein A磁珠;电荷变异体:MabPac SCX-10柱、Agilent 1260 HPLC;聚集体:TSKgel G3000SWXL柱;片段化:Agilent 7100 CE、SDS-MW试剂盒;糖基化:PNGase释放、2-AB标记、Glycan BEH Amide柱、Waters H-Class Bio UPLC
2.6 统计学
所有数据使用GraphPad Prism v10(美国)处理,统计分析采用双尾Student's t检验。p < 0.05、p < 0.01、p < 0.001和****p < 0.0001视为不同程度统计学显著性指标。误差棒代表均值 ± SD。
【数据】软件:GraphPad Prism v10;统计方法:双尾Student's t检验;显著性阈值:p < 0.05、p < 0.01、p < 0.001、****p < 0.0001;误差棒:均值 ± SD
研究结果
3.1 梯度实验——不同生长抑制策略对细胞生长和产物表达的影响
为评估针对特定CHO细胞系的生长抑制策略,采用逐步实验方法。初步筛选在半灌流模式的摇管中进行,评估不同丁酸钠浓度(0、0.5、1和2 mM)和温度(37、34和31°C)。在此形式下尝试测量细胞比灌流率(CSPR)时发现,低CSPR条件下需要浓缩补料培养基以维持相似的营养供应。这种必要性产生了明显的渗透压波动,在摇管中引入高渗胁迫,损害了CSPR评估的可靠性(数据未显示)。尽管STR和摇管系统在流体剪切和氧合等因素上存在固有差异,但先前研究表明它们在低密度、低剪切培养中具有可比性(Moritz K. F. Wolf et al., 2019a,b; Zhang et al., 2025)。因此,为避免每日培养基交换相关的渗透压尖峰,CSPR比较(50、25、21和17 pL·cell⁻¹·day⁻¹)在STR中进行,其中调整浓缩补料比例以维持总氨基酸高于约40 mM、葡萄糖高于约30 mM。相应实验条件汇总于表1。
如图1a–c所示,一旦培养达到目标稳态VCD(约20 × 10⁶ cells·mL⁻¹),每日根据细胞计数调整放血率以维持恒定VCD,同时施加所选生长抑制策略进行系统评估。图1d–f呈现各实验系列中测得的比生长率(μ),图1g–i显示相应的比产率(q p )。q p 的完整时间进程见Figure S1。
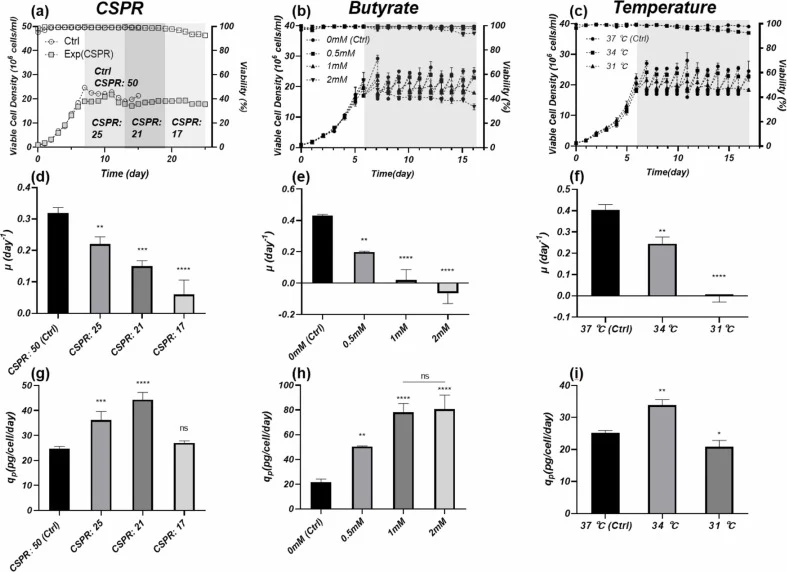
将CSPR从25降至17 pL·cell⁻¹·day⁻¹逐步降低μ,在最低速率时达到约0.06 day⁻¹。q p 呈钟形响应,在21 pL·cell⁻¹·day⁻¹时相对对照最大增加80.33%,随后随CSPR进一步降至17 pL·cell⁻¹·day⁻¹而下降。丁酸钠在0.5–2 mM范围内以剂量依赖性方式抑制μ。在2 mM时,细胞生长完全停滞,并观察到细胞死亡迹象。q p 在1 mM时达到最大,相对对照增加263.32%,而2 mM未进一步提升q p 。温和低温下,将温度降至34°C显著降低μ,但相对37°C对照使q p 增加34.15%。进一步降至31°C几乎停止细胞增殖,并导致q p 下降而非增加。总之,三种策略均可在特定操作窗口内实现所需的"生长抑制伴随产率增强",但其有效范围和效率差异显著。
【数据】丁酸钠浓度:0、0.5、1、2 mM;温度:37、34、31°C;CSPR:50、25、21、17 pL·cell⁻¹·day⁻¹;目标稳态VCD:约20 × 10⁶ cells·mL⁻¹;最低CSPR下μ:约0.06 day⁻¹;q p 最大增幅:21 pL·cell⁻¹·day⁻¹时+80.33%;1 mM丁酸钠q p 增幅:+263.32%;34°C时q p 增幅:+34.15%;2 mM丁酸钠:生长完全停滞伴细胞死亡;31°C:增殖几乎停止、q p 下降
3.2 搅拌罐反应器中温和生长抑制策略的比较
灌流过程中,维持工艺稳定性通常不允许完全生长抑制。因此,为在STR中进一步比较不同策略,我们选择了不完全抑制生长的条件。选取生长抑制强度相似的条件:CSPR 25 pL·cell⁻¹·day⁻¹(CSPR)、0.5 mM丁酸钠(Buty)和34°C(Temp)。相应实验条件汇总于表2。
如图2所示,所有实验组在8天稳态期间维持稳定细胞密度(图2a)。关于细胞生长(图2b),抑制后Temp和Buty组的μ在1天内迅速降至约0.2 day⁻¹并保持稳定。相比之下,CSPR组的μ逐渐下降,约5天后达到相似水平。三组的μ最终均稳定在约0.2 day⁻¹,相对对照下降约35%。就q p 而言(图2c),Temp和Buty组显示初始快速增加。Temp组在2天后稳定在约30 pg·cell⁻¹·day⁻¹,而Buty组持续上升,第3天达到40 pg·cell⁻¹·day⁻¹,最终稳定在约42 pg·cell⁻¹·day⁻¹。CSPR组q p 上升较慢,前3天从21增至26 pg·cell⁻¹·day⁻¹,随后加速增加至第6天40 pg·cell⁻¹·day⁻¹,之后趋于平稳。总体而言,三种策略均相对对照提高了比产率。Buty和CSPR组q p 显著改善,相对Ctrl增加约100%。相比之下,Temp组增强较温和,约30%。累积产物滴度见图2d。8天内,Buty组达到最高滴度,约6.5 g/L。尽管CSPR组最终达到更高q p ,但其初始增加较慢且细胞密度略低,导致累积滴度与Temp组相似。可以预期,随培养时间延长,CSPR组将在总产物输出上逐渐超过Temp组。
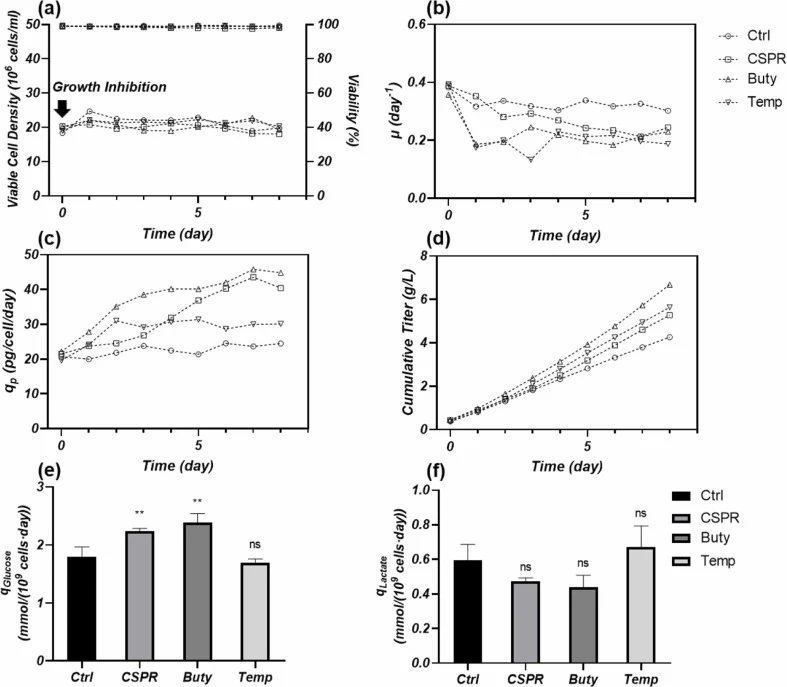
除生长和产物形成的显著变化外,细胞代谢也发生实质性改变。图2e和2f分别显示比葡萄糖消耗率(q Glucose )和比乳酸生产速率(q Lactate )。q Glucose 在CSPR和Buty组显著增加,但在Temp组略有下降。相反,q Lactate 在CSPR和丁酸钠条件下降低,但在温和低温下略有增加,尽管由于标准差较大这些变化未达统计学显著性。核心葡萄糖-乳酸通量的这些相反变化表明,不同生长抑制策略下细胞代谢网络发生系统性重构,这可能促成了观察到的q p 和整体产率差异。
【数据】稳态期:8天;三组μ稳定值:约0.2 day⁻¹;μ相对对照降幅:约35%;Temp组q p 稳定值:约30 pg·cell⁻¹·day⁻¹(2天后);Buty组q p 稳定值:约42 pg·cell⁻¹·day⁻¹(第3天40 pg·cell⁻¹·day⁻¹);CSPR组q p :21→26 pg·cell⁻¹·day⁻¹(前3天)→40 pg·cell⁻¹·day⁻¹(第6天);Buty/CSPR组q p 相对Ctrl增幅:约100%;Temp组q p 增幅:约30%;Buty组8天累积滴度:约6.5 g/L
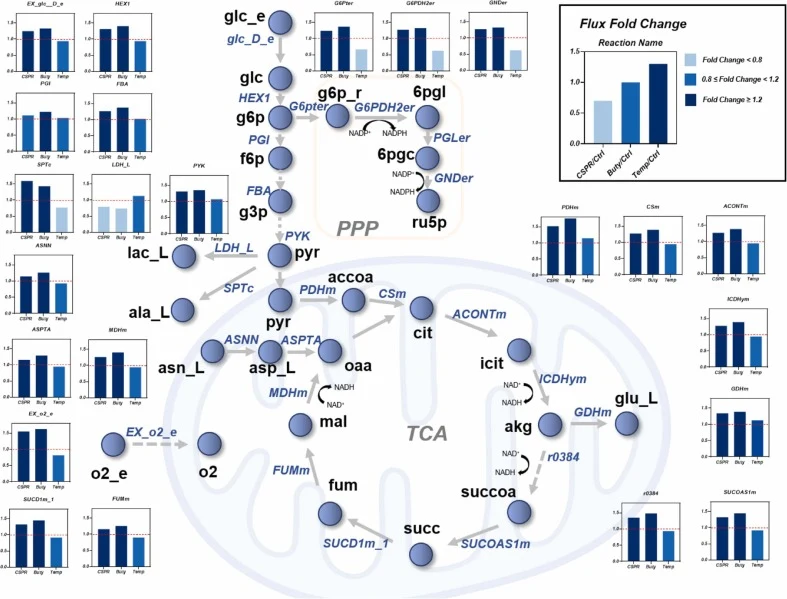
为剖析不同生长抑制策略下的细胞代谢响应,我们进行了基于GEM的代谢通量采样分析,并比较相对对照的通量变化(图3)。总体而言,CSPR和Buty组引发相似的代谢编程:两者均显著增加糖酵解和TCA循环通量,与实验观察到的比q Glucose 上升和q Lactate 下降一致。磷酸戊糖途径(PPP)通量也大幅升高,与NADPH生成增加一致(图4c)。相反,Temp组产生相反趋势,糖酵解、TCA循环和PPP相关通量适度下降。值得注意的是,谷氨酸脱氢酶(GDHm)通量在所有干预下均增加,CSPR和Buty组增幅更大。
就能量代谢而言,NADH生成(图4a)在CSPR和Buty组相对对照增加,这可能主要归因于TCA相关NADH生成反应(如ICDHym、r0384和MDHm)通量升高,以及来自糖酵解的PDHm通量贡献性上升。Temp条件下NADH生成略有下降。与这些NADH变化相呼应,总ATP合成通量在CSPR和Buty组显著升高,但在Temp下降低(图4b)。这种ATP变化可能主要由氧化磷酸化通量(ATPS4m_cho)改变驱动;尽管丙酮酸激酶(PYK)通量略有增加,但其对总ATP的贡献较小。一致地,细胞氧摄取率(q O2 )在CSPR和Buty组上升,在Temp组下降。对稳态最后三天采样的通量分布进行主成分分析(PCA)(图4d)。前两个主成分(PCs)共同解释总方差的94.85%(PC1:74.14%,PC2:20.71%)。
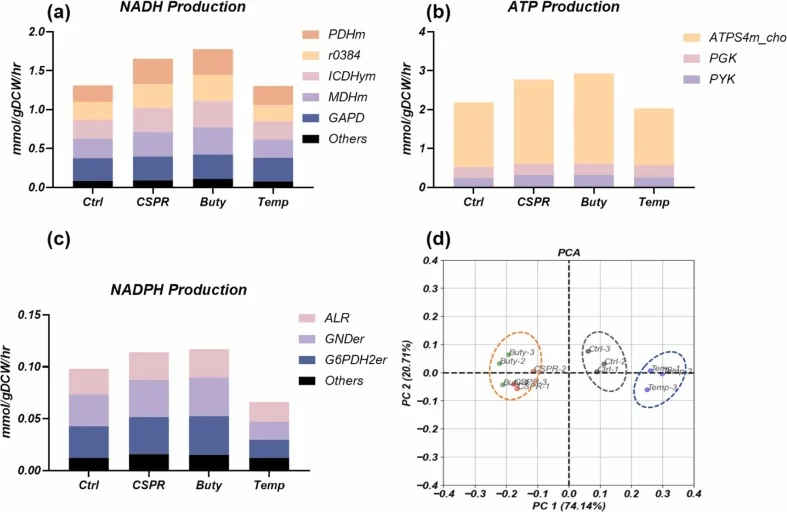
【数据】CSPR/Buty组:糖酵解和TCA通量显著增加;PPP通量升高;Temp组:糖酵解、TCA、PPP通量适度下降;GDHm通量:所有干预下均增加(CSPR/Buty增幅更大);NADH生成:CSPR/Buty增加、Temp略降;ATP合成:CSPR/Buty显著升高、Temp降低;q O2 :CSPR/Buty上升、Temp下降;PCA方差解释率:PC1 74.14%、PC2 20.71%、合计94.85%
(注:原文结果部分在此处截断,后续内容如产品质量属性比较、模型预测与验证等未在节选中提供,故无法翻译。)
讨论与解读
为提高CHO细胞灌流工艺产率,生长抑制策略常被用于将细胞从增殖型转向高生产表型。该方法利用CHO细胞的代谢可塑性——在受控胁迫或抑制下,细胞可从生长导向代谢重定向至生产聚焦状态(Nöbel et al., 2024)。低CSPR和温和低温已有报道用于此目的(Gagnon et al., 2018; Liang et al., 2023),而丁酸钠在灌流中的应用据我们所知尚未被系统探索。尽管所有生长抑制策略均抑制细胞生长,但其底层机制不同。例如,温和低温主要减缓代谢率和细胞周期进程(Baik et al., 2006),而丁酸钠可诱导组蛋白超乙酰化并改变基因表达(Jiang and Sharfstein, 2008)。因此,不同干预可能引发不同生理结果,选择合适策略对成功工艺强化至关重要。本研究系统比较了三种生长抑制策略——低CSPR、丁酸钠和温和低温——在细胞生长、代谢、产率和关键质量属性方面的表现。在适度抑制下,q p 通常随μ下降而上升。然而,过度抑制降低q p ,表明不同策略间操作窗口存在差异。
编译者解读:该研究的方法学价值在于将代谢通量采样与生长动力学建模串联,把"选策略"从经验试错升级为可计算的设计流程。低CSPR与丁酸钠趋同上调能量代谢这一发现,为组合策略提供了机制依据。但需注意,模型预测精度依赖参数不确定性范围设定,且研究仅在单一CHO细胞系中验证;产物质量在强化条件下的长期漂移、以及放大到工业规模时ATF系统与通量约束的匹配性,仍是走向实际生产前需回答的问题。
参考来源
期刊:Journal of Biotechnology, 2026
DOI: 10.1016/j.jbiotec.2026.08.008
DOI: 10.1016/j.jbiotec.2026.08.008