来源:Promiscuous fungal peroxygenase from Chaetomium globosum by directed evolution(iScience)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
真菌非特异性过加氧酶(UPO)能在温和条件下选择性活化C–H键,但多数天然UPO异源表达量低、稳定性差,难以实际应用。本研究以球毛壳菌来源的短型UPO(CglUPO)为起点,通过多轮定向进化获得高活性、高稳定性的分泌变体AckBar。该变体在毕赤酵母中产量达约90 mg/L,T₅₀约60°C,可催化乙苯、苯乙烯、四氢萘、异佛尔酮、蒎烯和柠檬烯等多种底物的选择性氧化,并意外展现出抗马氏规则的Wacker-Tsuji氧化活性。分子动力学模拟揭示F154L和M210V突变通过重塑血红素通道改变了酶的性能。
研究背景
真菌非特异性过加氧酶(UPOs,EC 1.11.2.1)是一类多样且高效的C–H氧官能化酶。它们能在温和条件下将氧原子选择性插入有机分子,为传统化学催化剂提供了有吸引力的替代方案,契合精细化学品、大宗化学品、药物及其代谢物合成等领域对可持续高效工艺日益增长的需求。近年来,工业界对兼具高选择性(化学、对映和区域选择性)、稳定性以及能在异源宿主中快速表达和改造的新型UPO需求不断增加。
2017年,研究者从普遍存在的纤维素分解内生子囊菌——球毛壳菌(Chaetomium globosum)中发现了一种新的UPO,命名为CglUPO。该酶与已知UPO序列空间差异显著。CglUPO在UPO家族中展现出独特的反应性和选择性,对多种底物具有高活性,包括甾体(如睾酮)、白藜芦醇类似物、异佛尔酮、降异戊二烯、长链不饱和脂肪酸、植物水解产物,甚至短链末端烯烃脂肪酸等化合物。然而,CglUPO稳定性低、异源表达差,一直阻碍其实际应用。
研究方法
关键资源表
本研究所用酵母和细菌菌株(含来源和基因型)均列于关键资源表中。
细菌和病毒菌株:S. cerevisiae BJ5465(ATCC 208289;LGCPromochem,西班牙),基因型:MATa ura3-52 trp1 leu2Δ1 his3Δ200 pep4:HIS3 prb1Δ1.6R can1 GAL;P. pastoris BG11(BioGrammatics PS 10011/ATUM,美国),基因型:aox1-Δ1;E. coli XL2-Blue(Agilent Technologies,美国),基因型:recA1 endA1 gyrA96 thi-1 hsdR17 supE44 relA1 lac [F′ proAB lacIqZΔM15 Tn10 (Tetr) Amy Camr]。
化学品、多肽和重组蛋白:DL-2-苯基丙醛(ThermoScientific,西班牙,130861000);(S)-顺式-马鞭草醇(ThermoScientific,347330050);(1S)-顺式-马鞭草酮(ThermoScientific,203630500);(−)-香芹醇(异构体混合物,ThermoScientific,B20636);苯乙酮(ThermoScientific,102410025);苯乙醛(ThermoScientific,A14263);苯乙烯(Merck Life Science,美国,S4972);氧化苯乙烯(Merck Life Science,S5006);4-氯苯乙烯(Merck Life Science,C71203);乙苯(Merck Life Science,E12508);四氢萘(Merck Life Science,429325);1-苯乙醇(Merck Life Science,P13800);Purpald(4-氨基-3-肼基-5-巯基-1,2,4-三唑,Merck Life Science,162892);(S)-(−)-柠檬烯(Merck Life Science,218367);(R)-(+)-柠檬烯(Merck Life Science,183164);(+)-柠檬烯氧化物(异构体混合物,Merck Life Science,218324);(S)-(+)-香芹酮(Merck Life Science,435759);(S)-(−)-紫苏醇(Merck Life Science,218391);桃金娘烯醇(Merck Life Science,W343900);异佛尔酮(Merck Life Science,I3509);3-氯过氧苯甲酸(Merck Life Science,273031);α-甲基苯乙烯(Merck Life Science,M80903);α-四氢萘酮(Merck Life Science,T19003);α-四氢萘酚(Merck Life Science,122408);2-(4-氯苯基)环氧乙烷(Merck Life Science,534757);4-羟基异佛尔酮(Enamine Ltd,乌克兰,EN300-68596);(4-氯苯基)乙醛(BLD Pharm,中国,BD28705);(S)-(−)-柠檬烯氧化物(Ambeed Inc,美国,A1372474);α-蒎烯氧化物(TCI Europe,瑞士,P1362);DMP(2,6-二甲氧基苯酚,TCI Europe,D0639);NBD(5-硝基-1,3-苯并二氧杂环戊烯,TCI Europe,M0848);藜芦醇(Merck Life Science,D133000);H₂O₂(30% w/w,Merck Life Science,H1009);NotI(New England Biolabs,美国,R0189);BglII(New England Biolabs,R0144);PmeI(New England Biolabs,R0560);BamHI(New England Biolabs,R0136);XhoI(New England Biolabs,R0146);Gibson Assembly Master Mix(New England Biolabs,E2611);iProof高保真DNA聚合酶(Bio-Rad,美国,1725301);酵母转化试剂盒(Merck Life Science,YEAST1);NucleoSpin质粒试剂盒(Macherey-Nagel,德国,740588.50);PCR Clean-up试剂盒(Macherey-Nagel,740609.50);Zymoprep酵母质粒小提试剂盒(Zymo Research,美国,D2004)。
寡核苷酸:引物(见克隆部分)购自Integrated DNA Technologies(美国)。
重组DNA:pJRoC30(California Institute of Technology,美国);pBSY5Z(Bisy,奥地利)。
沉积数据:DNA序列见补充信息;GC/MS数据见补充信息。
软件和算法:Prism 10(GraphPad,美国);AlphaFold 2(开源);Dali服务器(http://ekhidna2.biocenter.helsinki.fi/dali/);PROPKA 3.1(Schrodinger);AMBER (ff03.r1)(https://ambermd.org);BIOVIA Discovery Studio Visualizer(https://www.3ds.com/products/biovia/discovery-studio/visualization);NAMD 3.0(https://www.ks.uiuc.edu/Research/namd/);Zenodo MD沉积(https://doi.org/10.5281/zenodo.19047657)。
【数据】菌株:S. cerevisiae BJ5465(ATCC 208289)、P. pastoris BG11(PS 10011)、E. coli XL2-Blue(200150);培养基:原文未详述;温度:原文未详述;时间:原文未详述;数值:原文未详述
实验模型和研究参与者详情
本研究所用所有酵母和细菌物种(包括来源和基因型)均列于关键资源表中。
【数据】菌株:S. cerevisiae BJ5465、P. pastoris BG11、E. coli XL2-Blue;培养基:原文未详述;温度:原文未详述;时间:原文未详述;数值:原文未详述
方法详情
培养基和表达
合成完全(SC)缺陷型最小培养基:微孔板和摇瓶用SC最小培养基含6.7 g/L过滤除菌的酵母氮源基础、1.92 g/L过滤除菌的酵母合成缺陷型培养基补充剂(不含尿嘧啶)、2 g/L过滤除菌的五水棉子糖和25 mg/L过滤除菌的氯霉素。SC缺陷型平板含6.7 g/L过滤除菌的酵母氮源基础、1.92 g/L过滤除菌的酵母合成缺陷型培养基补充剂(不含尿嘧啶)、20 g/L高压灭菌的细菌琼脂、2 g/L过滤除菌的葡萄糖和25 mg/L过滤除菌的氯霉素。
S. cerevisiae表达培养基:无菌表达培养基含20 g/L细菌蛋白胨、10 g/L酵母提取物、67 mM KH₂PO₄ pH 6.0缓冲液、2.2%过滤除菌的半乳糖、2.2 mM过滤除菌的MgSO₄、3.16%乙醇和25 mg/L过滤除菌的氯霉素。YP培养基含10 g/L酵母提取物、20 g/L细菌蛋白胨。YPD溶液含10 g/L酵母提取物、20 g/L细菌蛋白胨、2 g/L无菌葡萄糖、25 mg/L氯霉素。Luria-Bertani(LB)培养基含5 g/L酵母提取物、10 g/L细菌蛋白胨、10 g/L NaCl(博来霉素筛选时为5 g NaCl)、100 mg/L氨苄青霉素或25 mg/L博来霉素。
P. pastoris生物反应器表达培养基:基础盐培养基(BMG)初始体积12 L,含26.7 mL/L 85%磷酸、0.93 g/L CaSO₄·2H₂O、14.9 g/L MgSO₄·7H₂O、18.2 g/L K₂SO₄、4.13 g/L KOH、40 g/L甘油。PTM1微量盐溶液经过滤除菌,含以下成分:6 g/L CuSO₄·5H₂O、0.08 g/L NaI、3 g/L MnSO₄·H₂O、0.2 g/L Na₂MoO₄、0.02 g/L H₃BO₃、0.5 g/L CoCl₂、20 g/L ZnCl₂、65 g/L FeSO₄·7H₂O、0.2 g/L生物素、5 mL/L硫酸。
【数据】培养基:SC最小培养基含6.7 g/L YNB、1.92 g/L补充剂、2 g/L棉子糖、25 mg/L氯霉素;SC平板含20 g/L琼脂、2 g/L葡萄糖;表达培养基含20 g/L蛋白胨、10 g/L酵母提取物、67 mM KH₂PO₄ pH 6.0、2.2%半乳糖、2.2 mM MgSO₄、3.16%乙醇;BMG含26.7 mL/L磷酸、0.93 g/L CaSO₄·2H₂O、14.9 g/L MgSO₄·7H₂O、18.2 g/L K₂SO₄、4.13 g/L KOH、40 g/L甘油;温度:原文未详述;时间:原文未详述;数值:pH 6.0
CglUPO在S. cerevisiae中的克隆
编码主要CglUPO的基因(GenBank登录号:CHGG_00319,NCBI参考序列:XM_001219539.1)来自球毛壳菌(Mycobank编号:172545,菌株CBS 148.51),用于合成多个融合基因,分别连接来自Marasmius rotula、Chaetomium globosum、Agrocybe aegerita野生型和进化分泌前导序列(PaDa-I)以及Caldariomyces fumago过加氧酶的信号肽。CglUPO融合基因使用BamHI和XhoI限制酶克隆到pJRoC30表达穿梭载体的GAL1启动子控制下。线性化载体上样于制备型琼脂糖凝胶,用NucleoSpin Gel and PCR Clean-up试剂盒纯化。纯化DNA用配备NanoQuant板的Infinite M200板读数仪(TECAN,瑞士)定量。相应基因(各200 ng)与线性化质粒(100 ng)混合,使用酵母转化试剂盒转化到S. cerevisiae中,通过IVOE促进体内基因重组和克隆。
【数据】基因:CglUPO(GenBank CHGG_00319,NCBI XM_001219539.1);菌株:CBS 148.51;质粒:pJRoC30(100 ng);DNA用量:基因200 ng;限制酶:BamHI、XhoI;温度:原文未详述;时间:原文未详述;数值:原文未详述
CglUPO及变体的实验室进化
PCR产生的每个DNA片段用NucleoSpin Gel and PCR Clean-up试剂盒凝胶纯化,用配备NanoQuant板的Infinite M200板读数仪(TECAN,瑞士)定量。然后,200 ng突变体文库(或基因片段)与100 ng线性化质粒混合,如上所述转化到S. cerevisiae中。酵母转化子在30°C孵育72小时,然后进行下述高通量筛选方案。每轮定向进化突变体文库构建的详细步骤如下。
第一轮:CglUPOSac基因在MnCl₂存在下用Taq DNA聚合酶进行epPCR。诱变PCR反应终体积50 μL,含3% DMSO、90 nM RMLN正义引物(5′-CCTCTATACTTTAACGTCAAGG)和RMLC反义引物(5′-GGGAGGGCGTGAATGTAAGC)、0.3 mM dNTPs(各0.075 mM)、0.015 mM MnCl₂、0.1 ng/μL模板、1.5 mM MgCl₂和0.05 U/μL Taq DNA聚合酶。PCR反应在梯度热循环仪(Mycycler,BioRad,美国)上进行,参数如下:95°C 2分钟(1个循环);94°C 45秒,50°C 30秒,72°C 90秒(30个循环);72°C 10分钟(1个循环)。随后,PCR产物纯化并如上所述转化到酵母中。约1,000个克隆用下述DMP高通量筛选方法筛选活性/分泌。
第二轮:本轮定向进化分为两种策略:i)全基因epPCR和ii)第210位点的定点饱和突变(SSM)。对于第一种策略……
【数据】DNA用量:突变体文库200 ng、线性化质粒100 ng;温度:30°C(孵育)、95°C 2 min、94°C 45 s、50°C 30 s、72°C 90 s、72°C 10 min(PCR);时间:72 h(孵育)、30个循环(PCR);数值:PCR体积50 μL、DMSO 3%、引物90 nM、dNTPs 0.3 mM、MnCl₂ 0.015 mM、模板0.1 ng/μL、MgCl₂ 1.5 mM、Taq 0.05 U/μL、筛选克隆数约1,000
研究结果
定向进化
先前一篇报道描述了通过基于Golden Gate克隆的模块化 shuffling 系统在S. cerevisiae和P. pastoris中功能性表达包括CglUPO在内的几种UPO。虽然该研究证明CglUPO的异源表达是可能的,但我们发现其在S. cerevisiae中的分泌水平极低(约0.6 mg/L),不幸的是这阻碍了任何进一步改造。在本研究中,我们首先测试了来自不同过加氧酶物种(Marasmius rotula、Caldariomyces fumago、Agrocybe aegerita——天然和进化前导序列——以及C. globosum)的多种信号肽,将其融合到成熟CglUPO上,并在不同培养条件下评估,以促进蛋白酶缺陷型S. cerevisiae菌株中的蛋白分泌。最佳结果来自天然CglUPO信号肽,使酶在96孔板微量发酵(用于定向进化中的高通量筛选[HTS])中总活性水平达到约3 U/L。这一微小但可检测的活性使该融合体(CglUPOSac)可作为定向进化 campaign 的出发亲本,通过迭代轮次的随机诱变、饱和诱变和体内DNA重组增强其在S. cerevisiae中的分泌(图1)。
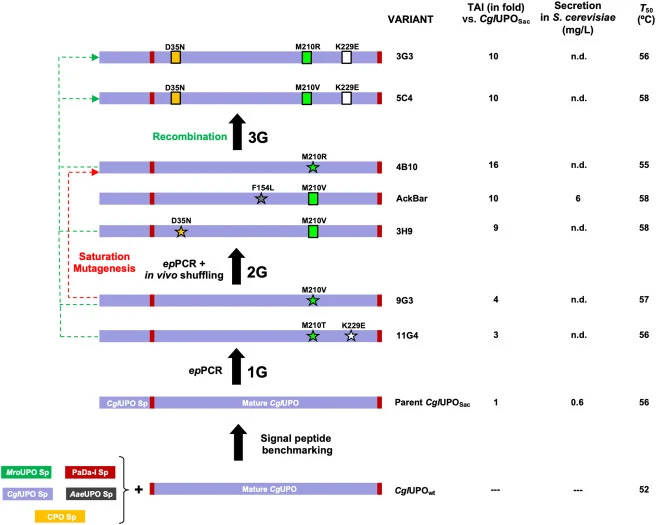
由于天然真菌来源的野生型酶(CglUPOwt)稳定性差,HTS分析设置为通过2,6-二甲氧基苯酚(DMP)氧化为coerulignone来同时监测总活性和热稳定性(分析变异系数约15%)。值得注意的是,我们观察到仅将CglUPO的表达系统从其天然宿主C. globosum切换到S. cerevisiae,T₅₀(孵育10分钟后酶保留50%残余活性的温度)就出现了4°C的重要动力学热稳定性提升——从52°C升至56°C。这一效应可能归因于酵母的(超)糖基化,这对稳定性可能有益(见表1生化表征)。
第一轮随机诱变产生了两个功能表达显著改善的突变体:变体9G3,携带M210V突变;变体11G4,携带M210T和K229E两个突变(图1)。鉴于这两个突变体中均存在M210 T/V替换,我们在第210位点构建了定点饱和突变文库,获得了4B10变体,由于包含M210R突变,总活性提高了16倍。同时,以9G3和11G4为亲本进行了新一轮随机诱变结合体内DNA shuffling,产生了AckBar突变体(在9G3基础上插入F154L突变)和3H9突变体(引入D35N替换),总活性分别提高10倍和9倍,分泌水平达到约6 mg/L。在进化的最后一步,我们试图在不同变体间寻找突变的最佳组合,但所得突变体均未改善前几代达到的表达水平。
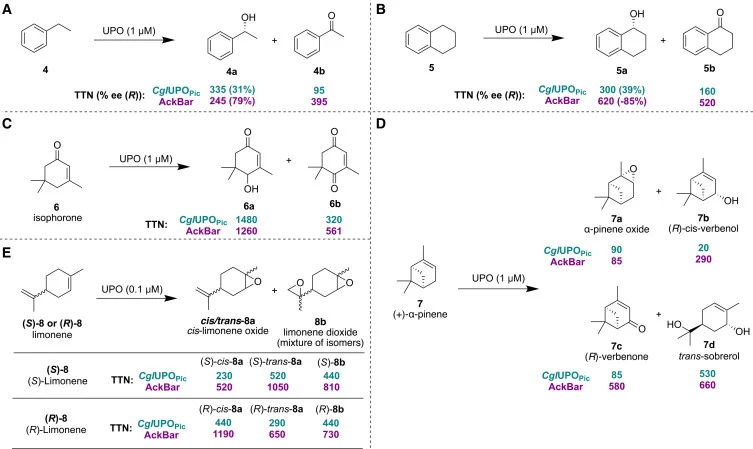
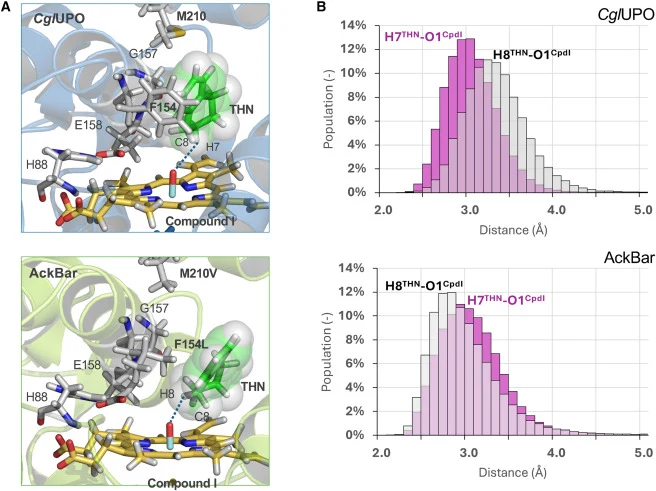
此时,我们决定用三种模型化合物(乙苯、苯乙烯和1,2,3,4-四氢萘[THN])对不同突变体的过加氧酶活性和选择性进行初步分析(表S1)。虽然大多数变体以相似的对映选择性催化这些分子的双电子氧化(单过加氧反应),但AckBar突变体对THN表现出戏剧性的对映选择性反转,将其转化为相应的苄醇(S)-1,2,3,4-四氢萘-1-醇,对映体过量(ee)为86%。这与亲本UPO形成强烈对比,后者根据酶是由C. globosum(原始野生型宿主,CglUPOwt)还是S. cerevisiae(CglUPOSac)表达,显示(R) ee值为20%或26%。该实验的另一个意外结果是观察到苯乙烯的抗马氏规则Wacker-Tsuji氧化生成苯乙醛,这是一个长期追求的合成反应,最近在其他UPO和细胞色素P450单加氧酶中有报道,但此前未在CglUPO中描述过。
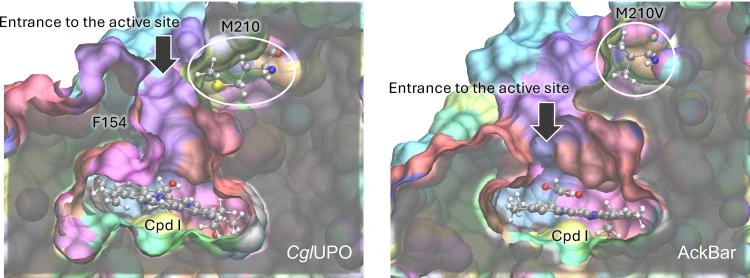
鉴于这些结果以及AckBar突变体的两个突变均位于血红素通道(见STAR Methods),我们决定在更大规模上生产AckBar突变体,以研究其生化特征和反应模式。
【数据】菌株:S. cerevisiae(分泌水平约0.6 mg/L)、CglUPOSac(总活性约3 U/L);突变体:9G3(M210V)、11G4(M210T/K229E)、4B10(M210R,活性提高16倍)、AckBar(F154L,活性提高10倍,分泌约6 mg/L)、3H9(D35N,活性提高9倍);温度:T₅₀从52°C升至56°C(切换表达系统);时间:10 min(T₅₀测定);数值:分析变异系数约15%、THN的ee 86% (S)、CglUPOwt的ee 20% (R)、CglUPOSac的ee 26% (R)
毕赤酵母补料分批生物反应器生产和生化表征
S. cerevisiae是定向UPO进化的首选宿主,因为有多种附加型载体可用,且存在成熟的突变体文库构建和筛选方案;而P. pastoris(Komagataella phaffii)通常用于过量生产进化变体,构成了所谓的UPO研究串联酵母表达系统。因此,亲本CglUPO和AckBar突变体被克隆到P. pastoris中,在30-L补料分批生物反应器中发酵,AckBar产量达到约90 mg/L(相当于培养上清液中数克UPO),是同一宿主中亲本酶(CglUPOPic)的三倍,且未进行任何工艺工程优化。
两种重组UPO均被纯化,并评估了其主要生化性质。SDS-PAGE获得的最小UPO糖型分子量为37,000 Da,估计糖基化程度约24%(表1;图S1)。通过测定T₅₀评估动力学热稳定性,获得约60°C的值,处于迄今报道的酵母表达最稳定重组UPO的范围之内(表1;图S2)。与在4°C储存数天内即完全失活的CglUPOwt不同,AckBar突变体保持近100%的储存稳定性达数月,成为蛋白质工程和未来工业应用的合适起点。重组酶在pH 5.0至9.0范围内有活性(表1;图S3)。在动力学参数方面,观察到AckBar的DMP催化效率显著增加(表1;图S4),这是筛选所用底物的副作用,尽管同时出现了底物抑制的增加。藜芦醇的氧化基本不变,两种变体的催化效率相对相似。
【数据】菌株:P. pastoris(Komagataella phaffii);产量:AckBar约90 mg/L(亲本的3倍);分子量:37,000 Da(SDS-PAGE);糖基化:约24%;T₅₀:约60°C;pH范围:5.0–9.0;储存稳定性:4°C数月近100%(AckBar)、数天完全失活(CglUPOwt);数值:生物反应器30 L
末端烯烃的抗马氏规则Wacker-Tsuji氧化
在完成亲本CglUPOPic和AckBar的生产、纯化和表征后,对一系列工业相关化合物的氧化进行了研究。我们从过加氧酶的典型模型底物苯乙烯(1)开始,观察到主要产物为预期的氧化苯乙烯(1a)(表2,条目1和2)。与S. cerevisiae表达的酶一样,使用0.1 μM低酶载量时观察到高总转化数(>5,000 TTN)和中等对映选择性[ee (S) 52%]。末端烯烃的抗马氏规则化学选择性Wacker-Tsuji氧化非常理想,因为这些反应可在温和条件下直接获得醛。有趣的是,亲本CglUPOPic和AckBar均形成苯乙醛(1b),即抗马氏规则Wacker-Tsuji氧化产物,TTN约800,但化学选择性适中(醛:环氧化物比例约0.15)。测试了另外两种苯乙烯类底物,4-氯苯乙烯(2)(条目3和4)和α-甲基苯乙烯(3)(条目5和6),两种变体均实现了普遍更高的醛/环氧化物比例。特别是,2被氧化为醛(2b),TTN > 2,500,化学选择性显著更高,CglUPOPic和AckBar分别为0.51和0.79。
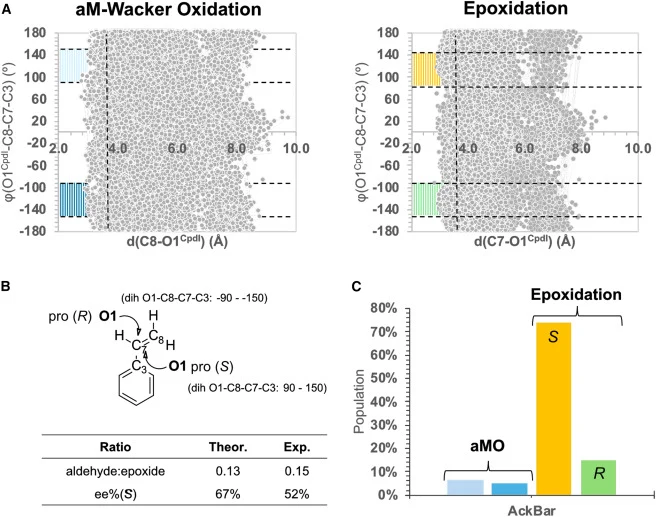
【数据】底物:苯乙烯(1)、4-氯苯乙烯(2)、α-甲基苯乙烯(3);酶载量:0.1 μM;TTN:苯乙烯>5,000、苯乙醛约800、4-氯苯乙烯醛>2,500;ee:苯乙烯氧化物(S) 52%;化学选择性(醛:环氧化物):苯乙烯约0.15、4-氯苯乙烯0.51(CglUPOPic)和0.79(AckBar);温度:原文未详述;时间:原文未详述
讨论与解读
本研究是使CglUPO——一种因其独特活性谱而备受关注的酶——变得更易获得和可进化的重要一步。通过定向进化,我们设计了一个重组分泌变体(AckBar),它对多种小有机底物具有高活性,且比同源生产的酶显著更稳定。催化烯烃抗马氏规则选择性Wacker氧化的能力使该酶成为朝此活性进化的优秀起点(工作正在进行中)。该反应具有重要的工业相关性,我们基于串联酵母表达系统(S. cerevisiae用于实验室进化,P. pastoris用于放大生产)的平台为应对这一挑战提供了直接途径。
值得注意的是,在本研究描述的进化过程中,尽管整个融合基因经历了随机诱变和重组,信号肽中未引入任何突变。但这并不表明分泌前导序列不适合朝此目标改造。实际上,在AckBar朝抗马氏规则氧化进化的过程中,研究人员有意在前导序列中引入突变,以将表达水平提升至当前极限以上,与筛选分析的灵敏度相匹配。另一个有前景的提高功能表达的策略是……
编译者解读
本研究展示了定向进化在解决UPO异源表达瓶颈中的核心价值:通过切换表达宿主获得4°C热稳定性提升、经多轮诱变将分泌量从0.6 mg/L提升至90 mg/L,说明宿主适配与突变累积可协同突破天然酶的应用限制。AckBar对THN的对映选择性反转(从(R)-20%到(S)-86%)和抗马氏规则Wacker氧化活性的出现,提示血红素通道残基F154L和M210V是调控底物取向与区域选择性的关键开关。局限在于醛/环氧化物化学选择性仍偏低(最高0.79),且信号肽未参与进化,未来可针对分泌前导序列和通道远端残基进一步改造,以提升抗马氏规则氧化的专一性。
参考来源
期刊:iScience, 2026
DOI: 10.1016/j.isci.2026.117534
DOI: 10.1016/j.isci.2026.117534