来源:Engineering 3′-UTR hairpin structures to modulate mRNA stability and recombinant protein production in Escherichia coli(Protein Expression and Purification)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
在大肠杆菌中提高重组蛋白产量,传统策略多聚焦于启动子强度、核糖体结合位点或密码子优化等转录与翻译层面,而mRNA自身的寿命却少有人系统改造。本研究在两种SUMO融合表达系统中,于编码序列下游引入人工设计的3′-UTR发夹结构,发现所有构建体的mRNA半衰期均延长约2至3倍。有意思的是,转录本稳定性的提升并未在所有体系中等比例转化为蛋白产量——SARS-CoV-2衍生肽体系蛋白含量最高提升6.8倍,而利拉鲁肽衍生肽体系仅约3倍。这一"脱钩"现象提示,mRNA稳定性只是限速环节之一,翻译延伸与肽链折叠等因素同样制约最终产量。
研究背景
大肠杆菌高效生产重组蛋白和多肽,不仅取决于转录活性,还取决于mRNA在细胞内的稳定性与持久性。在工业生物加工相关条件(尤其是高细胞密度培养)下,转录本快速周转会减少每个mRNA分子可进行的有效翻译事件数,从而限制蛋白积累。对短肽产物而言,这一制约尤为突出——其有效翻译本身受序列长度和表达背景限制,mRNA稳定性因此成为产量的关键决定因素。正因如此,mRNA稳定性已逐渐成为细菌表达工程中一个日益重要的设计靶点。
目前大肠杆菌中增强重组表达的成熟方法多集中于转录和翻译控制,包括启动子强度、核糖体结合位点设计、密码子优化和质粒拷贝数等。这些手段能显著提高转录本形成量和翻译起始效率,但并不直接控制转录本的寿命。相比之下,通过RNA结构设计实现转录后调控,提供了一条在不改变编码蛋白序列的前提下影响表达输出的互补路径。在细菌系统中,mRNA稳定性受转录本结构特征的强烈影响,尤其是其末端区域。
研究方法
2.1 菌株与质粒
质粒扩增和克隆使用大肠杆菌DH5α(New England Biolabs,美国),表达宿主为大肠杆菌BL21(New England Biolabs,美国)。编码SUMO-peptide 4和SUMO-liraglutide的DNA序列经大肠杆菌密码子优化(ATUM,美国)并商业合成。所有构建体基于CJSC "Farm-Holding"提供的单一质粒骨架,该骨架含卡那霉素抗性基因、Tac启动子、rrnB转录终止子、pBR322复制起始位点以及控制质粒拷贝数的rop基因(图S1)。SUMO编码序列两侧为EcoRI和BseRI限制性位点,肽编码序列两侧为BseRI和HindIII位点,从而支持融合构建体的模块化组装。针对每个目标产物,生成三种构建体变体:无额外3′端修饰的参照构建体、含合成3′-UTR发夹元件(变体1)的构建体、含修饰发夹元件(变体2)的构建体。两个修饰变体中,发夹形成元件均插入在编码区终止密码子与rrnB终止子之间。参照构建体不含额外工程化发夹,但保留天然rrnB转录终止子。引入的发夹元件被设计为形成稳定的茎环结构,通过改变茎长度和GC含量赋予其不同的预测热力学性质。重组质粒通过限制性克隆和连接组装,并经Sanger测序验证(Evrogen,俄罗斯)。所得表达菌株和构建体变体汇总于表1。所有构建体基于同一质粒骨架,仅在3′-UTR发夹设计上存在差异。为评估对rrnB终止子可能的结构干扰,使用RNAfold(ViennaRNA包)对完整3′区域——从终止密码子(核苷酸1–10)至完整rrnB终止子序列(核苷酸55–229)——进行全局RNA二级结构预测。插入的发夹结构位于核苷酸10–54之间。由于两种蛋白产物终止密码子下游的3′序列相同,分析针对三种独特的3′-UTR/终止子架构(对照、发夹A和发夹B)进行,而非针对每个单独菌株。折叠预测在37°C下以默认参数执行,最小自由能(MFE)结构使用VARNA可视化。
【数据】菌株:大肠杆菌DH5α(克隆)、大肠杆菌BL21(表达);质粒骨架元件:卡那霉素抗性基因、Tac启动子、rrnB终止子、pBR322复制起始位点、rop基因;限制性位点:EcoRI、BseRI、HindIII;发夹插入位置:终止密码子与rrnB终止子之间;RNAfold预测区域:核苷酸1–229;发夹位置:核苷酸10–54;折叠温度:37°C
2.2 转化与克隆筛选
验证后的质粒通过电穿孔导入大肠杆菌BL21细胞,使用1-mm间隙电击杯(1.7 kV)。转化后,细胞在SOC培养基中于37°C振荡恢复1小时,涂布于含卡那霉素(50 mg/L)的LB琼脂平板。平板于37°C过夜培养。挑取单菌落接种含卡那霉素(50 mg/L)的LB培养基,于37°C振荡培养至对数中期(OD600 ≈ 0.6–0.8)。通过添加IPTG至终浓度0.5 mM诱导重组蛋白表达,随后孵育6小时。表达水平使用15% Tricine凝胶通过SDS-PAGE评估。每个构建体筛选多个菌落(n = 6),选择目标蛋白表达水平最高的克隆用于后续实验。
【数据】电穿孔参数:1-mm间隙电击杯、1.7 kV;恢复培养基:SOC;恢复条件:37°C、1 h;筛选抗生素:卡那霉素50 mg/L;诱导剂:IPTG 0.5 mM;诱导时间:6 h;凝胶:15% Tricine;筛选克隆数:n = 6
2.3 摇瓶培养与表达条件
摇瓶实验中,所选克隆在含卡那霉素(50 mg/L)的LB培养基中培养。预培养物于37°C、180 rpm振荡过夜,用于接种新鲜培养基。培养物于37°C、180 rpm振荡培养至对数中期(OD600 ≈ 0.8 ± 0.2),随后添加IPTG至终浓度0.5 mM诱导重组蛋白表达。诱导在相同条件下进行6小时。除非另有说明,每个构建体实验至少进行三次独立生物学重复。生物学重复数:SARS-CoV-2肽系统n = 3;利拉鲁肽肽系统n = 6。重复代表从单一预选的高表达克隆甘油菌(第2.2节)接种的独立摇瓶培养物,而非独立转化的克隆。
【数据】培养基:LB + 卡那霉素50 mg/L;预培养:37°C、180 rpm、过夜;诱导时OD600:0.8 ± 0.2;IPTG浓度:0.5 mM;诱导时间:6 h;生物学重复:SARS-CoV-2肽系统n = 3、利拉鲁肽肽系统n = 6
2.4 mRNA稳定性 assay 与取样策略
mRNA稳定性分析中,两种肽系统每个构建体均使用三个独立生物学重复。每个重复从过夜培养物起始,在含卡那霉素(50 mg/L)的LB培养基中于37°C、180 rpm振荡培养至对数中期(OD600 ≈ 0.8 ± 0.2)。诱导时OD600为1.0 ± 0.1;诱导后180分钟OD600达到3.9 ± 0.2,此时加入利福平。诱导时,每个生物学重复分为四个平行培养物:三个诱导培养物和一个未诱导对照。通过添加IPTG至终浓度0.5 mM诱导表达。培养物在诱导后孵育180分钟再进行转录抑制。通过添加利福平至终浓度0.05 mg/mL抑制转录[27,28]。在利福平加入后的设定时间点(2、10、15、20、30和60分钟)收集样品。每个时间点取培养物等分试样并记录细胞密度(OD600)。为确保各时间点可比性,RNA提取的生物量输入相对于每个重复的初始样品(t = 0)进行归一化。细胞通过离心快速收获并立即在液氮中速冻以保持RNA完整性。所有样品在−80°C保存直至进一步处理。
【数据】诱导时OD600:1.0 ± 0.1;诱导后180 min OD600:3.9 ± 0.2;利福平浓度:0.05 mg/mL;取样时间点:2、10、15、20、30、60 min;平行培养:每重复4个(3诱导+1未诱导);保存温度:−80°C;生物学重复:n = 3
2.5 RNA提取、逆转录与qPCR
使用RNA Solo试剂盒(Eurogen,俄罗斯)按制造商说明从细胞沉淀中分离总RNA。细胞破碎在液氮下进行以确保高效裂解和RNA完整性保持[29]。残留基因组DNA通过DNase处理去除。RNA浓度和纯度通过分光光度法评估。cDNA合成使用MMLV逆转录试剂盒(Evrogen,俄罗斯)按制造商方案进行,每个样品使用等量总RNA。定量PCR(qPCR)使用qPCRmix-HS SYBR试剂盒(Eurogen,俄罗斯)在CFX96实时PCR检测系统(Bio-Rad,美国)上进行。使用靶向重组构建体的基因特异性引物(表S1)。每个引物对的退火温度经过优化,assay特异性通过熔解曲线分析评估。每个生物学重复的qPCR反应进行技术三重重复。目的基因(GOI)的转录本水平以管家基因ompA(pr589/pr590)归一化。目的基因(GOI)的转录本水平以管家基因ompA(pr589/pr590)归一化。ompA是在候选基因初步筛选后选定的参照,但原始Cq值检查显示利福平加入后存在时间依赖性波动(补充表S12–S17),表明ompA在转录抑制下并非完全稳定。因此,以ompA归一化得到的是表观(相对)降解速率而非绝对测量值。相对mRNA丰度使用ΔΔCt方法计算[30]。包含阴性对照(无模板对照和无RT对照)以确认无污染和基因组DNA扩增。
【数据】RNA提取试剂盒:RNA Solo(Eurogen);逆转录试剂盒:MMLV(Evrogen);qPCR试剂盒:qPCRmix-HS SYBR(Eurogen);仪器:CFX96(Bio-Rad);管家基因:ompA(pr589/pr590);qPCR技术重复:三重;定量方法:ΔΔCt;对照:无模板对照、无RT对照
2.6 毛细管电泳与SDS-PAGE蛋白分析
重组蛋白浓度通过变性条件下毛细管凝胶电泳测定,使用Beckman Coulter PA 8
【数据】原文未详述
研究结果
3.1 mRNA二级结构
使用RNAfold对对照序列和两个含发夹变体分析mRNA转录本的二级结构(图1)。对照序列的最优结构最小自由能(MFE)为−38.91 kcal/mol,热力学系综自由能为−75.09 kcal/mol,系综多样性为57.16,MFE结构频率为0.79%。含发夹变体1的构建体MFE为−62.70 kcal/mol,系综自由能−83.31 kcal/mol,系综多样性46.18,MFE结构频率0.03%。含发夹变体2的构建体MFE为−48.81 kcal/mol,系综自由能−84.76 kcal/mol,系综多样性54.33,MFE结构频率0.02%。RNAfold预测显示,rrnB终止子茎环(变体1中核苷酸55–229;变体2中65–239)在对照和两种含发夹架构中均保持结构完整。插入的发夹独立折叠为上游结构,未预测会破坏rrnB终止子核心。终止密码子(核苷酸1–3)位于两个元件上游,不参与任何长程相互作用。预测的二级结构中未观察到3′-UTR与上游区域之间的长程碱基配对相互作用。为定量评估翻译起始可及性,对所有六种完整转录本进行RNAplfold分析。Shine-Dalgarno序列(位置28–35)显示未配对概率≥ 0.92,起始密码子区域在所有构建体中显示未配对概率≥ 0.89(表2),表明无论3′-UTR架构如何,RBS均保持高度可及。
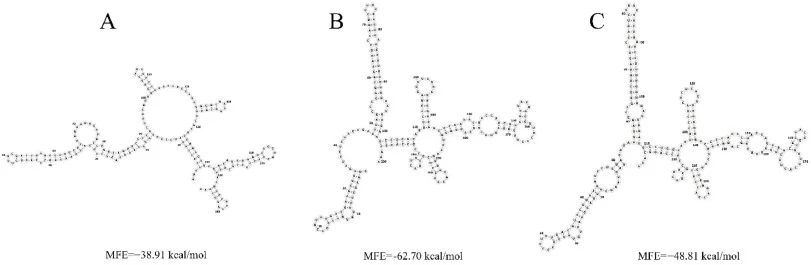
【数据】对照MFE:−38.91 kcal/mol;对照系综自由能:−75.09 kcal/mol;对照系综多样性:57.16;对照MFE频率:0.79%;变体1 MFE:−62.70 kcal/mol;变体1系综自由能:−83.31 kcal/mol;变体1系综多样性:46.18;变体1 MFE频率:0.03%;变体2 MFE:−48.81 kcal/mol;变体2系综自由能:−84.76 kcal/mol;变体2系综多样性:54.33;变体2 MFE频率:0.02%;rrnB终止子位置:变体1核苷酸55–229、变体2核苷酸65–239;SD序列位置:28–35;SD未配对概率:≥0.92;起始密码子未配对概率:≥0.89
3.2 3′-UTR发夹结构对mRNA稳定性的影响
在大肠杆菌BL21菌株中评估mRNA稳定性,这些菌株表达编码模型肽和利拉鲁肽衍生肽序列的SUMO融合构建体。对每个序列,设计无3′-UTR发夹或含两种工程化发夹结构之一的变体。qPCR测量转录本水平,衰减曲线使用单相指数模型拟合。所有构建体的mRNA降解均遵循单指数趋势,实验数据与拟合曲线吻合良好(R²范围为0.82至0.89)(图2 A和B,表3和表4)。基于均值估计的半衰期比较显示,引入3′-UTR发夹结构后mRNA稳定性增加(图2C–表3和表4)。对于编码模型肽的构建体,无发夹变体(BL21\pF1222)半衰期为4.46分钟,而含发夹结构的构建体半衰期增加至10.69分钟(BL21\pF1252)和9.72分钟(BL21\pF1310)。编码利拉鲁肽衍生肽序列的构建体观察到类似趋势。基线半衰期(BL21\pF1229)为4.23分钟,引入发夹结构后半衰期增加至11.40分钟(BL21\pF1266)和10.43分钟(BL21\pF1312)。因此,对于两种测试序列,3′-UTR发夹的存在与mRNA半衰期增加相关——相比缺乏额外工程化发夹但保留天然rrnB终止子茎环的构建体。效应幅度因构建体而异,但方向保持一致。
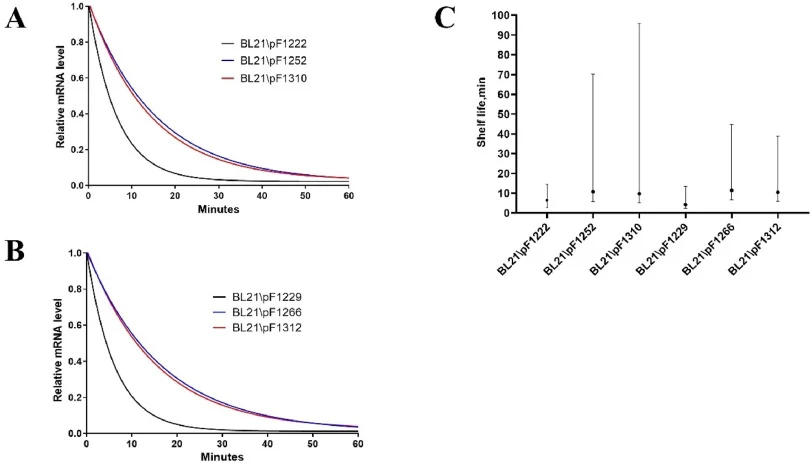
【数据】R²范围:0.82–0.89;BL21\pF1222半衰期:4.46 min;BL21\pF1252半衰期:10.69 min;BL21\pF1310半衰期:9.72 min;BL21\pF1229半衰期:4.23 min;BL21\pF1266半衰期:11.40 min;BL21\pF1312半衰期:10.43 min
3.3 3′-UTR发夹设计对大肠杆菌蛋白产量的影响
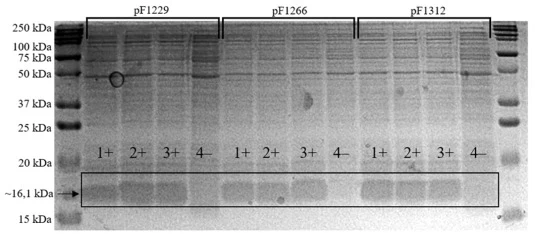
特定细胞融合蛋白含量在测试菌株间差异显著(图3,表S19)。第一组中,两个变体相比对照菌株BL21/pF1222均观察到蛋白产量显著增加。最高产量为BL21/pF1252(104.9 ± 1.6 mg/g生物量),相对于对照(15.47 ± 0.71 mg/g生物量,p < 0.0001)增加约6.8倍。构建体BL21/pF1310也显示出显著更高的特定细胞融合蛋白含量(67.78 ± 6.50 mg/g生物量),相比对照增加约4.4倍(p = 0.0084)。第二组中,两个变体的特定细胞融合蛋白含量也高于对照BL21/pF1229(15.82 ± 1.52 mg/g生物量),BL21/pF1266达到50.89 ± 8.51 mg/g(p = 0.0003),BL21/pF1312达到53.00 ± 8.25 mg/g(p = 0.0002),分别增加约3.2倍和3.4倍。统计分析使用Welch's ANOVA followed by Dunnett's T3多重比较检验。两组均观察到显著总体效应。SDS-PAGE分析确认SUMO-peptide和SUMO-liraglutide构建体均表达为预期分子大小的蛋白(图4和图5)。
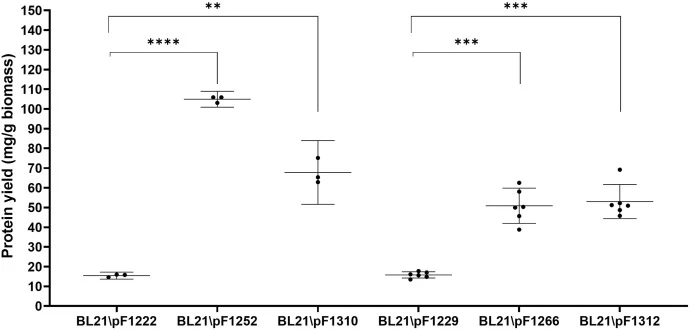
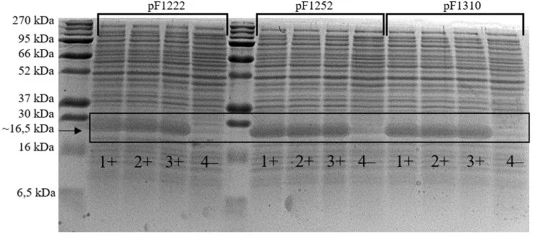
【数据】BL21/pF1222蛋白含量:15.47 ± 0.71 mg/g;BL21/pF1252蛋白含量:104.9 ± 1.6 mg/g;BL21/pF1252倍数:约6.8倍;p < 0.0001;BL21/pF1310蛋白含量:67.78 ± 6.50 mg/g;BL21/pF1310倍数:约4.4倍;p = 0.0084;BL21/pF1229蛋白含量:15.82 ± 1.52 mg/g;BL21/pF1266蛋白含量:50.89 ± 8.51 mg/g;BL21/pF1266倍数:约3.2倍;p = 0.0003;BL21/pF1312蛋白含量:53.00 ± 8.25 mg/g;BL21/pF1312倍数:约3.4倍;p = 0.0002;统计方法:Welch's ANOVA + Dunnett's T3
讨论与解读
在3′-UTR中引入发夹结构使所有测试构建体的mRNA稳定性均得到提升。然而,对特定细胞融合蛋白含量的影响因表达系统而异。在SUMO–SARS-CoV-2衍生肽系统(BL21\pF1222、BL21\pF1252、BL21\pF1310)中,mRNA半衰期增加约2.4倍,同时蛋白产量大幅增加,BL21\pF1252达约6.8倍,BL21\pF1310达约4.4倍。此案例中mRNA降解似乎是限速因素之一,其稳定化直接转化为蛋白积累增加。SUMO–利拉鲁肽衍生肽系统(BL21/pF1229、BL21/pF1266、BL21/pF1312)则呈现不同的定量关系。尽管mRNA半衰期也增加约2.5倍,特定细胞融合蛋白含量的增加较为温和(约3倍)。这种脱钩表明,在该系统中,一旦mRNA稳定性改善,下游过程——如翻译延伸、核糖体回收或肽折叠效率——成为限速环节。mRNA可能积累而无相应的高效翻译增加,这很可能解释了观察到的非比例关系。从机制上讲,这种行为与RNA二级结构降低核酸外切酶可及性的已知作用一致。3′端发夹结构可通过限制核酸外切酶对转录本的接近来减缓mRNA降解。
编译者解读
该研究用最简单的RNA二级结构元件——3′-UTR发夹——撬动了mRNA稳定性这一常被忽视的调控维度,方法设计干净利落:同一质粒骨架、仅变3′端发夹,变量控制到位。但两个体系间"稳定化→产量"转化效率的巨大差异(6.8倍 vs 3倍)恰恰说明,mRNA寿命只是翻译通量的一个乘数因子,而非决定项。对合成生物学而言,这意味着3′-UTR工程更适合作为表达优化组合拳中的一环,与密码子优化、RBS工程或翻译延伸因子共表达联用,才可能逼近理论产量上限。单点改造的天花板,往往由体系中最慢的那一步决定。
参考来源
期刊:Protein Expression and Purification, 2027
DOI: 10.1016/j.pep.2026.106993
DOI: 10.1016/j.pep.2026.106993