来源:Redox-dependent structural switching converts Escherichia coli thioredoxin 2 into a molecular chaperone(Biochemical and Biophysical Research Communication)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
硫氧还蛋白(Trx)是普遍存在的氧化还原酶,通过硫醇-二硫键交换维持细胞氧化还原稳态。大肠杆菌硫氧还蛋白2(EcTrx2)具有一个经典硫氧还蛋白EcTrx1所没有的N端锌结合结构域,但其生理意义长期不明。本研究揭示EcTrx2在氧化应激下发生可逆的、氧化还原依赖的结构切换,并伴随功能转化:氧化条件促进高分子量寡聚复合物形成,还原条件则有利于低分子量形式。氧化型EcTrx2表面疏水性增加,holdase分子伴侣活性显著增强,同时二硫键还原酶活性降低。N端锌结合结构域的缺失会消除氧化还原依赖的结构转变并削弱伴侣激活,表明该结构域是应激响应功能切换所必需的。
研究背景
好氧代谢不可避免地产生活性氧(ROS),当细胞暴露于热、氧化剂或重金属时ROS水平升高。ROS积累超出细胞缓冲能力后,蛋白质被氧化、折叠受损并发生聚集,若不加以控制可导致细胞死亡。细菌通过整合的防御网络应对这一威胁:硫氧还蛋白、过氧化物还原酶、过氧化氢酶和分子伴侣共同维持细胞内的氧化还原平衡与蛋白质质量。
在细胞氧化还原酶中,硫氧还蛋白以分子量小、序列高度保守著称,通过Cys-Gly-Pro-Cys活性位点基序催化硫醇-二硫键交换。大肠杆菌依赖硫氧还蛋白1(EcTrx1)作为主要的胞质还原酶,该酶向DNA合成、硫代谢和抗氧化防御等途径提供电子。第二种同工酶——硫氧还蛋白2(EcTrx2)在氧化应激下被特异性诱导,并具有一个EcTrx1完全缺失的N端锌结合结构域。该结构域已被与氧化应激抗性联系起来,但其作用机制和调控方式仍不完全清楚。越来越多的证据表明,一些氧化还原调控蛋白并不局限于单一催化功能:在应激条件下,它们发生结构重塑并获得超越经典酶活的保护性角色。
研究方法
2.1 蛋白表达与纯化
EcTrx1和EcTrx2基因分别从大肠杆菌基因组DNA中通过PCR扩增,并亚克隆至pGEX表达载体(New England Biolabs,美国)。重组质粒转化至大肠杆菌BL21(DE3),培养物在30 °C下生长至光密度(A600)为0.6,随后用0.5 mM IPTG诱导GST融合蛋白表达4小时。通过离心收集细胞,在含1 mM PMSF的PBS中超声裂解。GST融合蛋白通过谷胱甘肽亲和层析纯化,随后以尺寸排阻色谱(SEC)作为最终精纯步骤。蛋白纯度通过SDS-PAGE确认。为制备无GST标签的EcTrx2,将纯化的GST–EcTrx2用凝血酶在4 °C消化16小时以去除GST标签。裂解混合物随后重新上样至谷胱甘肽-Sepharose柱以去除游离GST和未切割的GST–EcTrx2。收集含无GST标签EcTrx2的流穿液,并通过SEC分析进一步纯化。蛋白纯度通过SDS-PAGE确认,无GST标签EcTrx2的氧化还原依赖寡聚行为通过Native-PAGE和SEC分析评估。
【数据】菌株:大肠杆菌BL21(DE3);诱导剂:0.5 mM IPTG;诱导温度:30 °C;诱导时间:4 h;裂解缓冲液:PBS + 1 mM PMSF;凝血酶消化温度:4 °C;凝血酶消化时间:16 h
2.2 氧化与还原处理
EcTrx2的氧化态通过室温下用10 mM H2O2处理30分钟生成。还原态通过用20 mM二硫苏糖醇(DTT)孵育1小时获得,随后通过缓冲液交换去除过量试剂。两种制备物均立即用于下述生化实验。
【数据】氧化剂:10 mM H2O2;氧化时间:30 min;氧化温度:室温;还原剂:20 mM DTT;还原时间:1 h
2.3 Native-PAGE与尺寸排阻色谱
Native-PAGE使用10%聚丙烯酰胺凝胶在非变性条件下进行,蛋白条带通过银染可视化。EcTrx2的寡聚状态通过SEC分析,使用Superdex 200 HR 10/30柱(Cytiva),以含150 mM NaCl的50 mM HEPES缓冲液(pH 8.0)平衡。色谱柱用铁蛋白(440 kDa)、醛缩酶(158 kDa)、伴清蛋白(75 kDa)、卵清蛋白(44 kDa)和核糖核酸酶A(13.7 kDa)(Cytiva)校准。蛋白以0.5 mL min⁻¹的流速洗脱,收集对应高分子量(HMW)和低分子量(LMW)组分的馏分用于后续分析。校准标准的洗脱位置在SEC图谱中标注为分子大小参考点。由于SEC反映的是流体力学行为而非直接定义分子质量或亚基数,仅凭这些数据未指定具体的寡聚化学计量比。
【数据】凝胶浓度:10%聚丙烯酰胺;色谱柱:Superdex 200 HR 10/30;缓冲液:50 mM HEPES(pH 8.0)+ 150 mM NaCl;流速:0.5 mL min⁻¹;校准品:铁蛋白440 kDa、醛缩酶158 kDa、伴清蛋白75 kDa、卵清蛋白44 kDa、核糖核酸酶A 13.7 kDa
2.4 表面疏水性测定
表面疏水性使用bis-ANS荧光评估。EcTrx2蛋白样品(10 μM)在指定条件下预孵育30分钟,随后加入bis-ANS(10 μM),使用390 nm激发波长记录荧光光谱,发射扫描范围为400至600 nm。
【数据】蛋白浓度:10 μM;bis-ANS浓度:10 μM;预孵育时间:30 min;激发波长:390 nm;发射扫描范围:400–600 nm
2.5 Holdase分子伴侣活性
Holdase分子伴侣活性通过监测苹果酸脱氢酶(MDH)和柠檬酸合酶(CS)在45 °C、50 mM HEPES-KOH缓冲液(pH 8.0)中的热聚集来评估。聚集通过分光光度法以340 nm光散射的增加来测量。为检测体外氧化应激诱导的聚集,将重组FtsJ蛋白与H2O2在含或不含EcTrx2的条件下孵育,并通过SDS-PAGE分析可溶性和聚集组分。
【数据】温度:45 °C;缓冲液:50 mM HEPES-KOH(pH 8.0);检测波长:340 nm;底物蛋白:MDH、CS、FtsJ
2.6 二硫键还原酶活性
二硫键还原酶活性使用DTNB还原实验测定,体系含0.3 μM硫氧还蛋白还原酶、5 mM DTNB、50 mM NADPH以及不同浓度的EcTrx2。通过分光光度法监测TNB形成导致的412 nm吸光度增加。
【数据】硫氧还蛋白还原酶:0.3 μM;DTNB:5 mM;NADPH:50 mM;检测波长:412 nm
2.7 透射电子显微镜
SEC获得的馏分在辉光放电的碳涂层网格上用1%乙酸铀酰负染,使用Tecnai G2 Spirit Twin透射电子显微镜(FEI,美国)在120 kV下观察。图像使用4K × 4K Ultrascan 895 CCD相机(Gatan,美国)记录,以比较HMW和LMW EcTrx2复合物的形态。
【数据】染色剂:1%乙酸铀酰;操作电压:120 kV;相机:4K × 4K Ultrascan 895 CCD
2.8 统计分析
所有实验独立进行至少三次。数据以平均值 ± 标准差(SD)表示。统计显著性使用Student's t检验或单因素方差分析(ANOVA),随后进行适当的事后比较。P < 0.05认为差异具有统计学显著性。
【数据】重复次数:至少3次;显著性阈值:P < 0.05;统计方法:Student's t检验或单因素ANOVA
研究结果
3.1 氧化应激下EcTrx2的氧化还原依赖结构重塑
序列比对显示EcTrx1与EcTrx2之间的氨基酸同一性为28%(补充图1A),两种蛋白共享一个含WCGPC活性位点基序的保守硫氧还蛋白结构域。然而,EcTrx2额外具有一个32个残基的N端锌结合结构域,该结构域在EcTrx1中完全缺失,含有四个协调锌离子的保守半胱氨酸残基(补充图1B)。这一结构差异促使我们检验锌结合结构域是否参与EcTrx2的应激依赖构象变化。重组GST-EcTrx2以可溶性蛋白形式表达并纯化至均一,用于后续生化分析。
许多不依赖ATP的分子伴侣在环境应激下发生可逆寡聚化。我们因此检验EcTrx2是否表现出类似的应激依赖结构重塑,特别是锌结合本身是否足以触发这一转变。为此,我们比较了锌未结合的还原形式(EcTrx2(Re))、锌结合的还原形式(EcTrx2(Zn²⁺))和氧化形式(EcTrx2(Ox))(图1A)。Native-PAGE分析显示,EcTrx2(Re)和EcTrx2(Zn²⁺)以低分子量(LMW)形式相似迁移,而只有EcTrx2(Ox)积累为高分子量(HMW)复合物(图1B)。还原性SDS-PAGE确认EcTrx2在三种条件下均保持单体状态,表明天然条件下表观分子大小的增加反映的是可逆寡聚化而非不可逆聚集。这些结果表明锌结合本身不足以诱导寡聚化,氧化驱动的二硫键形成是触发结构切换所必需的。
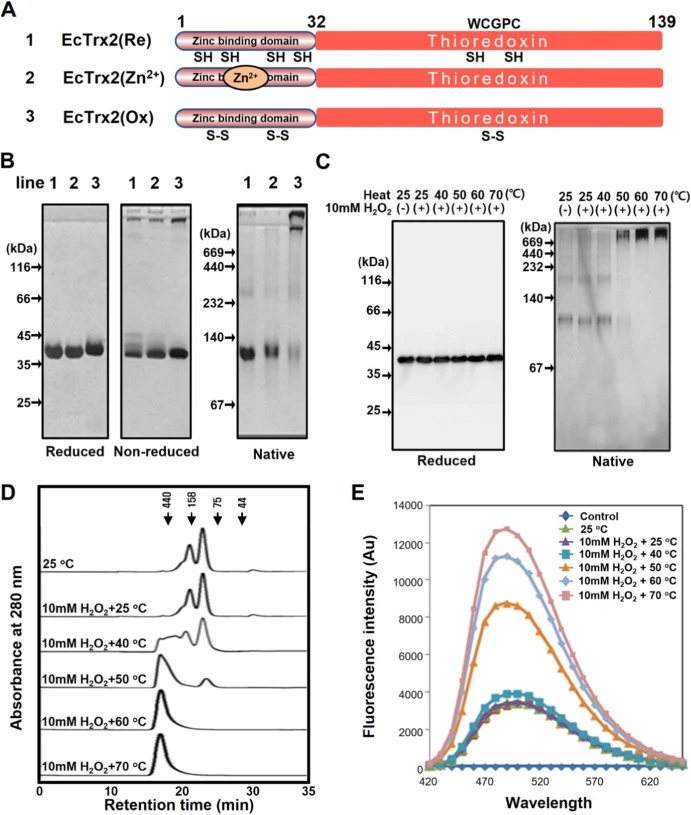
用H2O2或热处理EcTrx2进一步促进了这一转变:Native-PAGE显示氧化条件下凝胶顶部HMW物种积累,而还原使群体回到LMW形式。SEC证实了这一模式,显示随氧化进行HMW馏分扩展、LMW馏分相应减少(图1C和D),与动态可逆转变而非不可逆聚集一致。酵母胞质过氧化物还原酶I(cPrxI)也报道了类似模式,其中应激诱导的HMW复合物同样获得伴侣活性,提示氧化还原或应激诱导的寡聚化可能代表过氧化物解毒酶或硫醇基酶获得holdase功能的通用机制。
为排除GST融合伴侣导致所观察到的氧化还原依赖结构转变的可能性,我们独立检测了无GST标签的EcTrx2。SDS-PAGE确认了无标签EcTrx2的制备,而Native-PAGE和SEC分析显示无GST标签EcTrx2保留了与GST-EcTrx2相同的LMW和HMW物种间的氧化还原依赖转换(补充图S2A和B)。这些结果表明氧化依赖的结构变化在无GST条件下仍保留于EcTrx2中。
由于疏水表面暴露是许多holdase分子伴侣的标志,我们使用bis-ANS荧光评估EcTrx2。氧化型EcTrx2的荧光显著高于还原形式,与寡聚化过程中疏水表面的暴露一致(图1E)。其他氧化还原调控的分子伴侣,包括Hsp33和植物硫氧还蛋白样蛋白,也报道了类似的应激诱导疏水重塑,提示EcTrx2采用类似的结构策略获得伴侣功能。总之,这些结果表明氧化应激驱动EcTrx2的可逆寡聚化和伴随的表面疏水性增加,为后续部分研究的功能切换提供了结构基础。
【数据】EcTrx1与EcTrx2氨基酸同一性:28%;N端锌结合结构域长度:32个残基;氧化剂:H2O2;EcTrx2(Ox)形式:HMW复合物;EcTrx2(Re)和EcTrx2(Zn²⁺)形式:LMW物种;bis-ANS荧光:氧化型显著高于还原型
3.2 EcTrx2经历可逆的氧化还原依赖结构切换
为确认这一转变的可逆性,氧化型EcTrx2分别用NADPH/硫氧还蛋白还原酶或DTT处理。Native-PAGE显示HMW复合物逐渐转化为LMW物种,确认氧化诱导的结构并非不可逆聚集体,而是对周围氧化还原环境作出动态响应(图2)。这些可逆的HMW组装体可能由分子间二硫键和疏水相互作用共同稳定。鉴于细菌细胞频繁遭遇波动的氧化条件,这种可逆性具有生理相关性。EcTrx2不仅仅是作为组成型还原酶发挥作用,而是能够响应细胞氧化还原状态快速改变其四级结构,使单一蛋白无需额外蛋白质合成即可履行两种不同的保护角色。
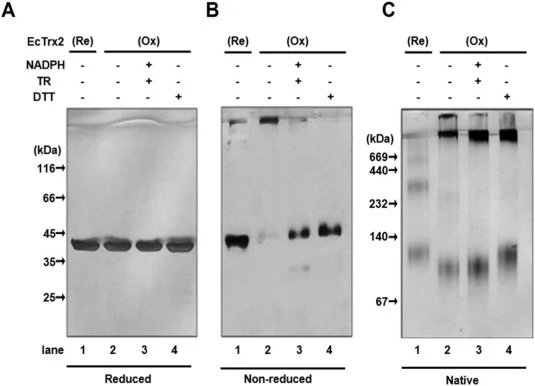
已知只有少数氧化还原调控蛋白经历这种类型的应激诱导结构切换。在Hsp33中,锌释放触发氧化去折叠和激活,而几种植物硫氧还蛋白样蛋白通过可逆寡聚化获得不依赖ATP的holdase活性。我们的数据表明EcTrx2属于这一类细菌氧化还原响应蛋白,能够按需重塑其四级结构,将其与几乎仅作为氧化还原酶发挥功能的经典硫氧还蛋白区分开来。综上所述,这些结果确立EcTrx2是一个动态的氧化还原响应蛋白而非静态氧化还原酶(图1和图2)。氧化应激促进具有增加表面疏水性的HMW寡聚体的可逆形成,而还原条件恢复LMW状态。这种结构重塑为后续部分描述的EcTrx2功能转化提供了机制基础。
【数据】还原剂:NADPH/硫氧还蛋白还原酶或DTT;HMW复合物:可逆转化为LMW物种;稳定力:分子间二硫键和疏水相互作用
3.3 氧化将EcTrx2从还原酶转化为holdase分子伴侣
为确定EcTrx2的氧化还原依赖结构重塑是否伴随功能转化,在不同氧化还原条件下检测了二硫键还原酶活性和分子伴侣活性。与先前报道一致,EcTrx2表现出硫氧还蛋白依赖的二硫键还原酶活性,尽管低于EcTrx1。值得注意的是,增加EcTrx2浓度逐渐抑制胰岛素聚集(图3A),表明EcTrx2具有双重功能特性。在还原条件下,EcTrx2主要作为硫醇-二硫键还原酶发挥作用,而诱导结构重塑的氧化条件将EcTrx2转化为分子伴侣。类似的功能转变在拟南芥硫氧还蛋白-h3及相关硫氧还蛋白样蛋白中已有报道,其中寡聚化伴随获得不依赖ATP的伴侣活性。
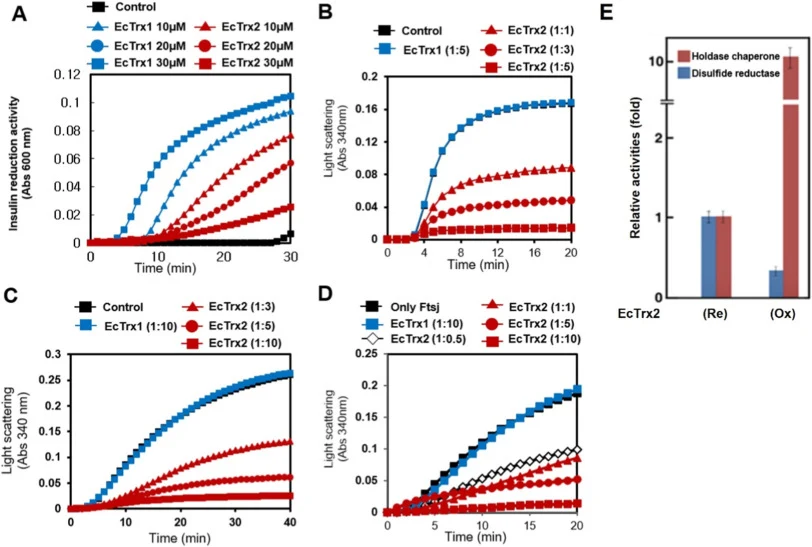
Holdase活性进一步使用热不稳定底物蛋白苹果酸脱氢酶(MDH)和柠檬酸合酶(CS)评估。两种底物在无EcTrx2时热处理后迅速聚集,而EcTrx2以浓度依赖方式抑制热聚集,在约1:5摩尔比下有效抑制MDH聚集,在约1:10摩尔比下有效抑制CS聚集(图3B和C)。EcTrx1在相同条件下表现出可忽略的伴侣活性,表明该活性是EcTrx2特有的而非细菌硫氧还蛋白的普遍性质。
氧化应激促进蛋白质去折叠和聚集,从而激活细胞蛋白质质量控制体系。FtsJ是氧化应激下氧化还原调控分子伴侣Hsp33的经典底物。与此一致,EcTrx2显著抑制H2O2诱导的FtsJ聚集,而EcTrx1表现出很小的保护作用。
【数据】EcTrx2还原酶活性:低于EcTrx1;MDH抑制摩尔比:约1:5;CS抑制摩尔比:约1:10;EcTrx1伴侣活性:可忽略;FtsJ聚集:EcTrx2显著抑制,EcTrx1保护作用很小
3.4 HMW和LMW EcTrx2馏分的结构与功能分析
尺寸排阻色谱(SEC)对EcTrx2(Ox)的分析显示了HMW(F-I)和LMW(F-II)馏分的分离(图4A)。分子大小标准的洗脱位置作为表观分子大小的参考点显示。透射电子显微镜(TEM)分析进一步揭示了HMW寡聚体是主要的伴侣活性物种,而LMW形式主要保留还原酶活性。
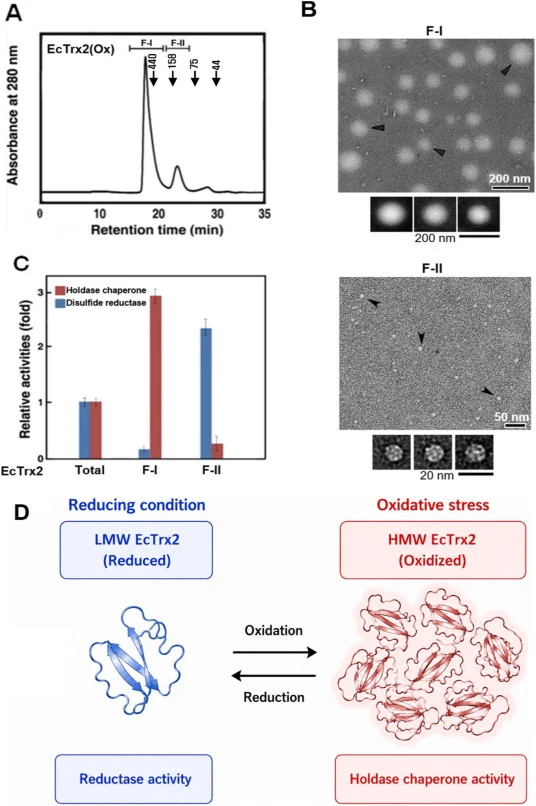
为确定哪种寡聚状态负责伴侣活性,对SEC分离的HMW和LMW馏分分别进行功能分析。HMW馏分表现出显著的holdase伴侣活性,而LMW馏分主要保留二硫键还原酶活性。这些结果表明EcTrx2的两种功能分别由不同的寡聚状态执行:氧化诱导的HMW复合物作为分子伴侣,而LMW物种作为还原酶。
【数据】SEC馏分:HMW(F-I)和LMW(F-II);HMW馏分:主要伴侣活性;LMW馏分:主要还原酶活性
3.5 N端锌结合结构域是应激响应功能切换所必需的
为确定N端锌结合结构域在氧化还原依赖结构转变和伴侣激活中的作用,构建了缺失该结构域的EcTrx2突变体(ΔN-EcTrx2)。Native-PAGE和SEC分析显示,ΔN-EcTrx2在氧化条件下未能形成HMW复合物,表明锌结合结构域的缺失消除了氧化还原依赖的结构转变。与结构结果一致,ΔN-EcTrx2在热聚集实验中未能表现出holdase伴侣活性,表明该结构域是伴侣激活所必需的。
这些发现证明N端锌结合结构域是EcTrx2应激响应功能切换所必需的,将这种独特的结构特征与氧化应激下的功能转化直接联系起来。
【数据】突变体:ΔN-EcTrx2(N端锌结合结构域缺失);ΔN-EcTrx2氧化条件下:未形成HMW复合物;ΔN-EcTrx2伴侣活性:未检测到
讨论与解读
本研究揭示了EcTrx2在氧化应激下经历可逆的、氧化还原依赖的结构切换并伴随功能转化。氧化条件促进HMW寡聚复合物形成,还原条件有利于LMW物种。氧化型EcTrx2表面疏水性增加与holdase分子伴侣活性显著增强及二硫键还原酶活性降低相关。SEC结合TEM进一步揭示HMW寡聚体是主要的伴侣活性物种,而LMW形式主要保留还原酶活性。N端锌结合结构域的缺失消除了氧化还原依赖的结构转变并削弱伴侣激活,证明该结构域是应激响应功能切换所必需的。这些发现将EcTrx2鉴定为氧化还原调控的分子伴侣,为细菌硫氧还蛋白在氧化应激下的可逆结构与功能切换提供了机制基础。
编译者解读: 该研究以大肠杆菌硫氧还蛋白2为模型,展示了一种"一蛋白两功能"的氧化还原开关策略——通过寡聚状态切换在还原酶与分子伴侣之间转换,无需新蛋白合成即可快速响应氧化应激。方法上,Native-PAGE与SEC联用清晰区分了可逆寡聚与不可逆聚集,bis-ANS荧光有效报告了疏水表面暴露。局限在于:锌结合结构域缺失突变体仅证明该域必需,但其锌离子释放与二硫键形成的先后因果关系尚未厘清;HMW寡聚体的具体化学计量比因SEC流体力学限制未确定。合成生物学应用中,这种应激响应型功能切换模块可用于构建智能蛋白工厂——在发酵后期氧化胁迫下自动激活保护功能,延长细胞寿命并提高重组蛋白可溶产量。
参考来源
期刊: Biochemical and Biophysical Research Communications, 2026
DOI: 10.1016/j.bbrc.2026.154523
DOI: 10.1016/j.bbrc.2026.154523