来源:A multiplex genome editing pipeline for rapid combinatorial trait engineering(Cell Reports Methods)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
复活灭绝物种的关键思路之一,是编辑现存近缘物种的基因组,使其表达已灭绝亲属演化出的关键性状。这类复杂项目需要将基因工程流水线与动物模型生产结合起来,以检验基因型—表型关联的假说。本研究建立了一套多重基因组工程流水线,可在可存活的首代小鼠中同时引入多达11处基因组修饰、覆盖7个不同基因,涵盖Cas9敲除、Cas9介导的同源依赖修复(HDR)和胞嘧啶碱基编辑三种编辑模式,并在受精卵与胚胎干细胞中均实现了高编辑效率。作为概念验证,研究者制备了6个小鼠模型,涉及毛发发育和脂质代谢相关基因,小鼠表现出预期的毛发表型,包括卷曲、纹理化被毛和金色毛发。
研究背景
小鼠是特征明确的模式物种,也是完善靶向性状工程、多重基因组编辑、高效动物生产及无创表型检测等流程的理想平台,这些技术与去灭绝、遗传拯救等目标密切相关。CRISPR-Cas9系统提供了日益多样的精确遗传修饰工具箱,已有成熟技术可通过将CRISPR-Cas9修饰的小鼠胚胎干细胞(mESCs)注射入囊胚以产生嵌合体,或通过直接递送CRISPR-Cas9编辑受精卵来获得基因编辑小鼠。近年来的进展提升了在小鼠中构建复杂遗传模型的能力,但如何让这一过程更高效仍是挑战。传统方法将mESCs注射入囊胚,只能产生部分编辑的第一代动物,需要繁育程序才能获得完全修饰的小鼠。直接编辑受精卵虽能缩短生产时间,却常导致嵌合现象,即并非所有细胞都携带目标修饰。将编辑后的干细胞注射入8细胞期胚胎可减少嵌合,但仍需耗时地建立染色体正常的完全修饰干细胞系。本文提出一套多重遗传工程流水线,用于在小鼠多位点引入精确基因组修饰。
研究方法
STAR★Methods
关键资源表
试剂或资源 来源 标识符
化学品、肽和重组蛋白
孕马血清促性腺激素(PMSG),Prospec,CAT#HOR-272;人绒毛膜促性腺激素(hCG),Sigma-Aldrich,CAT#CG10;EmbryoMax® Advanced KSOM胚胎培养基,Sigma-Aldrich,CAT#MR-101-D;Alt-R® S.p. HiFi Cas9核酸酶V3,IDT,CAT#1081061;Alt-R® Cas9电穿孔增强剂,IDT,CAT#1075916;OPTI-MEM®培养基,Thermo Fisher Scientific, Gibco,CAT#31985062;无核酸酶水,Synthego,CAT#0000000049;Tyrode酸性溶液,Sigma-Aldrich,CAT#T1788;Knockout Dulbecco改良Eagle培养基(KO-DMEM),Thermo Fisher Scientific, Gibco,CAT#10829018;Knockout血清替代物(KOSR),Thermo Fisher Scientific, Gibco,CAT#10828010;重组小鼠白血病抑制因子(LIF),Sigma-Aldrich,CAT#LIF2005;L-谷氨酰胺,Sigma-Aldrich,CAT#G5889;青霉素/链霉素,Sigma-Aldrich,CAT#15140122;非必需氨基酸,Thermo Fisher Scientific, Gibco,CAT#11140050;β-巯基乙醇,Sigma-Aldrich,CAT#M3148;0.025%胰蛋白酶溶液,Thermo Fisher Scientific, Gibco,CAT#R001100;GlutaMAX,Thermo Fisher Scientific, Gibco,CAT#35050061;胶原酶,Thermo Fisher Scientific, Gibco,CAT#17100017;Accumax,Thermo Fisher Scientific, Invitrogen,CAT#00-4666-56;Y-27632 2HCl,Selleckchem,CAT#S1049;Alt-R™ HDR增强蛋白,IDT,CAT#10029790;Lipofectamine 2000,Thermo Fisher Scientific, Invitrogen,CAT#11668027;OptiMEM减血清培养基,Thermo Fisher Scientific, Gibco,CAT#31985062;DMSO(二甲基亚砜),Sigma-Aldrich,CAT#D8418;Laminin-511,BioLamina,CAT#LN511;KOD ONE PCR聚合酶,Sigma-Aldrich,CAT#201NVS;秋水仙素,Sigma-Aldrich,CAT#C9754;KCl,Sigma-Aldrich,CAT#P3911;甲醇,Sigma-Aldrich,CAT#34860;冰乙酸,Sigma-Aldrich,CAT#1000630510;KaryoMAX Giemsa染液,Thermo Fisher Scientific, Gibco,CAT#10092013;Gurr缓冲液片剂,Thermo Fisher Scientific, Gibco,CAT#10582013;DMEM/F12,Thermo Fisher Scientific, Gibco,CAT#11320033;Neurobasal,Thermo Fisher Scientific, Gibco,CAT#21103049;B-27,Thermo Fisher Scientific, Gibco,CAT#17504044;N-2,Thermo Fisher Scientific, Gibco,CAT#17502048;CHIR99021,Selleckchem,CAT#S1263;PD0325901,Selleckchem,CAT#S1036;Quick Extract,Fisher Scientific, Lucigen,CAT#NC0302740。
关键商业分析
Sanger测序,Azenta Life Sciences,https://www.genewiz.com/;全质粒Nanopore测序,PLASMIDSAURUS,https://www.plasmidsaurus.com/;Lonza P3原代细胞4D-Nucleofector X试剂盒L,Lonza,CAT#V4XP-9096;Bionano Prep SP-G2新鲜细胞沉淀DNA分离方案,Bionano,文档号CG003;Bionano Prep直接标记与染色(DLS)方案,Bionano,文档号30206;Bionano Saphyr系统用户指南,Bionano,文档号30247;Qiagen Plasmid Plus Midi试剂盒,Qiagen,CAT#12945;NEBuilder HiFi DNA组装,NEB,CAT#E5520S;QIAquick凝胶提取试剂盒,Qiagen,CAT#28706;AMPure XP磁珠,Beckman Coulter,CAT#A63881;HiScribe® T7高产RNA合成试剂盒,NEB,CAT#E2040S;Monarch RNA纯化试剂盒,NEB,CAT#T2040L;NucleoSpin组织试剂盒,Macherey-Nagel,CAT#740952.50;Illumina DNA Prep试剂盒,Illumina,CAT#20060060。
沉积数据
全基因组测序数据,NCBI Sequencing Read Archive,PRJNA1499718。
实验模型:细胞系
DR4小鼠胚胎成纤维细胞(辐照处理),Thermo Fisher Scientific, Gibco,CAT#A34966;RRID:CVCL_RB12;B6129 mESC,本文,N/A。
实验模型:生物体/品系
B6SJLF1小鼠,The Jackson Laboratory,品系号#:100012;RRID:IMSR_JAX:100012;C57BL/6N小鼠,The Jackson Laboratory, Charles River Laboratories,品系号#:005304;RRID:IMSR_JAX:005304;B6C3F1 × B6D2F1小鼠受精卵,Embryotech,CAT#B1-30;ICR雌鼠,Inotiv,品系ICR (CD-1®);C57BL/6J雌鼠,The Jackson Laboratory,品系号#:000664;RRID:IMSR_JAX:000664;129/S4雄鼠,The Jackson Laboratory,品系号#:009104;RRID:IMSR_JAX:009104。
寡核苷酸
指导RNA:来自Synthego的合成sgRNA;来自IDT的guide cassette质粒克隆eblock;来自本文的质粒,表S6和表S7;HDR供体、单链DNA寡核苷酸,IDT,表S6和表S7;基因分型引物,本文,表S8;CBE-P2A-mScarlet3 mRNA,本文,N/A;用于i5和i7接头序列的NGS PCR2引物,IDT定制。
重组DNA
CBE-P2A-mScarlet3 mRNA IVT质粒,本文,N/A;CBE-P2A-mScarlet3质粒,本文,N/A;BEAR报告质粒,本文,N/A;eGFP整合piggyBAC质粒,本文,N/A。
软件和算法
ImageJ,ImageJ v1.54f;Biorender,https://www.biorender.com/;Prism,Graphpad,https://www.graphpad.com/;Bionano Solve操作理论:结构变异调用,Bionano,文档号CG-30110;Geneious Prime,Geneious 2024.0.7;CRISPR-Cas9指导RNA设计检查器,IDT;Form Bio VALID,Form Bio Inc,N/A;ICE分析,Synthego(现为EditCo),https://ice.editco.bio/#/;Form Bio DR GENE,Form Bio Inc,N/A;R,R Development Core Team,https://www.r-project.org/。
其他
0.1 cm间隙电穿孔杯,Bio-Rad,CAT#1652089;ECM 2001电穿孔系统,BTX,CAT#45-2046;FemtoJet 4i显微注射器,Eppendorf,N/A;Nikon ECLIPSE Ti2倒置显微镜,Nikon,N/A;4D-Nucleofector® X单元,Lonza,CAT#AAF-1003×;4D-Nucleofector®核心单元,Lonza,CAT#AAF-1003B;SONY SH800S分选仪,SONY,N/A;Sony分选芯片-100 μm,SONY,CAT#LE-C3210;iBright成像系统,Invitrogen,N/A;EVOS M7000成像系统,Invitrogen,N/A;Saphyr系统仪器,Bionano Saphyr™系统;Saphyr芯片,Bionano Saphyr™ Chip®;持卵管,Sunlight Medical,10-15 μm ID;XYClone激光系统,Hamilton Thorne Bioscience,N/A;Denovix DS-11,Denovix,N/A;Qubit Flex荧光计,Thermo Fisher Scientific, Invitrogen,N/A;Agilent TapeStation,Agilent Technologies,N/A;D1000 ScreenTape,Agilent Technologies,CAT#5067-5582;Illumina MiSeq,Illumina,N/A;NextSeq2000,Illumina,N/A。
实验模型和研究参与者详情
所有动物工作均经UT Southwestern机构动物护理与使用委员会(IACUC,美国德克萨斯州达拉斯)批准并在其监督下进行。小鼠饲养于无特定病原体设施的标准笼具中,温度20°C–26°C,湿度30–70%。笼具维持12小时光照/黑暗循环。小鼠可自由获取水和食物。断奶时,雌雄同窝小鼠按性别分开,与同性同窝小鼠同笼饲养。B6SJLF1或C57BL/6N小鼠,8–12周龄(The Jackson Laboratory,美国缅因州),用于受精卵生产。C57BL/6J雌鼠与129/S4雄鼠杂交,8–12周龄,用于生成mESCs。我们将B6129 mESCs维持在辐照处理的小鼠胚胎成纤维细胞(DR4 iMEF,Gibco,美国马萨诸塞州)上,37°C、5% CO2,培养基由KO-DMEM(Gibco,美国马萨诸塞州)组成,补充15% KOSR(Gibco,美国马萨诸塞州)、1% GlutaMAX(Gibco,美国马萨诸塞州)、1% MEM非必需氨基酸(Gibco,美国马萨诸塞州)、100 μM 2-巯基乙醇(Gibco,美国马萨诸塞州)、1000 U/mL LIF(Sigma-Aldrich,美国密苏里州)和1%青霉素/链霉素(Gibco,美国马萨诸塞州)。用于实验的B6129克隆通过WGS和Bionano光学基因组图谱验证,并表征为雄性(XY)。所有细胞系常规筛查支原体污染均为阴性。
【数据】小鼠品系:B6SJLF1、C57BL/6N、C57BL/6J、129/S4、ICR;饲养温度:20°C–26°C;湿度:30–70%;光照周期:12h光/暗;细胞培养温度:37°C;CO2浓度:5%;KOSR浓度:15%;GlutaMAX浓度:1%;非必需氨基酸浓度:1%;2-巯基乙醇浓度:100 μM;LIF浓度:1000 U/mL;青霉素/链霉素浓度:1%
方法详情
原核期胚胎生产
雌性B6SJLF1小鼠通过注射7.5 IU孕马血清促性腺激素(PMSG;Prospec,以色列雷霍沃特)进行超排卵,48小时后注射7.5 IU人绒毛膜促性腺激素(hCG;Sigma-Aldrich,美国密苏里州)。随后将这些雌鼠与雄性B6SJLF1小鼠交配,在hCG注射后20小时从输卵管收集受精卵。我们将收集的胚胎维持在KSOM培养基中(EmbryoMax® Advanced KSOM Embryo Medium,Sigma-Aldrich,美国密苏里州)。我们从C57BL/6N小鼠获取受精卵,采用上述相同的超排卵和交配方案,但使用6.0 IU PMSG后接6.0 IU hCG。
【数据】PMSG剂量:7.5 IU(B6SJLF1)或6.0 IU(C57BL/6N);hCG剂量:7.5 IU(B6SJLF1)或6.0 IU(C57BL/6N);hCG后收集时间:20h;培养基:KSOM
受精卵电穿孔和原核注射
对于实验A和B,我们使用如上所述新鲜收集的B6SJLF1受精卵。我们通过制备含有1 μM重组S. pyogenes Cas9核酸酶(Alt-R® S.p. HiFi Cas9 Nuclease V3,IDT,美国爱荷华州)、1 μM每种sgRNA(Synthego,美国加利福尼亚州或IDT,美国爱荷华州)的混合物来制备用于电穿孔的RNP复合物。
【数据】Cas9浓度:1 μM;sgRNA浓度:1 μM;Cas9来源:S. pyogenes;实验:A、B
研究结果
通过CRISPR-Cas9多重编辑受精卵快速生成羊毛小鼠
将CRISPR-Cas9核糖核蛋白(RNP)复合物电穿孔入小鼠受精卵,实现了六个靶基因的高效破坏:Fgf5、Mc1r、Fam83g、Fzd6、Tgm3和Fabp2(图2A和2B)。为评估每个靶基因多个单向导RNA(sgRNA)的编辑效率,我们将解冻的受精卵与Cas9 RNP复合物电穿孔。随后将胚胎培养至囊胚期,收集用于基因分型(图2A)。
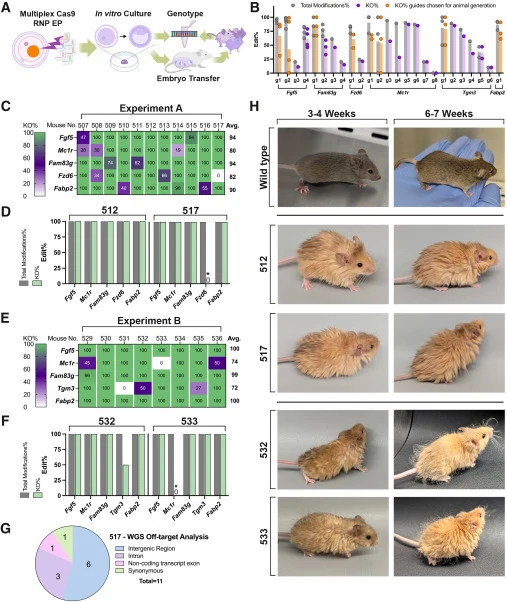
图2B显示了每个sgRNA的编辑效率(总修饰百分比和敲除百分比),范围从检测不到到100%编辑。我们基于三个标准选择用于动物生产的sgRNA:(1)高编辑效率,(2)低预测脱靶编辑风险,(3)靶向位置要么 closely mimic先前报道的突变,要么位于早期外显子以促进完全敲除(KO)。例如,虽然Mc1r指导RNA 5和6具有出色的效率,但每个都靶向指导RNA 1下游约200 bp处,这可能降低蛋白质功能完全丧失的可能性。因此,我们选择了指导RNA 1,因为其编辑效率仍接近70%。所有选择用于后续动物生产的sgRNA在图2B中以橙色高亮显示,每个靶基因内的结合位点见图S1A。
【数据】靶基因数:6个(Fgf5、Mc1r、Fam83g、Fzd6、Tgm3、Fabp2);编辑效率范围:检测不到至100%;Mc1r指导RNA 1编辑效率:接近70%;指导RNA 5和6靶向位置:指导RNA 1下游约200 bp
我们使用选定的sgRNA进行了两次动物生产实验。在实验A中,Cas9 RNP与靶向Fgf5、Mc1r、Fzd6、Fam83g和Fabp2的指导RNA共递送,在受精卵中实现了高效的同时基因破坏(KO)。我们将新鲜收集的B6SJLF2受精卵与多重Cas9 RNP电穿孔,近半数受精卵(63/134)发育至囊胚期(表S2)。我们将60个囊胚移植到三只代孕母鼠中(图2A)。出生11只幼崽(18%;表S2)。基因分型确认所有五个靶基因成功KO,11只幼崽中每个基因的平均效率从Mc1r的80%到Fam83g的94%不等(图2C)。仅检测到轻度嵌合:55个可能靶位点中的54个(5个靶点×11只小鼠)为100%修饰,42/55为100% KO。两只代表性小鼠#512和#517的详细基因型见图2D,该窝所有数据见图S1B。小鼠#512中所有五个靶基因均被完全破坏,而小鼠#517有四个靶基因的纯合KO和Fzd6的纯合框内9-bp缺失。
【数据】实验A:电穿孔受精卵数:134;囊胚数:63(47%);移植囊胚数:60;代孕母鼠数:3;出生幼崽数:11(18%);靶基因数:5;平均编辑效率:Mc1r 80%至Fam83g 94%;100%修饰位点:54/55;100% KO位点:42/55;小鼠#512:5个基因完全破坏;小鼠#517:4个纯合KO + Fzd6纯合框内9-bp缺失
在实验B中,我们生产了同时破坏Fgf5、Mc1r、Fam83g、Tgm3和Fabp2的小鼠(图2E)。我们如实验A一样电穿孔受精卵,囊胚形成率为56%(42/75;表S2)。在这些囊胚中,我们将28个移植到两只代孕母鼠中,出生8只幼崽,出生率为29%(8/28;表S2)。四个基因靶点实现了相当的编辑水平。我们检测到很少的嵌合,因为40个可能位点中的40个(8只小鼠×5个靶点)被完全修饰,仅6/40的KO低于95%。本实验的独特靶基因Tgm3在所有八只小鼠中编辑率为100%,其中五只小鼠为100% KO。两只小鼠#532和#533的详细基因型见图2F,该窝所有数据见图S1C。
【数据】实验B:电穿孔受精卵数:75;囊胚数:42(56%);移植囊胚数:28;代孕母鼠数:2;出生幼崽数:8(29%);靶基因数:5;完全修饰位点:40/40;KO低于95%的位点:6/40;Tgm3编辑率:8/8小鼠100%;Tgm3 KO率:5/8小鼠100%
我们对小鼠#517进行了短读长全基因组测序,以研究脱靶编辑的频率。对于选定的指导RNA,计算分析预测了282个与小鼠基因组相比具有三个或更少指导RNA错配的位点,这些是最可能发生脱靶编辑的位点。我们在小鼠#517的这些位点中鉴定出11个脱靶编辑,其中六个位于基因间区(图2G)。
【数据】全基因组测序小鼠:1只(#517);预测脱靶位点数:282(≤3个错配);鉴定脱靶编辑数:11;基因间区脱靶编辑数:6
毛色由Mc1r编辑状态和B6SJL F2个体中其他被毛和眼睛等位基因的遗传背景决定(图2H和S1B–S1D)。Mc1r成功KO导致金色被毛小鼠(如#512和#535)。一些小鼠(如#510和#515)也是Mc1r纯合KO,但具有白色被毛(图S1B和S1C)。两只Mc1r完全编辑的小鼠未显示预期的毛色表型。小鼠#533具有纯合21-bp框内缺失(图2F和2H),传统上不被视为KO,但仍具有金色被毛。小鼠#536在一个Mc1r等位基因中有大片段缺失KO,在另一个等位基因中有21-bp框内缺失,但具有黑色毛发(图S1C)。然而,小鼠#536中的21-bp Mc1r缺失与小鼠#533相比偏移了9 bp。当我们将两种突变与野生型MC1R蛋白比对时(图S1E),我们观察到小鼠#536中的缺失发生在MC1R第二跨膜结构域附近,并跨越E92残基。
【数据】Mc1r KO表型:金色被毛;小鼠#533:纯合21-bp框内缺失,金色被毛;小鼠#536:一个等位基因大片段缺失KO + 另一等位基因21-bp框内缺失,黑色毛发;#536缺失与#533缺失偏移:9 bp;#536缺失位置:MC1R第二跨膜结构域附近,跨越E92残基
实验A和B中的靶基因破坏导致小鼠具有多种独特的毛发表型(图2H、S1B和S1C)。所有小鼠均显示视觉上更长的毛发,符合Fgf5破坏的预期。至少杂合KO Fam83g的小鼠呈现 matted被毛,显著远离身体延伸,我们以下将其称为“woolly”(羊毛状)。在实验B中,Tgm3的KO似乎引入了波浪状被毛表型,并在一定程度上缓和了归因于Fam83g破坏的紊乱被毛。总体而言,所选毛发基因的同时多重编辑成功产生了具有夸张毛发表型的性状工程首代小鼠。
【数据】毛发表型:Fgf5破坏→毛发更长;Fam83g KO(至少杂合)→woolly被毛;Tgm3 KO→波浪状被毛
通过荧光富集胞嘧啶碱基编辑器方法多重编辑受精卵快速生成羊毛小鼠
接下来,我们使用CBE在受精卵中同时KO七个基因:Fgf5、Mc1r、Fam83g、Fzd6、Tgm3、Astn2和Fabp2(图1B和3A)。CBE在定义的靶向区域内将胞嘧啶(C)脱氨为胸腺嘧啶(T)。因此,CBE可精确安装提前终止密码子(Fgf5、Mc1r、Fam83g、Fzd6、Tgm3和Fabp2)或突变剪接位点以产生基因截短(Astn2),而不引发双链断裂。
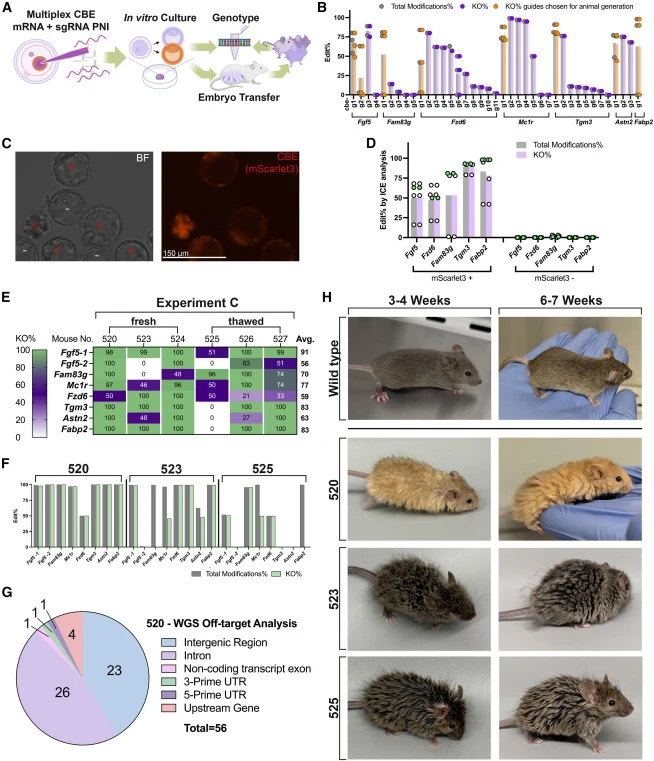
为评估CBE sgRNA的效率,我们使用解冻的受精卵进行原核注射(PNI),注射体外转录的CBE mRNA和化学合成的sgRNA,并在囊胚期收集胚胎进行基因分型(图3A)。我们发现胞嘧啶脱氨因sgRNA和靶基因而异(图3B)。我们使用实验A和B所述的选择标准,优先选择用于动物生产实验的sgRNA(图3B橙色柱;图S2A)。通过P2A连接共表达红色荧光蛋白mScarlet3是受精卵中CBE活性的有效指标(图3C、3D、S2B和S2C)。
【数据】靶基因数:7个(Fgf5、Mc1r、Fam83g、Fzd6、Tgm3、Astn2、Fabp2);CBE机制:C→T脱氨;荧光标记:mScarlet3(P2A连接);注射方式:原核注射(PNI);mRNA类型:体外转录CBE mRNA;sgRNA类型:化学合成
我们将CBE和靶向Fgf5、Fzd6、Fam83g、Tgm3和Fabp2的多重sgRNA显微注射入解冻的F2杂交受精卵。我们根据红色荧光信号的存在(+)或缺失(−)手动将囊胚分选为两组。基因分型分析确认所有红色荧光(+)胚胎中成功碱基编辑,以及单胚胎中的高多重编辑(图3D,白点;图S2B和S2C)。相反,缺乏红色荧光的胚胎(−)未显示可检测的基因编辑。
【数据】分选依据:红色荧光信号存在(+)或缺失(−);红色荧光(+)胚胎:成功碱基编辑;红色荧光(−)胚胎:无可检测基因编辑
在实验C中,我们利用CBE选择系统创建了在Fgf5、Mc1r、Fam83g、Fzd6、Tgm3、Astn2和Fabp2编辑的小鼠。新鲜和解冻胚胎表现出相当的囊胚形成率:新鲜胚胎为70%(78/111),解冻胚胎为71%(46/65)(表S2)。其中,胚胎荧光率在新鲜胚胎中为65%(51/78),在解冻胚胎中为35%(16/46)。新鲜受精卵组在移植47个荧光胚胎后获得5只幼崽(11%;5/47;表S2),解冻组出生3只幼崽(33%;3/9;表S2)。每只幼崽在至少一个位点具有至少杂合编辑,多只幼崽在5–6个位点为纯合,六只小鼠的平均KO率为73%(图3E)。
【数据】实验C:新鲜胚胎囊胚率:70%(78/111);解冻胚胎囊胚率:71%(46/65);新鲜胚胎荧光率:65%(51/78);解冻胚胎荧光率:35%(16/46);新鲜组移植荧光胚胎数:47;新鲜组出生幼崽数:5(11%);解冻组出生幼崽数:3(33%,3/9);纯合位点数:5–6个/幼崽;平均KO率:73%(6只小鼠)
讨论与解读
我们提出了一套快速高效的遗传工程流水线,能够在单一代内实现组合性状工程。利用该工作流,我们建立了六个独立遗传修饰的小鼠品系,显著扩展了多重编辑能力,并相比传统方法缩短了动物生产时间线。第一种方法使用CRISPR-Cas9直接编辑受精卵,实现多达五个基因的同时KO,编辑效率超过90%。第二种方法将该模式扩展至CBE,促进八个靶位点的同时精确编辑。最后,我们使用RNP Cas9 KO、HDR和碱基编辑的组合对mESCs进行遗传修饰,产生了在七个靶基因中多达十一处编辑的动物。与先前研究相比,我们的受精卵编辑工作流代表了多重编辑规模的进步。在CRISPR-Cas9多重编辑受精卵的早期演示中,Wang等人报道了两个基因的KO,效率高达80%。数年后,通过C-CRISPR方法实现了三个基因的同时KO,该方法向靶位点部署了9条指导RNA。我们的sgRNA筛选流水线通常为每个靶标鉴定出一条高效指导RNA,通过减少递送到受精卵中的指导RNA总数,实现了多达八个位点的多重编辑。在一项 elegant研究中,Mora-Bermudez及其同事开发了具有六个尼安德特人来源...
编译者解读
该研究在方法学上的核心贡献在于将sgRNA筛选、荧光标记富集与多种编辑模式(Cas9 KO、HDR、CBE)整合为一条可扩展的流水线,把小鼠多重编辑的规模从既往的2–3个基因推进到7个基因、11处修饰,且首代即可获得非嵌合或低嵌合动物。荧光标记mScarlet3与CBE共表达作为活性富集指标,是一个低成本、可推广的策略。局限方面,脱靶编辑(#517中11处)和毛色表型与基因型不完全对应(如#536)提示编辑结果仍受遗传背景与等位基因组合影响;此外,mESC路线涉及核型与多能性验证,周期仍长。总体而言,该流水线为复杂性状工程和去灭绝研究提供了可操作的模板。
参考来源
期刊:Cell Reports Methods, 2026
DOI: 10.1016/j.crmeth.2026.101572
DOI: 10.1016/j.crmeth.2026.101572