来源:SaMYC2 acts as a key transcriptional activator of terpenoid biosynthesis and is subject to feedback regulation by SaGNAT01 in Santalum album L.(Industrial Crops and Products)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
檀香(Santalum album L.)心材精油以萜类化合物为主要成分,经济价值极高,但其萜类生物合成的转录调控机制长期不明。本研究鉴定了一个核定位MYC类转录因子SaMYC2,通过DAP-seq、EMSA和双荧光素酶报告实验证实其直接结合并激活关键倍半萜合成基因SaSSy和SaCYP736A167的启动子。研究进一步揭示了一条此前未知的自我调控反馈回路:SaMYC2激活泛素样蛋白SaGNAT01的表达,而SaGNAT01蛋白又与SaMYC2互作,温和削弱后者的转录激活能力,但不影响SaMYC2蛋白稳定性。在番茄中异源过表达SaMYC2可改变果实挥发性谱并提升多种萜类含量。
研究背景
MYC转录因子属于bHLH超家族IIIe亚支,C端含bHLH结构域——由两个两亲性α螺旋和连接环组成,可介导MYC2、MYC3、MYC4等成员间的同源或异源二聚化。N端则带有转录激活结构域(TAD),能结合MED25蛋白亚基的10氨基酸片段启动转录。MYC还拥有一个茉莉酸-ZIM互作结构域(JID),这使其区别于其他bHLH蛋白,并赋予其与JAZ蛋白JAS结构域互作的能力。MYC家族基因已在多种被子植物中鉴定,包括拟南芥、牡丹、橡胶树,甚至地钱。其中MYC2是研究最为深入的成员,在茉莉酸信号通路中居核心地位,该通路依赖泛素化-蛋白酶体途径:当细胞内JA缺失或浓度较低时,负调控因子JAZ与MYC2互作,抑制JA响应基因的表达。
檀香是名贵经济树种,心材精油主要由萜类化合物构成,然而其萜类生物合成的转录调控机制研究仍十分薄弱。本研究旨在鉴定檀香中调控萜类生物合成的关键MYC转录因子,并解析其调控网络与反馈机制。
研究方法
2.1 MYC家族基因的全基因组鉴定
檀香基因组数据取自GWHCBIR00000000数据集,可在https://ngdc.cncb.ac.cn/gwh获取。从Pfam蛋白家族数据库中检索bHLH-MYC_N(PF14215)和HLH(PF00010)的结构域序列,采用E值阈值1 × 10⁻⁵。檀香中候选MYC转录因子首先通过隐马尔可夫模型(HMMER)进行预测,靶向含有这些结构域的序列。随后,这些候选序列在Pfam数据库的HMMER scan网络服务器中验证bHLH-MYC_N和HLH结构域的存在。
【数据】数据库:GWHCBIR00000000(https://ngdc.cncb.ac.cn/gwh);结构域:bHLH-MYC_N(PF14215)、HLH(PF00010);E值阈值:1 × 10⁻⁵;工具:HMMER、Pfam HMMER scan
2.2 保守基序与基因结构分析
檀香MYC蛋白序列中的保守基序使用在线程序MEME(版本4.11.2)分析。分析中最大基序数设为10,其余参数保持默认值。檀香MYC基因的内含子-外显子结构来源于檀香注释基因组数据。蛋白质的理论等电点和分子量通过ExPASy服务器测定。最终使用TBtools展示结果。
【数据】软件:MEME 4.11.2;最大基序数:10;其他参数:默认值;工具:ExPASy、TBtools
2.3 共线性分析与系统发育树构建
使用OrthoFinder进行基因复制、共线性及同线性分析,并用TBtools可视化同线性关系。同义(Ks)和非同义(Ka)替换率使用KaKs Calculator 2.0计算。采用FastTree中的最大似然法为檀香、拟南芥和水稻的MYC蛋白以及泛素化相关蛋白构建无根邻接(NJ)系统发育树。分析在广义时间可逆模型下进行,所得树通过Shimodaira–Hasegawa检验验证。
【数据】工具:OrthoFinder、TBtools、KaKs Calculator 2.0、FastTree;模型:Generalized Time-Reversible;检验方法:Shimodaira–Hasegawa test
2.4 亚细胞定位
使用基因特异性引物扩增SaMYC2和SaGNAT01的编码序列(CDS),去除终止密码子。SaMYC2扩增片段以阅读框方式插入pSAT6-EYFP-N1载体中黄色荧光蛋白(YFP)编码序列的上游。将pSAT6-EYFP-N1-SaMYC2构建体与核标记蛋白mCherry共转化至拟南芥叶肉原生质体中。在22 °C光照条件下孵育12 h后,使用Zeiss LSM 510共聚焦显微镜检测YFP荧光。对于SaGNAT01,将片段以阅读框方式融合至pBWA(V)H2STMVΩ载体中绿色荧光蛋白(GFP)的N端。随后将质粒导入根癌农杆菌GV3101菌株。转化后的农杆菌细胞浸润至本氏烟草叶片中。浸润植株置于28 °C温室中维持两天,之后使用Leica TCS SP8 STED ONE共聚焦显微镜检测荧光信号。
【数据】温度:22 °C(原生质体孵育)、28 °C(烟草温室);时间:12 h(原生质体)、2天(烟草);菌株:农杆菌GV3101;载体:pSAT6-EYFP-N1、pBWA(V)H2STMVΩ;显微镜:Zeiss LSM 510、Leica TCS SP8 STED ONE
2.5 SaMYC2的DAP-Seq
DAP-Seq按标准方案进行。从十年生檀香叶片提取的基因组DNA经富集、片段化后制备Illumina测序文库。SaMYC2蛋白与片段化基因组DNA互作。结合的DNA片段随后在Illumina HiSeq™ 4000平台上测序。干净的DAP-Seq读长使用Bowtie2(版本2.2.5)比对至檀香基因组。低比对质量读长被过滤,唯一比对至基因组单一位置的读长用于后续生物信息学分析。从转录起始位点(TSS)到转录终止位点(TES)区间及上下游2k区间的所有读长使用deepTools(版本3.2.0)定量。各组内生物学重复间的峰经过滤,仅保留两个重复中均存在的峰用于后续分析。富集峰区域用MACS2(版本2.1.2)鉴定,峰相关基因用ChIPseeker注释。保守基序检测使用MEME Suite,KEGG通路富集分析使用KOBAS 2.0数据库。所有DAP-Seq流程及后续数据分析由广州Gene Denovo生物技术有限公司完成,设两个独立生物学重复。质粒构建所用引物列于补充数据1。
【数据】测序平台:Illumina HiSeq™ 4000;比对工具:Bowtie2 v2.2.5;定量工具:deepTools v3.2.0;峰鉴定:MACS2 v2.1.2;注释:ChIPseeker;基序检测:MEME Suite;KEGG:KOBAS 2.0;植物材料:十年生檀香叶片;生物学重复:2个
2.6 酵母双杂交实验
SaMYC2的CDS根据其保守结构域进行截短修饰,随后插入PGBKT7(BD)载体。该构建体经验证无自激活活性。同时,SaGNAT01的全长CDS克隆至PGADT7(AD)载体。两个重组质粒共导入Y2H Gold酵母细胞。为评估蛋白-蛋白互作,转化子在多种选择培养基上筛选:SD/-Leu-Trp(DDO)、SD/-Leu-Trp-His添加5 mM 3-AT(TDO)以及SD/-Leu-Trp-His-Ade(QDO)。阳性对照使用携带pGBKT7–53(P53-BD)和pGADT7-T(T-AD)的共转化子,阴性对照使用pGBKT7-lam(Lam-BD)和pGADT7-T(T-AD)建立。载体构建所用引物列于补充数据1。
【数据】菌株:Y2H Gold酵母;载体:PGBKT7(BD)、PGADT7(AD);筛选培养基:DDO、TDO(5 mM 3-AT)、QDO;阳性对照:P53-BD + T-AD;阴性对照:Lam-BD + T-AD
2.7 双分子荧光互补(BiFC)实验
为进行BiFC实验,通过将SaMYC2和SaGNAT01的全长CDS分别克隆至pSm35s载体,构建pSm35s-MYC2-cYFP和pSm35s-nYFP-SaGNAT01质粒。这些质粒随后转化至根癌农杆菌GV3101菌株。转化后的农杆菌浸润至本氏烟草叶片。浸润的本氏烟草植株在28°C温室中生长两天。随后使用共聚焦显微镜(Leica TCS SP8 STED ONE,Wetzlar,德国)观察荧光信号。阴性对照包括两组组合:pSm35s-cYFP与pSm35s-nYFP-SaGNAT01,以及pSm35s-MYC2-cYFP与pSm35s-nYFP,还包括pSm35s空质粒(pSm35s-cYFP + pSm35s-nYFP)。载体构建所用引物详见补充数据1。
【数据】载体:pSm35s-MYC2-cYFP、pSm35s-nYFP-SaGNAT01;菌株:农杆菌GV3101;温度:28°C;时间:2天;显微镜:Leica TCS SP8 STED ONE;阴性对照:3组组合
2.8 GST pull-down实验
GST pull-down实验中,将1000 μg诱饵蛋白SaGNAT01-GST加入一个离心管,同时将1000 μg GST标签蛋白加入另一管作为对照。用IP稀释缓冲液将体积补至1 mL,室温轻柔混匀2 h。随后加入0.5 mL预冷IP洗涤缓冲液,洗涤三次。然后向每管加入1000 μg SaMYC2-His蛋白,用IP稀释缓冲液调整体积至1 mL。样品在4°C轻柔混匀16 h,随后每次用0.5 mL预冷IP洗涤缓冲液洗涤三次。从珠子上洗脱的蛋白通过免疫印迹分析,使用抗GST(1:10,000,CUSABIO,货号CSB-MA000304,美国)或抗His(1:5000,CUSABIO,货号CSB-MA000159,美国)抗体。
【数据】蛋白用量:SaGNAT01-GST 1000 μg、GST 1000 μg、SaMYC2-His 1000 μg;缓冲液体积:IP稀释缓冲液至1 mL、IP洗涤缓冲液0.5 mL×3次;温度/时间:室温2 h、4°C 16 h;抗体稀释比:anti-GST 1:10,000、anti-His 1:5000
2.9 Co-IP实验
将SaMYC2和SaGNAT01的全长CDS克隆至pBWA(V)Hs-TMVΩ载体,构建35S:SaMYC2-MYC和35S:SaGNAT01-GFP质粒。等量的这些质粒随后转入烟草原生质体。蛋白使用IP裂解缓冲液(25 mM Tris•HCl pH 7.4,150 mM NaCl,……)提取。
【数据】载体:pBWA(V)Hs-TMVΩ;构建体:35S:SaMYC2-MYC、35S:SaGNAT01-GFP;裂解缓冲液:25 mM Tris•HCl pH 7.4、150 mM NaCl;材料:烟草原生质体
研究结果
3.1 檀香SaMYC家族基因的鉴定与系统发育分析
通过本地BLASTP和HMMER分析,在檀香基因组中鉴定出共11个含bHLH和MYC结构域的转录因子。这11个MYC蛋白的氨基酸长度范围为415至716个残基(平均570.45 aa),预测等电点(pI)跨度为4.90–8.45(平均6.47)。其分子量(MW)介于46.36至77.66 kDa之间(平均62.99 kDa)。亚细胞定位预测确认所有11个MYC蛋白均定位于细胞核。为阐明进化关系,使用檀香(11个)、拟南芥(14个)和水稻(7个)的MYC蛋白序列构建了无根邻接(NJ)系统发育树。基于序列相似性和树拓扑结构的系统发育分类将檀香MYC转录因子分为五个不同亚组。第2组为最大分支,含三个转录因子,其余亚组各含两个成员。
【数据】鉴定转录因子数:11个;氨基酸长度范围:415–716 aa(平均570.45 aa);pI范围:4.90–8.45(平均6.47);分子量范围:46.36–77.66 kDa(平均62.99 kDa);系统发育分组:5个亚组;最大亚组:第2组(3个成员);物种:檀香11个、拟南芥14个、水稻7个
3.2 SaMYC基因的基序与结构分析
为评估遗传多样性,我们研究了11个SaMYC基因间的保守基序。MEME程序共鉴定出10个保守基序。所有11个MYC基因均以相似序列含有保守基序1、4、6和7。其中9个MYC基因包含保守基序5,SaMYC8和SaMYC10例外。此外,保守基序9为SaMYC2所独有,提示其功能分化可能与此独特性有关。为研究檀香MYC基因的功能与进化角色,我们分析了其结构多样性。分析揭示了MYC基因间不同的外显子-内含子结构:6个基因仅含单个外显子而无内含子,3个基因含8个外显子和7个内含子。值得注意的是,SaMYC09具有6个外显子和6个内含子,SaMYC06呈现7个外显子和6个内含子的独特构型。
【数据】保守基序总数:10个;共有基序:1、4、6、7(全部11个基因);基序5:9个基因含(SaMYC8、SaMYC10除外);基序9:SaMYC2独有;外显子-内含子结构:6个基因单外显子无内含子、3个基因8外显子7内含子、SaMYC09为6外显子6内含子、SaMYC06为7外显子6内含子
3.3 SaMYC家族基因的共线性分析
进行共线性分析以研究檀香中鉴定的MYC基因的进化关系。鉴定出5对直系同源基因对(SaMYC1/SaMYC4、SaMYC2/SaMYC7、SaMYC3/SaMYC6、SaMYC5/SaMYC8、SaMYC9/SaMYC11),均为片段重复的产物。这些重复对的Ka/Ks比值范围为0.13至0.31,表明这些片段重复事件受到强纯化选择。此外,在檀香、拟南芥和水稻间进行了跨物种直系同源分析,揭示与拟南芥有15对直系同源基因对,与水稻有1对。进一步比较檀香与拟南芥的MYC基因,初步揭示了檀香中MYC家族的谱系特异性收缩。
【数据】片段重复基因对:5对(SaMYC1/SaMYC4、SaMYC2/SaMYC7、SaMYC3/SaMYC6、SaMYC5/SaMYC8、SaMYC9/SaMYC11);Ka/Ks比值范围:0.13–0.31;跨物种直系同源:与拟南芥15对、与水稻1对
3.4 SaMYC2的特征、组织表达与亚细胞定位
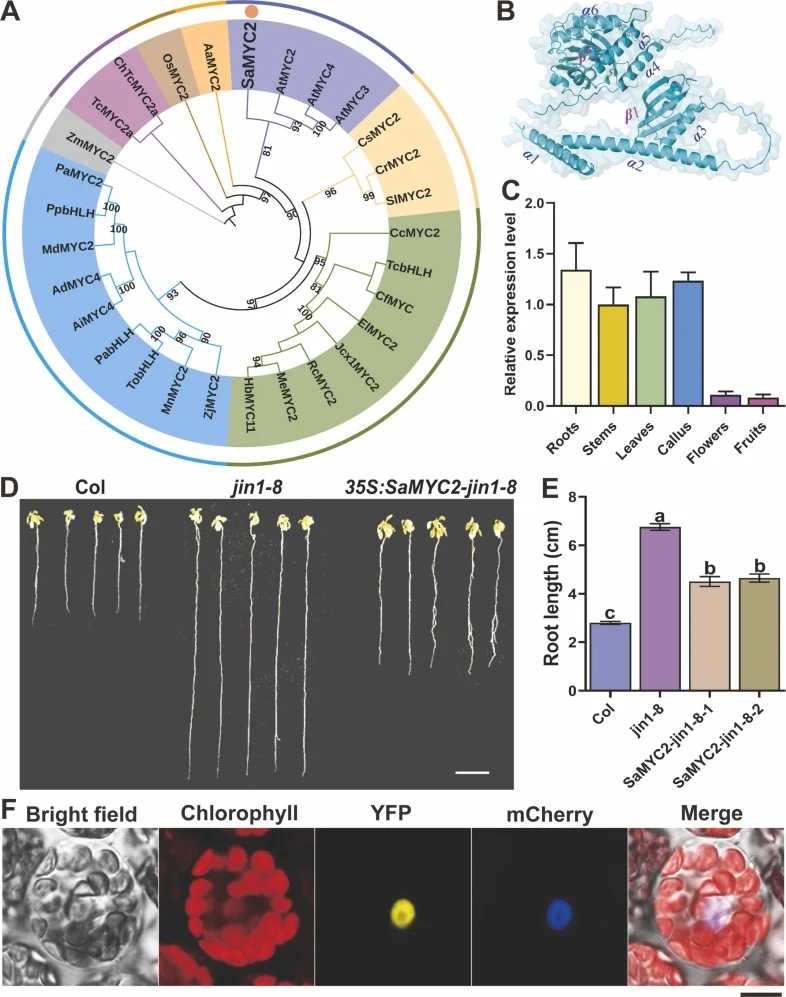
作为MYC家族的核心转录因子,MYC2在植物次生代谢调控中扮演主开关角色。因此,选择SaMYC2研究其是否参与檀香精油的生物合成。将SaMYC2与来自26个植物物种的28个bHLH蛋白进行系统发育分析,揭示其与拟南芥AtMYC2、AtMYC3和AtMYC4进化关系最近。此外,SaMYC2与茶树CsMYC2、长春花CrMYC2和黄花蒿AaMYC2表现出密切同源性(图1A)。结构建模和序列比对表明,SaMYC2的C端含有一个典型的bHLH结构域,由两个两亲性α螺旋通过一个环区连接组成(图1B)。组织特异性表达谱显示SaMYC2转录本在根、茎、叶和愈伤组织中均有较高水平,暗示其在檀香生理中具有广泛功能(图1C)。进化分析表明SaMYC2与拟南芥AtMYC2密切相关。随后我们将檀香SaMYC2基因转化至拟南芥AtMYC2基因的T-DNA插入突变体。在1/2 MS培养基上,野生型(Col)、jin1–8和35S:SaMYC2-jin1–8植株间根长无显著差异(数据未展示)。然而,当培养基中添加100 μM MeJA时,野生型(Col)拟南芥植株根长显著缩短。相比之下,突变体jin1–8的根生长未受显著抑制,表现出对MeJA不敏感的的表型。35S:SaMYC2-jin1–8转基因植株表现出对MeJA敏感的表型,其根生长受到显著抑制,长度明显缩短(图1D、E)。这表明SaMYC2能够互补AtMYC2突变体jin1–8的部分表型,进一步证实SaMYC2是AtMYC2的同源基因且可能功能相似。亚细胞定位实验确认SaMYC2-YFP融合蛋白定位于细胞核,与核标记mCherry共定位(图1F),与其预测的转录调控功能一致。
【数据】系统发育分析:28个bHLH蛋白来自26个植物物种;最近缘:AtMYC2、AtMYC3、AtMYC4;MeJA浓度:100 μM;培养基:1/2 MS;突变体:jin1–8;转基因株系:35S:SaMYC2-jin1–8;表型:野生型根长显著缩短、突变体不敏感、转基因株系敏感且根长明显缩短
3.5 SaMYC2的全基因组DAP-Seq分析
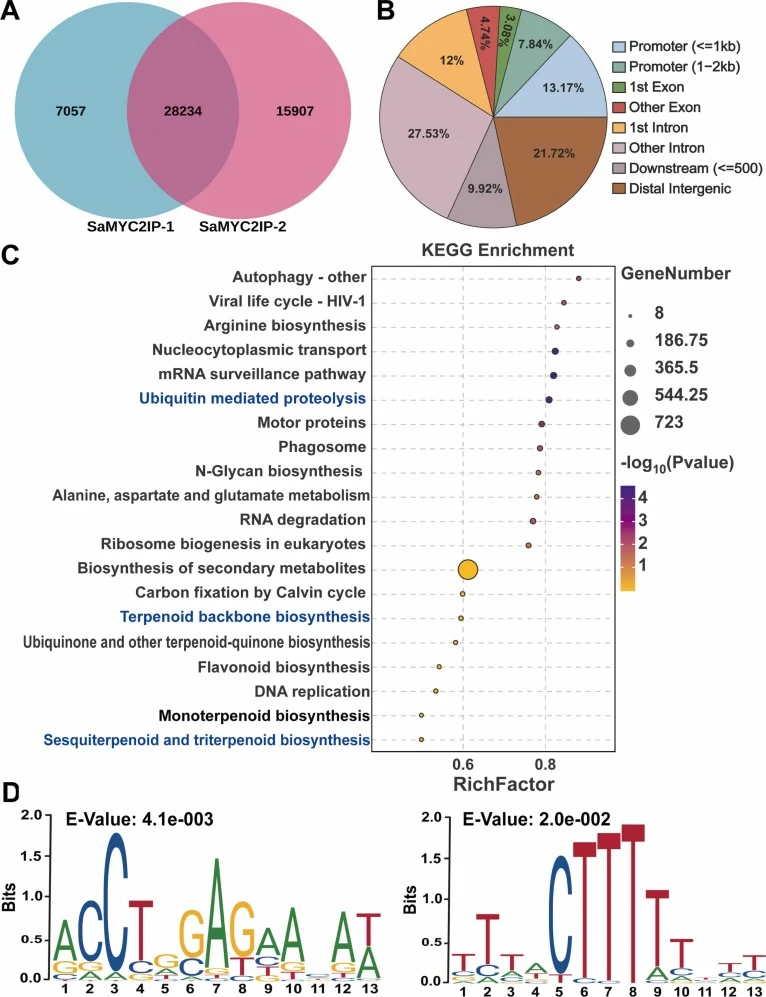
为在全基因组范围内鉴定SaMYC2在檀香中的潜在直接靶标,进行了DAP-Seq分析。该分析在重复1和重复2中分别鉴定出35,291和44,141个峰,其中28,234个重叠峰被鉴定(图2A)。峰分布分析显示21.01%的峰位于启动子区域(起始密码子ATG上游≤2 kb),3.08%位于第一外显子,4.74%位于其他外显子区域,12%位于第一内含子,27.53%位于其他内含子,21.72%位于远端基因间区(图2B)。峰相关基因的通路富集分析揭示SaMYC2调控广泛的生物学过程,包括核质运输、N-聚糖生物合成以及丙氨酸、天冬氨酸和谷氨酸代谢,尤其富集于次生代谢物生物合成如萜类骨架、泛醌和其他萜类-醌、单萜、倍半萜和三萜(图2C)。值得注意的是,SaMYC2参与泛素介导的蛋白水解,提示其可能与檀香中泛素化相关蛋白存在互作(图2C)。使用MEME套件进行的保守基序分析鉴定出两个SaMYC2结合的共有序列。主要基序为富含AC的元件(E值:4.1e-003),包含先前表征的G-box(CACGTG)及其变体如CAGGTG和CACGCG(图2D)。第二个基序鉴定为富含TC的元件,具有TCCTCC基序(图2D),表明SaMYC2与拟南芥MYC转录因子相比具有相似但不同的DNA结合特性。
【数据】重复1峰数:35,291;重复2峰数:44,141;重叠峰:28,234;峰分布:启动子21.01%、第一外显子3.08%、其他外显子4.74%、第一内含子12%、其他内含子27.53%、远端基因间区21.72%;主要基序:AC-rich元件(E值4.1e-003,含G-box CACGTG及变体CAGGTG、CACGCG);第二基序:TC-rich元件(TCCTCC)
3.6 SaMYC2直接结合SaSSy和SaCYP736A167的启动子并正向激活其表达
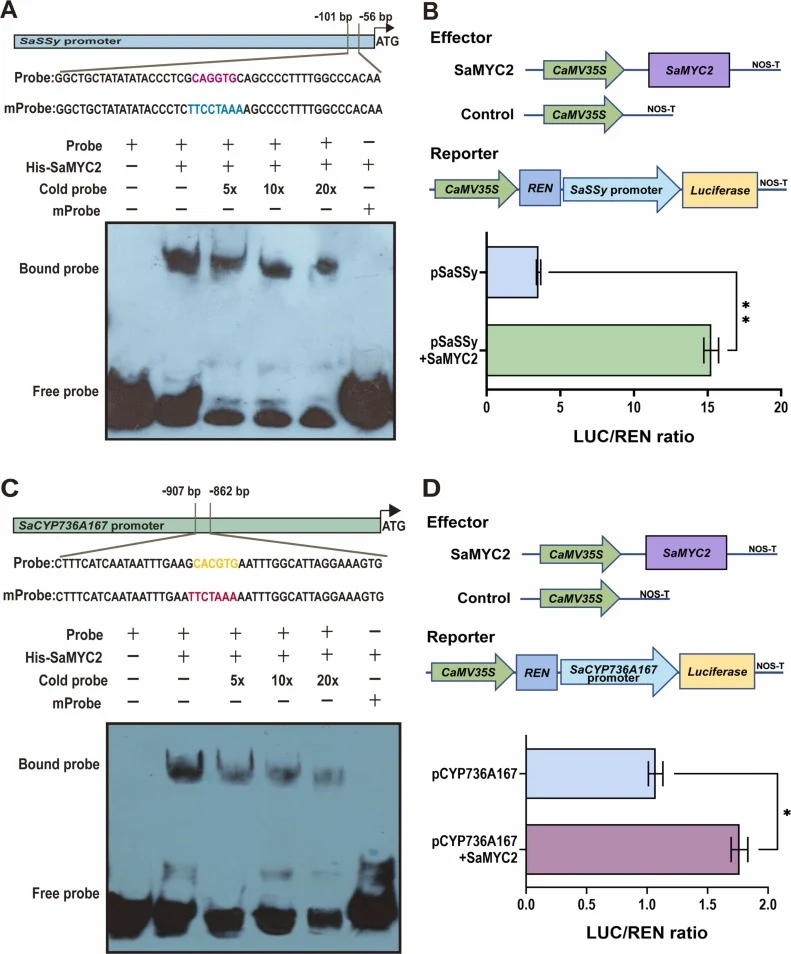
鉴于在SaCYP736A167启动子区域鉴定到一个明显的峰(图S5A),我们进一步分析了所有关键倍半萜生物合成基因的克隆启动子,包括SaCYP736A167和SaSSy。尽管在SaSSy启动子中未检测到显著峰,但两个启动子均含有SaMYC2识别顺式作用元件(CAE)或其变体。因此我们研究了SaMYC2是否直接调控SaSSy和SaCYP736A167的表达。首先,使用含CAGGTG基序的46-bp SaSSy启动子片段进行电泳迁移率变动实验(EMSA)(图3A),结果显示SaMYC2结合至含CAGGTG基序的SaSSy启动子标记片段,而对该基序的突变序列未观察到结合亲和力。与此一致,过量未标记探针(冷探针)与标记探针竞争结合SaMYC2,减弱了迁移条带(图3A),这证明了特异性……
【数据】启动子片段长度:46 bp;核心基序:CAGGTG;EMSA结果:SaMYC2结合含CAGGTG的SaSSy启动子片段、突变序列无结合、冷探针竞争减弱迁移条带
讨论与解读
MYC作为bHLH超家族转录因子的关键成员,在调控多种生物学过程中的基因重编程方面至关重要。本研究对檀香MYC家族的系统鉴定与表征,为深入理解MYC参与檀香特定生物学过程的机制提供了重要基础。共线性分析显示,檀香SaMYC与水稻仅有1对直系同源基因对,而与拟南芥有15对,表明檀香SaMYC与拟南芥AtMYC进化关系更近。初步观察还发现,与拟南芥相比,檀香中MYC家族存在谱系特异性收缩,这一变化可能与檀香的环境适应及独特代谢物生物合成相关。作为MYC家族的关键组分,MYC2作为主调控因子整合植物激素和光敏色素信号,指导全基因组转录重编程。本研究数据显示SaMYC2在根、茎、叶和愈伤组织等多种组织中高表达,DAP-seq结果也表明SaMYC2参与檀香广泛的生物学过程。
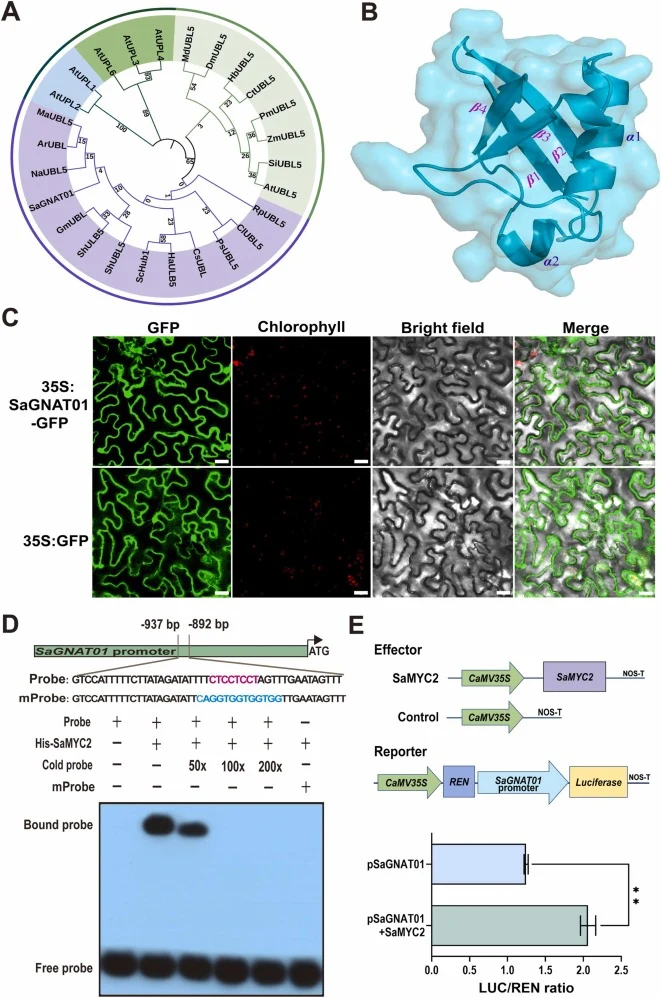
本研究最核心的发现是揭示了一条此前未知的自我调控反馈回路:SaMYC2直接结合并激活倍半萜合成关键基因SaSSy和SaCYP736A167的启动子,促进萜类生物合成;同时,SaMYC2转录激活泛素样蛋白SaGNAT01的表达,而SaGNAT01蛋白又与SaMYC2发生互作,削弱SaMYC2对靶基因启动子的转录激活活性,但不影响SaMYC2蛋白的稳定性。这种"激活-反馈抑制"机制为萜类生物合成的精细调控提供了新的分子框架。
编译者解读:该研究在合成生物学层面具有双重价值。一方面,SaMYC2作为萜类合成的正向调控枢纽,可直接用于檀香或异源宿主中萜类产量的代谢工程改造——番茄异源过表达实验已初步验证了这一策略的可行性。另一方面,SaGNAT01介导的负反馈回路揭示了一个工程化改造中常被忽视的问题:单纯过表达正向转录因子可能触发内源反馈抑制,削弱预期效果。未来在构建高产萜类底盘细胞时,可考虑同步敲除或弱化SaGNAT01类反馈因子,以解除刹车、释放SaMYC2的全部激活潜力。该研究的局限在于反馈调控的定量贡献尚未明确,SaGNAT01对萜类最终产量的影响幅度有待进一步量化。
参考来源
期刊:Industrial Crops and Products, 2026
DOI:10.1016/j.indcrop.2026.124451
DOI: 10.1016/j.indcrop.2026.124451