来源:Mangrove-derived Bacillus velezensis J69 lipopeptides control strawberry anthracnose and maintain postharvest quality(Postharvest Biology and Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
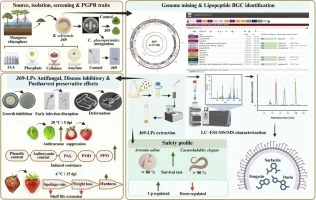
草莓采后炭疽病由胶孢炭疽菌引起,每年造成严重经济损失。红树林生境微生物因独特选择压力而备受关注,但用于采后生物防治的研究仍十分有限。本研究从深圳红树林根际土壤中分离到一株贝莱斯芽孢杆菌J69,系统评价了其脂肽在草莓炭疽病管理中的潜力。J69具有广谱抗真菌活性,其无细胞培养上清液通过抑制孢子萌发和附着胞形成,使草莓叶片炭疽病病斑面积减少75.6%。全基因组测序揭示其基因组为4.15 Mb,含13个次级代谢产物生物合成基因簇。LC-MS/MS确认了surfactin、iturin和fengycin三类脂肽的共产生,其中环状surfactin占比最高(75.73%)。粗脂肽提取物对胶孢炭疽菌菌丝生长的IC₅₀为30.46 mg L⁻¹,并能破坏孢子超微结构。果实应用试验中,炭疽病发展被抑制高达71.1%,果实品质得以保持,货架期延长至15天。生态毒理学评估显示其安全性良好。该研究为红树林来源微生物在采后病害生物防治中的应用提供了新证据。
研究背景
草莓是全球经济价值最高的水果作物之一,但其生产深受采后真菌病害损失制约。由半活体营养型炭疽菌属引起的炭疽病尤为严重——从育苗期到采后贮藏均可持续危害,导致销售和货架期内大量果实腐烂。目前合成杀菌剂仍是主要防治手段,但反复施用引发了环境污染、病原菌抗药性种群出现及潜在人类健康风险等担忧。这些局限推动了可持续病害管理策略的探索。利用自然微生物进行生物防治已成为有前景的环境友好型策略。其中,芽孢杆菌属细菌,特别是贝莱斯芽孢杆菌,因其强效抗菌活性和丰富的次级代谢产物多样性而被公认为最有效的生防菌之一。红树林生态系统具有独特的选择压力,其来源微生物可能蕴藏新型生防资源,但相关研究仍然不足。本研究从红树林根际土壤中分离到一株贝莱斯芽孢杆菌J69,旨在系统评价其基于脂肽的草莓炭疽病防控潜力,并解析其基因组基础和生防机制。
研究方法
2.1 细菌和真菌菌株及培养条件
细菌菌株分离自米埔自然保护区(东经114.05°,北纬22.49°)采集的红树林根际土壤,按照Hao等(2019)描述的方法在Marine Agar 2216(MA;BD Difco™)上维持培养。纯培养物以甘油菌种(20%,v/v)形式保存于−80 °C。采用体外拮抗实验(Fei等,2023)对总计87株分离物进行抗胶孢炭疽菌活性筛选。将抑制活性最强的分离株命名为J69,选用于后续研究。真菌病原体核盘菌、稻瘟病菌(菌株P131)、禾谷镰刀菌和链格孢菌来自实验室培养物保藏中心,在马铃薯葡萄糖琼脂(PDA;200 g L⁻¹马铃薯提取物,20 g L⁻¹葡萄糖,15 g L⁻¹琼脂)上于28 °C维持培养。
【数据】菌株来源:红树林根际土壤(米埔自然保护区,东经114.05°,北纬22.49°);培养基:Marine Agar 2216;甘油浓度:20%(v/v);保存温度:−80 °C;筛选菌株数:87株;PDA配方:200 g L⁻¹马铃薯提取物、20 g L⁻¹葡萄糖、15 g L⁻¹琼脂;真菌培养温度:28 °C
2.2 菌株J69的鉴定
菌株J69通过16S rRNA基因测序进行鉴定。使用商业试剂盒(天根生化科技,北京,中国)提取基因组DNA。使用通用引物27F(5′-AGAGTTTGATCCTGGCTCAG−3′)和1492R(5′-GGTTACCTTGTTACGACTT−3′)扩增16S rRNA基因,PCR条件如下:94 °C初始变性5 min;35个循环的94 °C 30 s、55 °C 30 s、72 °C 90 s;72 °C最终延伸10 min。扩增产物由广东美格基因生物技术有限公司(广州,中国)测序,并使用BLASTn在NCBI GenBank数据库中进行比对查询。16S rRNA基因序列已提交至GenBank,登录号为PZ234885。系统发育分析中,使用ClustalW对同源序列进行比对,在MEGA X中采用邻接法构建系统发育树,使用Kimura 2-parameter模型和1000次bootstrap重复。
【数据】PCR条件:94 °C 5 min(初始变性);35个循环(94 °C 30 s,55 °C 30 s,72 °C 90 s);72 °C 10 min(最终延伸);引物:27F和1492R;GenBank登录号:PZ234885;bootstrap重复:1000次
2.3 菌株J69的抗真菌活性实验
#### 2.3.1 体外双培养实验
采用PDA上的双培养实验评估菌株J69对一组植物病原真菌的抗真菌谱(Calvo等,2020;Chaouachi等,2021)。将每个病原体的6-mm菌丝块置于90-mm PDA平板中央。菌株J69在Lysogeny broth(LB)中于28 °C、180 rpm振荡培养72 h(将24 h种子培养物按1:100稀释至500 mL新鲜LB培养基中)。两个无菌纸片各接种10 µL的72 h培养物,对称放置于距中央菌丝块25 mm处,作为细菌接种物。对照平板接受等体积的未接种LB培养基。平板在28 °C培养5天。抗真菌活性以抑制率表示:(1)抑制率(%)= [(R₁ − R₂)/ R₁] × 100,其中R₁和R₂分别为对照和处理的平板上朝向细菌接种物的径向生长,使用ImageJ软件在四个垂直方向测量。
【数据】菌丝块直径:6 mm;平板直径:90 mm;培养温度:28 °C;振荡转速:180 rpm;培养时间:72 h;种子培养稀释比:1:100;LB体积:500 mL;纸片接种量:10 µL;纸片距中央距离:25 mm;共培养时间:5天;测量方向:4个垂直方向
#### 2.3.2 离体草莓叶片实验
按照Miller-Butler等(2018)的方法,在离体草莓叶片(Fragaria × ananassa cv. Miaoxiang No. 7)上评估离体抗真菌活性。采集完全展开的第三阶段叶片,表面消毒(70%乙醇,30 s;无菌蒸馏水冲洗),并在2 h内处理。无细胞培养上清液(CFS)由J69的72 h LB培养物通过离心(10,000 × g,10 min,4 °C)和0.22-µm膜过滤制备。胶孢炭疽菌分生孢子在燕麦番茄琼脂(OTA;每升ddH₂O含35 g燕麦、150 mL番茄汁、0.7 g CaCO₃、18 g琼脂,pH 7.0)上,于28 °C、12 h/12 h光暗循环下培养4天产生。孢子用0.05% Tween 80收获,经纱布过滤,调整至1 × 10⁶个分生孢子 mL⁻¹。每片叶上制作一个2-mm浅伤口,将20 µL分生孢子悬浮液与J69 CFS的1:1混合物施加于每个伤口部位。接种叶片在湿润培养皿中(100%相对湿度(RH),28 °C,黑暗)孵育36 h,随后在12 h/12 h光暗循环(72.2 µmol m⁻² s⁻¹)下培养3天。接种后5天(dpi)使用ImageJ测量病斑大小。每个处理使用三个生物学重复,实验重复三次。
【数据】叶片品种:Miaoxiang No. 7;表面消毒:70%乙醇30 s;离心条件:10,000 × g,10 min,4 °C;过滤膜孔径:0.22 µm;OTA配方:35 g燕麦、150 mL番茄汁、0.7 g CaCO₃、18 g琼脂/L,pH 7.0;产孢条件:28 °C,4天,12 h/12 h光暗循环;孢子浓度:1 × 10⁶ conidia mL⁻¹;Tween 80浓度:0.05%;伤口直径:2 mm;接种量:20 µL;孵育条件:100% RH,28 °C,黑暗36 h;光照强度:72.2 µmol m⁻² s⁻¹;病斑测量时间:5 dpi;生物学重复:3个;实验重复:3次
#### 2.3.3 对分生孢子萌发和附着胞形成的影响
按照Heo等(2024)描述的方法评估J69 CFS对胶孢炭疽菌早期侵染阶段发育的影响。将分生孢子(1 × 10⁶ mL⁻¹)与J69 CFS或无菌水(对照)按1:1(v/v)混合,在疏水玻璃盖玻片上于28 °C湿润腔中孵育。在接种后4、8、12和24 h(hpi)使用显微镜(Olympus BX53,日本)评估萌发和附着胞形成,每个重复计数≥100个分生孢子。若芽管长度超过分生孢子宽度,则判定为萌发。附着胞形成率以萌发分生孢子中具有分化的、黑色素化附着胞的比例表示。每个处理和每个时间点使用六个独立重复。
【数据】孢子浓度:1 × 10⁶ mL⁻¹;混合比例:1:1(v/v);孵育温度:28 °C;观察时间点:4、8、12、24 hpi;每个重复计数:≥100个分生孢子;独立重复:6个
2.4 PGP特性、生物膜形成和耐盐性表征
按照Devi等(2023)描述的方法评估菌株J69的PGP特性。铁载体产生在Chrome Azurol S(CAS)琼脂上检测(28 °C培养48 h后形成晕圈)。磷酸盐溶解在Pikovskaya琼脂上评估(5天后出现透明圈)。胞外酶活性(蛋白酶、淀粉酶和纤维素酶)分别在脱脂牛奶、淀粉和羧甲基纤维素(CMC)琼脂上评估,水解晕圈在48–72 h测量。吲哚−3−乙酸(IAA)产生采用Salkowski试剂比色法定量,在补充100 mg L⁻¹ L-色氨酸的LB培养基中培养72 h后,于530 nm测量吸光度,IAA浓度根据标准曲线(0–25 mg L⁻¹;Macklin,上海,中国)确定。生物膜形成通过96孔微孔板中静态孵育48 h后的结晶紫染色定量(OD₅₇₀)。耐盐性通过在补充0–9%(w/v)NaCl的LB培养基中监测48 h生长(OD₆₀₀)评估。所有实验均进行三次重复。
【数据】CAS琼脂培养:28 °C,48 h;Pikovskaya琼脂:5天;酶活性测量:48–72 h;L-色氨酸浓度:100 mg L⁻¹;IAA培养时间:72 h;吸光度:530 nm;IAA标准曲线范围:0–25 mg L⁻¹;生物膜孵育:48 h静态;NaCl浓度范围:0–9%(w/v);生长监测时间:48 h;重复次数:3次
2.5 全基因组测序、组装、注释和比较分析
菌株J69的完整基因组测序由广东美格基因生物技术有限公司(广州,中国)使用长读长测序技术完成,从头组装和校正通过标准平台适配流程进行。完整基因组序列已提交至NCBI数据库,登录号为JBWXXD010000000。基因组注释使用Prokka v1.14.6进行,预测的编码序列通过BLASTp对NR、Swiss-Prot、Gene Ontology(GO)、Kyoto Encyclopedia of Genes and Genomes(KEGG)和Clusters of Orthologous Groups of proteins(COG)数据库进行功能注释。其他基因组特征——前噬菌体区域、基因组岛、CRISPR-Cas阵列、毒力因子、抗生素抗性基因和CAZymes——分别使用PHASTER、IslandPath-DIOMB v1.0、CRISPRCasFinder、VFDB、CARD和dbCAN(HMMdb v13)预测。平均核苷酸一致性(ANI)使用fastANI计算(≥95%阈值用于物种界定),基因组图谱使用Circos v0.69–8可视化。
【数据】测序平台:长读长测序技术;组装软件:平台适配流程;注释软件:Prokka v1.14.6;功能数据库:NR、Swiss-Prot、GO、KEGG、COG;前噬菌体预测:PHASTER;基因组岛预测:IslandPath-DIOMB v1.0;CRISPR预测:CRISPRCasFinder;毒力因子:VFDB;抗性基因:CARD;CAZymes:dbCAN(HMMdb v13);ANI阈值:≥95%;可视化:Circos v0.69–8;NCBI登录号:JBWXXD010000000
2.6 PGP和生防相关基因簇的鉴定
#### 2.6.1 PGP基因注释
使用hmmsearch(HMMER 3.3.2)对Pfam 36.0数据库进行菌株J69预测蛋白质组的Pfam结构域注释,保留E值≤ 1 × 10⁻⁵的命中。功能相关结构域经人工审编并分组为与植物生长促进和根际竞争力相关的性状簇,包括运动性和根部定殖、磷酸盐溶解、胞外多糖和生物膜形成、非核糖体肽合成酶/聚酮合酶(NRPS/PKS)次级代谢产物生物合成以及直接生防。预测功能通过交叉参考确定。
【数据】软件:hmmsearch(HMMER 3.3.2);数据库:Pfam 36.0;E值阈值:≤ 1 × 10⁻⁵
研究结果
3.1 贝莱斯芽孢杆菌J69的分离、鉴定和抗真菌特性
对87株红树林根际细菌分离物进行抗胶孢炭疽菌初步筛选,鉴定出18株在双培养实验中具有一致径向抑制活性的候选菌株(数据未显示)。其中,分离株J69表现出最高的菌丝生长抑制和孢子萌发抑制,因此被选用于全面表征。形态上,菌株J69在MA上形成不透明、白色、黏液状菌落,表面有光泽,不产生可溶性色素(图1A)。16S rRNA基因测序显示与贝莱斯芽孢杆菌99.93%一致(GenBank登录号KX845681.1);物种归属随后通过ANI分析确认(第3.3节)。由近缘芽孢杆菌模式菌株构建的邻接法系统发育树将J69牢固地置于贝莱斯芽孢杆菌分支内,与枯草芽孢杆菌物种复合体的其他成员明显区分(图1B)。基于此多相证据,菌株J69被鉴定为贝莱斯芽孢杆菌。
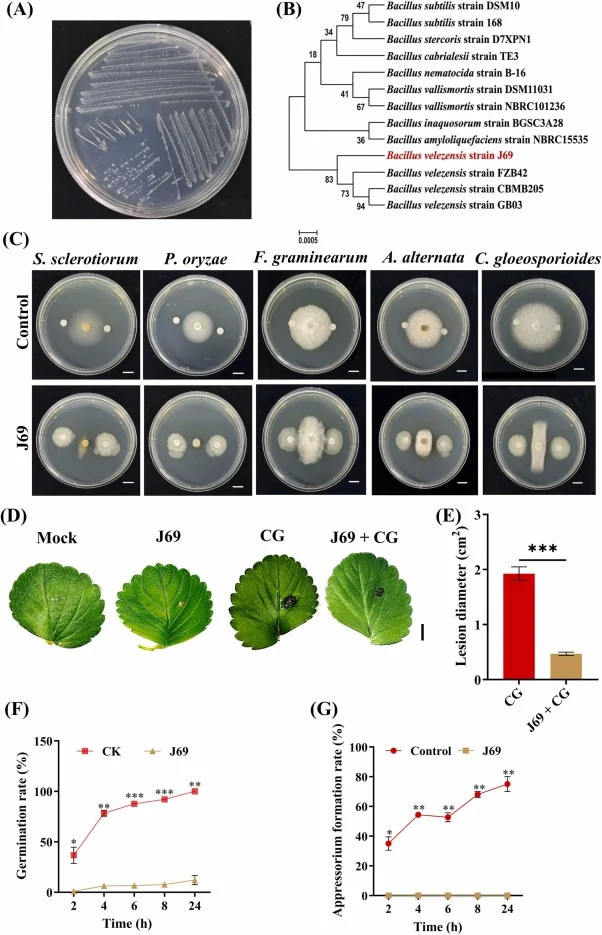
J69的CFS对多种主要植物病原真菌表现出广谱抑制活性,包括胶孢炭疽菌、核盘菌、稻瘟病菌(菌株P131)、禾谷镰刀菌和链格孢菌(图1C)。为提供体内生防效果的初步评估,将离体草莓叶片与胶孢炭疽菌分生孢子和J69 CFS共接种(J69 + CG)。孵育5天后,共接种叶片的病斑明显小于仅接种病原体的对照(图1D)。平均病斑面积从1.92 ± 0.55 cm²(CG处理)显著减少至0.47 ± 0.14 cm²(J69 + CG处理),对应病害严重度降低75.6%(图1E)。这一保护效果与其他贝莱斯芽孢杆菌菌株防控辣椒和甘薯病害的报道一致(Jiang等,2018;Yoon等,2024)。
进一步探究拮抗机制发现,J69 CFS直接干扰胶孢炭疽菌的早期侵染阶段发育。直接抑制孢子萌发和菌丝发育被认为是许多贝莱斯芽孢杆菌菌株的关键作用模式(An等,2024)。在24 hpi时,J69 CFS存在下的孢子萌发率仅为12%,而未经处理的对照为100%(图1F)。此外,附着胞形成——宿主穿透的关键步骤——在所有观察时间点被完全消除(0%),而高达75%的对照孢子成功形成附着胞(图1G)。这些抑制效果可能由J69 CFS中存在的抗菌化合物介导(Jin等,2024)。总体而言,这些结果表明贝莱斯芽孢杆菌J69是一株强效拮抗菌,通过直接抑制真菌生长和破坏关键侵染过程来限制炭疽病发展,使其成为草莓和其他作物采后生物防治的有前景候选菌株(Russi等,2024b;Yang等,2025a)。
【数据】筛选菌株数:87株;活性候选菌株:18株;16S rRNA一致性:99.93%;GenBank登录号:KX845681.1;病斑面积(CG):1.92 ± 0.55 cm²;病斑面积(J69+CG):0.47 ± 0.14 cm²;病斑减少:75.6%;24 hpi孢子萌发率(J69 CFS):12%;24 hpi孢子萌发率(对照):100%;附着胞形成率(J69 CFS):0%;附着胞形成率(对照):75%
3.2 贝莱斯芽孢杆菌J69具有PGP和耐盐特性
为评估其作为PGPR的潜力,对贝莱斯芽孢杆菌J69进行了与营养动员、植物激素产生、定殖能力和耐盐性相关的关键功能特性表征。在CAS琼脂上,J69产生明显的晕圈,表明产生铁载体,这对铁获取至关重要。该菌株还在Pikovskaya琼脂上形成透明圈,展示出强大的磷酸盐溶解活性,这是使土壤磷对植物可利用的关键性状(Farhaoui等,2023)。此外,菌株J69产生多种胞外水解酶,包括蛋白酶、淀粉酶和纤维素酶,在各自指示培养基上形成清晰的水解晕圈(图S1A)。这些酶通常与增强的营养循环相关,也可能有助于对植物病原体的拮抗活性。J69产生植物激素IAA通过Salkowski实验确认。基于标准曲线(R² = 0.995)的定量显示,培养上清液含有14.49 ± 0.72 mg L⁻¹ IAA,表明在测试条件下产生大量IAA(图S1B)。
为评估其对盐渍土壤(农田中威胁作物生产的新兴问题)的适应性,监测了J69在不同盐度条件(0–9% NaCl,w/v)下的生长。该菌株在48 h内在3–7% NaCl下表现出最佳生长,在0、0.5和9% NaCl浓度下生长减少但仍显著(最终OD₆₀₀均> 0.74,图S1C),表明其耐盐性,支持其在盐渍农业条件下的功能性。J69的定殖潜力进一步得到其形成生物膜能力的支持。使用结晶紫染色的定量评估显示,J69产生的生物膜生物量(OD₅₇₀)为0.57 ± 0.08,显著高于未接种对照(0.04 ± 0.00;图S1D),表明其具有强大的表面附着和持久性能力(Zhang等,2024a)。这些PGP指标与靶向草莓的贝莱斯芽孢杆菌菌株CE 100(Kim等,2022)和TCS001(Cao等,2024)相当,两者均结合了促生长和抗真菌生防活性。这种共存强化了红树林来源J69相对于传统农业生境菌株的双重生物肥料/生防效用。
【数据】IAA标准曲线R²:0.995;IAA产量:14.49 ± 0.72 mg L⁻¹;NaCl浓度范围:0–9%(w/v);最佳生长NaCl浓度:3–7%;48 h最终OD₆₀₀(所有盐度):> 0.74;生物膜生物量(J69):OD₅₇₀ = 0.57 ± 0.08;生物膜生物量(对照):OD₅₇₀ = 0.04 ± 0.00
3.3 贝莱斯芽孢杆菌J69的基因组特征
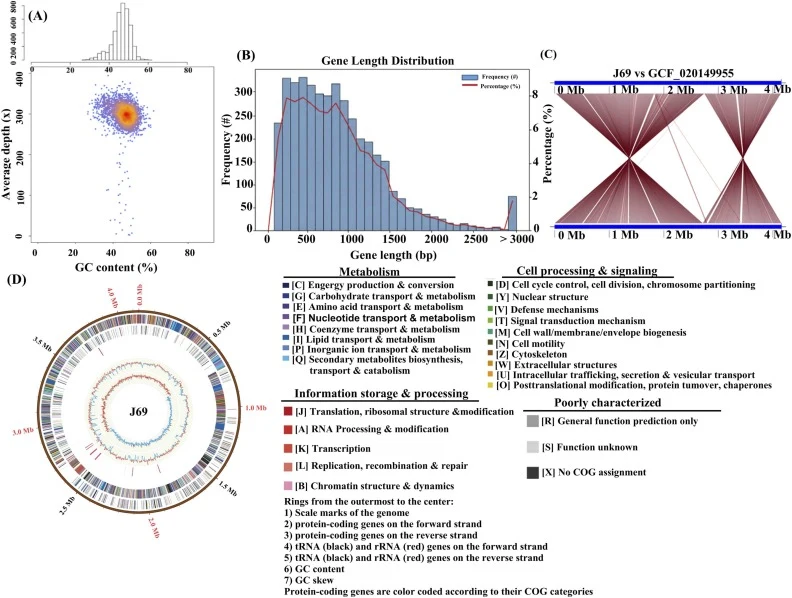
为阐明其生防潜力的遗传基础,使用第三代长读长测序技术对J69的完整基因组进行了测序和组装,平均深度达304 ×,获得高质量基因组4,154,956 bp。组装基因组由两个contig组成,N50值为4,138,087 bp,平均GC含量为46.17%。主要contig(4,138,087 bp)代表细菌染色体,较小的contig(16,869 bp)与附属质粒一致。组装的纯度通过GC含量与测序深度图中单一紧密聚集的分布确认(图2A),表明无外源污染。基因预测鉴定出4,164个蛋白质编码基因,共跨越3,719,928 bp,占基因组的89.53%,平均基因长度893.35 bp,基因密度为每kb 1.00个基因。基因长度分布呈右偏态,峰值在300至1000 bp之间,这是紧凑细菌基因组的典型模式(图2B)。非编码RNA注释鉴定出87个tRNA基因、23个sRNA基因和9个完整核糖体RNA操纵子(每个含5S、16S和23S rRNA基因)。多个rRNA操纵子的存在表明具有快速蛋白质合成和生长的能力,这是在多样环境中竞争性定殖的有利性状。分类学归属通过ANI分析确认,显示与贝莱斯芽孢杆菌模式菌株DMB06(GCF_020149955)99.47%一致。将J69基因组与参考贝莱斯芽孢杆菌基因组比较的共线性分析揭示了保守的基因组结构与局部重排(图2C)。这些特征表明一定程度的基因组可塑性,可能有助于环境适应。基因组组织的全面概览呈现在环形图中(图2D),展示了编码序列、RNA基因、GC含量和GC偏移的分布。GC偏移分析清晰地描绘了复制起点和终点。总体而言,这些基因组特征确立菌株J69为贝莱斯芽孢杆菌的代表性成员,拥有高编码密度的基因组,为其生态位内的强大适应和互作而结构化(Palazzini等,2016)。
【数据】测序深度:304 ×;基因组大小:4,154,956 bp;contig数量:2个;N50:4,138,087 bp;GC含量:46.17%;染色体大小:4,138,087 bp;质粒大小:16,869 bp;蛋白质编码基因:4,164个;编码序列总长:3,719,928 bp;编码占比:89.53%;平均基因长度:893.35 bp;基因密度:1.00 gene/kb;tRNA基因:87个;sRNA基因:23个;rRNA操纵子:9个;ANI与DMB06一致性:99.47%
3.3.1 分类学确认和比较基因组学
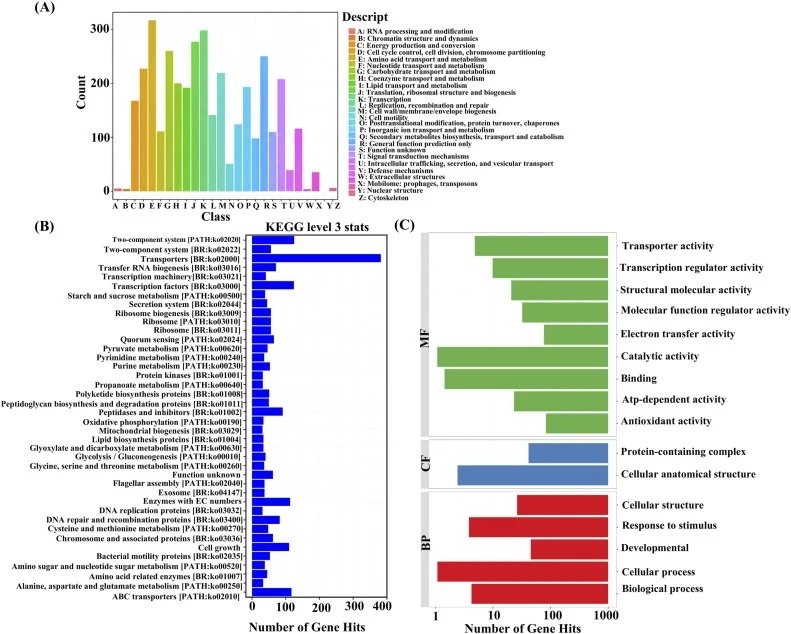
为确认菌株J69的分类地位,进行了比较基因组分析。
【数据】原文未详述
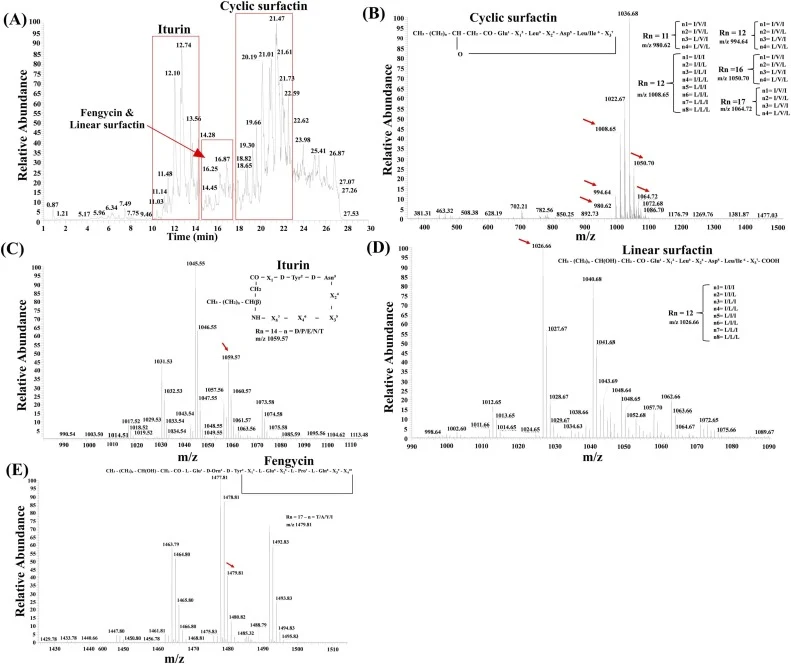
3.4 贝莱斯芽孢杆菌J69脂肽提取物的化学表征
【数据】原文未详述
3.5 粗脂肽提取物体外抗真菌活性
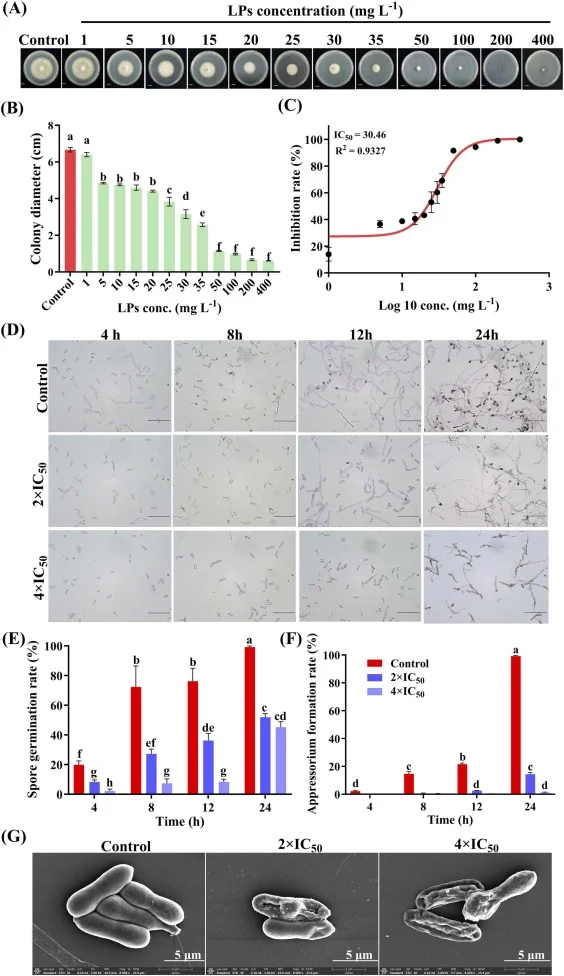
【数据】原文未详述
3.6 粗脂肽提取物体内生防效果
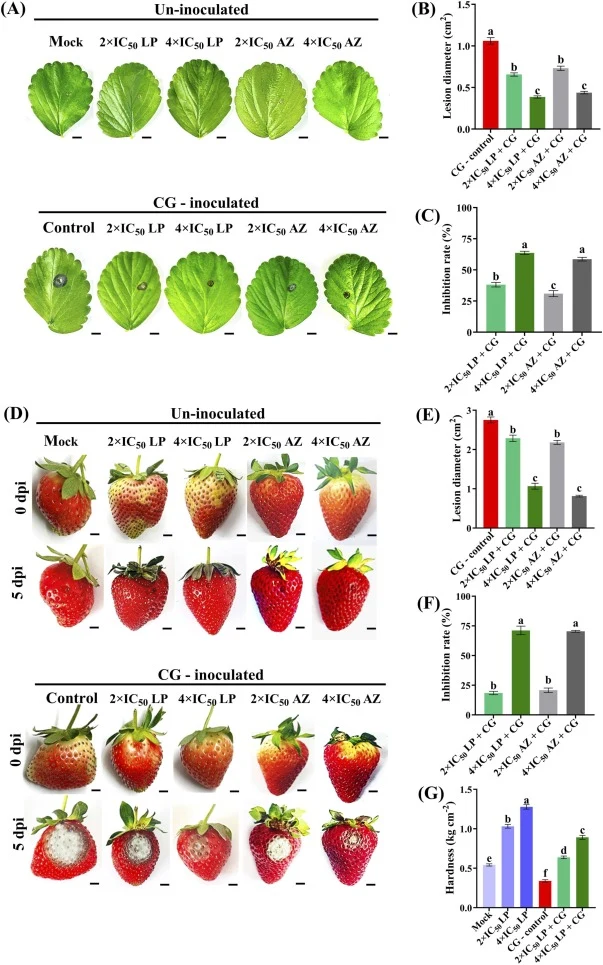
【数据】原文未详述
3.7 粗脂肽提取物对草莓果实防御相关生化参数的影响
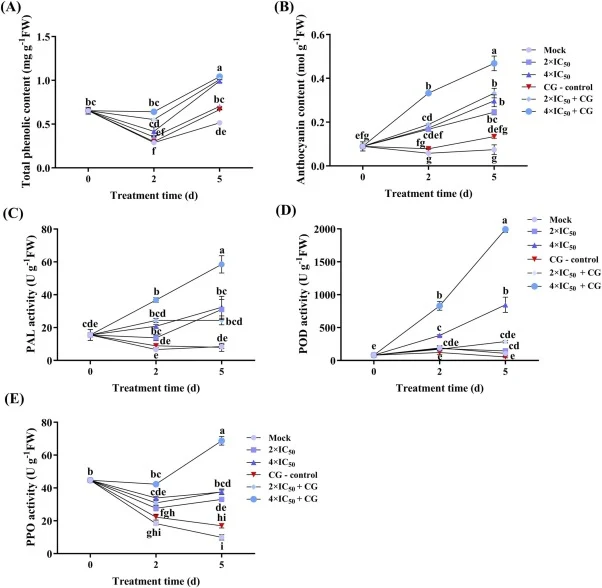
【数据】原文未详述
3.8 粗脂肽提取物对草莓果实采后品质和植物化学成分的影响
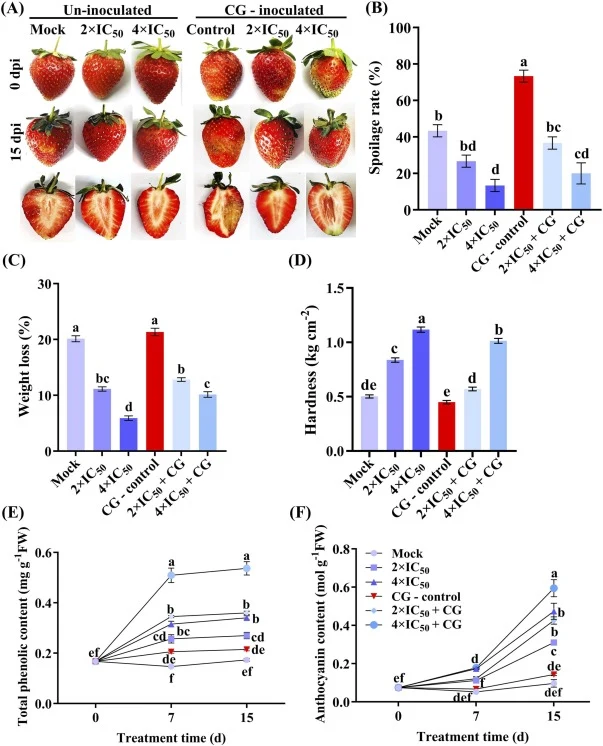
【数据】原文未详述
3.9 粗脂肽提取物的生态毒理学评估
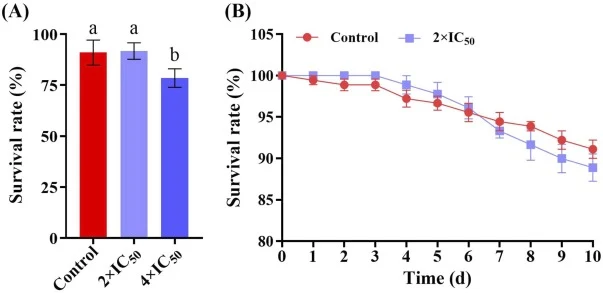
【数据】原文未详述
讨论与解读
可持续采后病害管理的迫切需求激发了人们对生态独特生境微生物作为新型生防菌来源的兴趣(Keshmirshekan等,2024)。本研究中,从竞争激烈的红树林根际分离的贝莱斯芽孢杆菌J69对主要植物病原体表现出广谱抗真菌活性,与已确立的贝莱斯芽孢杆菌菌株的生防谱一致(Chen等,2020)。除直接拮抗外,J69还拥有一系列PGP特性和耐盐性,表明其对盐渍农业土壤的适应性(Azabou等,2020;Meng等,2024;FAO,2024),但这些特性的田间验证仍需进行。基因组挖掘揭示了13个BGC,包括编码surfactin、iturin和fengycin的基因簇,这一组合与模式生防菌株FZB42共享,后者将约10%的基因组用于次级代谢产物生产(Fan等,2018)。LC-ESI-MS/MS分析确认了三类脂肽家族的共产生,这种协同组合已被充分证明具有强大的生防活性(Zhang等,2024a)。环状surfactin是J69脂肽提取物中的主要组分,iturin和fengycin构成其余部分。这一组成特征与充分表征的陆生贝莱斯芽孢杆菌菌株如FZB42和UTB96显著不同,后者的fengycin通常占总脂肽的20–40%(Vahidinasab等,2022)。
编译者解读:该研究从红树林这一未充分探索的生境中挖掘到一株兼具广谱抗真菌活性和多重PGP特性的贝莱斯芽孢杆菌J69,其脂肽提取物在离体和活体实验中均展现出显著的炭疽病防控效果,且组成特征(surfactin占优)区别于陆生菌株,暗示红树林选择压力塑造了独特的代谢谱。方法上,全基因组测序与LC-MS/MS的整合策略为次级代谢产物挖掘提供了可靠路径。局限在于:田间试验数据缺失,脂肽提取物的规模化生产成本未评估,且各脂肽组分的协同机制尚需拆解验证。总体而言,该工作为采后生物防治提供了有潜力的候选菌株和脂肽资源。
参考来源
期刊:Postharvest Biology and Technology, 2026
DOI: 10.1016/j.postharvbio.2026.114583
DOI: 10.1016/j.postharvbio.2026.114583