来源:Multi-dimensional systematic metabolic engineering and dual-pathway construction in Yarrowia lipolytica for development of a high-performance L-tyrosine platform strain(Chemical Engineering Journal)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
L-酪氨酸是众多高价值天然产物的关键前体。解脂耶氏酵母虽具有高乙酰辅酶A通量且为GRAS菌株,却受限于基因编辑效率低、L-酪氨酸产量不足及缺乏衍生物从头合成途径。本研究通过双通路优化与补料分批培养,构建了高性能L-酪氨酸平台菌株:改造两套基因编辑系统实现可靠标记回收,采用"推—拉—阻"策略结合铜响应动态调控优化天然通路,引入EhTpl介导的人工旁路,并通过ARTP诱变联合适应性实验室进化增强酚类胁迫耐受性。最终在摇瓶中产量达2319.17 mg/L,5 L补料分批生物反应器中达4681.31 mg/L。
研究背景
L-酪氨酸是一种天然芳香族氨基酸,在食品、制药和生物合成产业中应用广泛、工业价值显著——既是功能性食品和运动营养配方中的关键营养成分,也是儿茶酚胺、神经递质和甲状腺激素的重要生物合成前体。在原核生物中,大肠杆菌的L-酪氨酸产量最高,达109.2 g/L,但缺乏GRAS地位。相比之下,经GRAS认证的谷氨酸棒杆菌(34.6 g/L)和枯草芽孢杆菌(9.39 g/L)因乙酰辅酶A通量低,限制了复杂天然产物的合成。
解脂耶氏酵母是一种非常规产油酵母,因其工业鲁棒性和远高于酿酒酵母和东方伊萨酵母的乙酰辅酶A可利用性,在合成生物学领域备受关注。乙酰辅酶A是高价值次级代谢物——包括黄酮类、萜类和酚类化合物——的核心前体,可缓解传统微生物宿主中常见的 precursor 限制。此外,解脂耶氏酵母经GRAS认证,被广泛批准用于食品和农业领域,是食品级、可持续生物合成天然产物和生物基产品的首选底盘。
研究方法
2.1 菌株、质粒、培养基和培养条件
所用菌株为本实验室保藏的大肠杆菌JM109和购自ATCC的解脂耶氏酵母PO1f。大肠杆菌JM109作为基因克隆和重组质粒构建的宿主。解脂耶氏酵母的CRISPR表达载体为pCRISPRyl,整合质粒为pINA1312,均购自Addgene。供体DNA片段使用本实验室保藏的同源重组载体pUC (HR)进行组装。质粒扩增、培养、大肠杆菌热激转化,以及解脂耶氏酵母PO1f培养和补充合成完全培养基上的转化子筛选详见补充说明S2。详细的菌株改造汇总于补充表S1。常规化学品购自国药集团化学试剂有限公司(中国上海)。
【数据】菌株:大肠杆菌JM109、解脂耶氏酵母PO1f;质粒:pCRISPRyl、pINA1312、pUC (HR);培养基:补充合成完全培养基;培养条件:原文未详述
2.2 质粒构建与解脂耶氏酵母基因组编辑
质粒构建引物由GENEWIZ(中国苏州)合成。所用质粒和引物列于补充表S2和补充表S3。目标基因使用高保真DNA聚合酶(Vazyme,中国南京;2× Phanta Max Master Mix (Dye Plus))扩增,菌落PCR使用同一厂家的2× KeyPo Master Mix (Dye Plus)。扩增的PCR产物使用Vazyme DNA纯化试剂盒纯化,随后通过Hieff Clone® Plus Multi One Step Cloning Kit(Yeasen,中国上海)克隆至pET28a载体。基因来源和序列信息见补充说明S1。重组质粒使用TIANprep Pure Mini Plasmid Kit(TIANGEN,中国北京)提取,并在GENEWIZ通过Sanger测序验证。所有基因工程解脂耶氏酵母均通过醋酸锂介导转化[23]获得,基因组修饰按照既定方案使用CRISPR-Cas9系统执行[24]。单引导RNA(sgRNA)序列使用CHOPCHOP网络工具(http://chopchop.cbu.uib.no)设计,其二级结构使用RNAfold WebServer(http://rna.tbi.univie.ac.at/cgi-bin/RNAfold.cgi)预测。
【数据】试剂:2× Phanta Max Master Mix (Dye Plus)、2× KeyPo Master Mix (Dye Plus)、Hieff Clone® Plus Multi One Step Cloning Kit;载体:pET28a;方法:醋酸锂介导转化、CRISPR-Cas9系统;工具:CHOPCHOP、RNAfold WebServer
2.3 解脂耶氏酵母总RNA提取与实时定量PCR分析
使用商业试剂盒(A&A Biotechnology, Gdynia, Poland)从解脂耶氏酵母细胞中提取总RNA。反转录后,在Applied Biosystems 7500 Real-Time PCR System上使用SYBR Green I Master Mix进行实时定量PCR(qRT-PCR)。通过熔解曲线分析确认扩增特异性。基因表达水平使用2^−ΔΔCt方法[25]定量,每个样品三个技术重复。
【数据】方法:qRT-PCR;仪器:Applied Biosystems 7500 Real-Time PCR System;试剂:SYBR Green I Master Mix;定量方法:2^−ΔΔCt;重复数:3个技术重复
2.4 分批发酵
分批发酵在含30 mL YPD培养基的500 mL摇瓶中进行,28 °C、200 rpm培养168 h,通过补料分批方式供应葡萄糖至终浓度100 g/L。对于携带EhTpl旁路的菌株(Y023、Y025等),共补充苯酚和丙酮酸,并在指定时间点加入Cu2+(40 μM)以诱导P CTR1 介导的YlPyk动态下调。放大实验在5 L搅拌罐生物反应器(3 L工作体积)中进行,控制搅拌、通气、pH和温度。补料策略、生物反应器操作参数和取样方案详见补充说明S3。
【数据】培养基:YPD;体积:30 mL/500 mL摇瓶;温度:28°C;转速:200 rpm;时间:168 h;葡萄糖终浓度:100 g/L;Cu2+浓度:40 μM;生物反应器:5 L搅拌罐,3 L工作体积
2.5 通过ARTP诱变联合适应性实验室进化(ALE)定向筛选解脂耶氏酵母
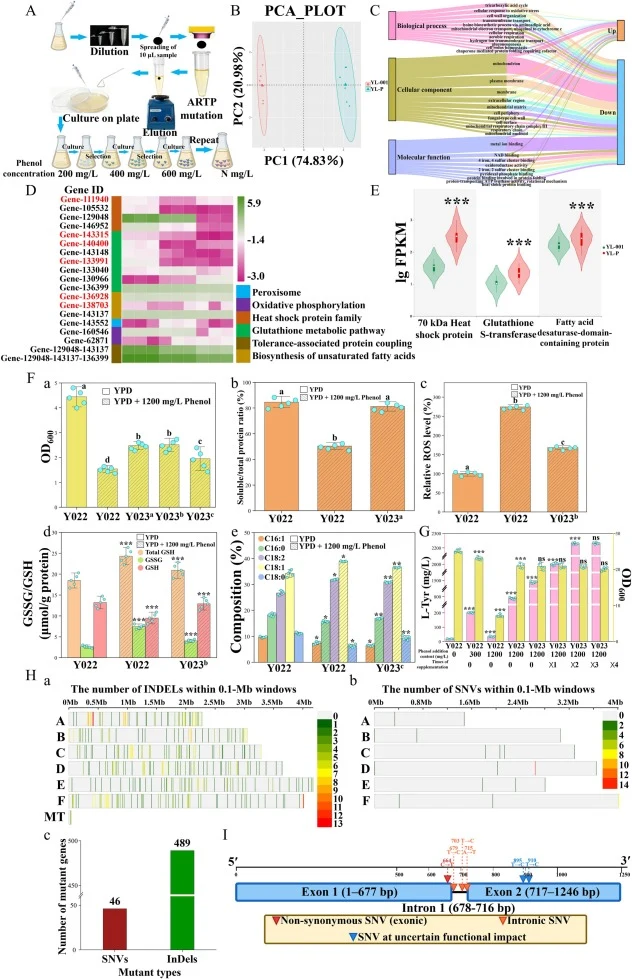
使用ARTP-M系统(TMAXTREE Biotechnology Co., Ltd., 中国无锡)对解脂耶氏酵母进行常压室温等离子体(ARTP)诱变,该系统集成了等离子体发生器、氦气源和气流控制模块。ARTP处理按先前研究所述进行[26]。将生长增强的突变菌落接种至含逐步递增苯酚浓度的YPD培养基中进行ALE,改编自Zhong等人[27]的方案,关键修改详见补充说明S4。
【数据】方法:ARTP诱变、ALE;系统:ARTP-M;气体:氦气;筛选条件:逐步递增苯酚浓度;培养基:YPD
2.6 转录组测序与生物信息学分析
评估总RNA完整性和纯度。分离Poly(A)+ mRNA,片段化,用于cDNA文库构建并在Illumina或MGI平台上测序。原始reads使用Cutadapt处理[28,29],使用HISAT2比对至参考基因组,并量化为每百万映射reads中每千碱基转录本的片段数(FPKM)[29–31]。鉴定差异表达基因(DEGs),并进行基因本体(GO)和京都基因与基因组百科全书(KEGG)通路富集分析[32,33]。
【数据】平台:Illumina或MGI;工具:Cutadapt、HISAT2;定量单位:FPKM;分析:GO、KEGG富集
2.7 全基因组测序与变异表征
为鉴定获得性苯酚耐受性背后的基因组突变,对ARTP-ALE进化菌株YL-P及其亲本菌株Y001进行全基因组重测序。基因组DNA片段化至300–350 bp,末端修复、加A尾并连接接头。双端文库(2 × 150 bp)在Illumina NovaSeq 6000平台上测序。原始reads使用fastp v0.23.0处理以去除接头序列和低质量reads[43]。清洁reads使用Sentieon软件套件v202112.02比对至解脂耶氏酵母PO1f参考基因组[44]。使用Sentieon的TNscope变异调用器调用SNVs和indels,并使用ANNOVAR (2018Apr21)注释[45]。在Y001和YL-P中均存在的变异被归类为预先存在的多态性;仅YL-P特有的变异被视为ARTP-ALE特异性变异。
【数据】菌株:YL-P、Y001;片段大小:300–350 bp;测序平台:Illumina NovaSeq 6000;读长:2 × 150 bp;软件:fastp v0.23.0、Sentieon v202112.02、ANNOVAR (2018Apr21)
2.8 代谢物提取与定量
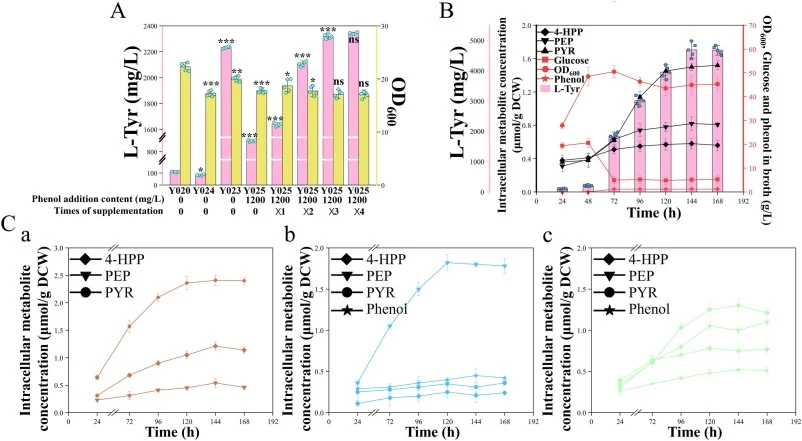
通过使用Infinite 200 Pro微板读数器(Tecan, Männedorf, Switzerland)在600 nm处测量发酵液的吸光度来确定细胞密度。葡萄糖浓度使用SBA-40E生物传感器分析仪(山东省科学院生物研究所)分析。细胞内ATP含量和氧化还原比率NADH/NAD+及NADPH/NADP+使用Beyotime市售检测试剂盒定量(ATP:货号S0026;NADH/NAD+:货号S0176;NADPH/NADP+:货号S0180S)。代谢物提取使用试剂盒特异性提取缓冲液,所有后续测量严格按制造商说明进行。细胞内4-羟基苯基丙酮酸(4-HPP)、磷酸烯醇式丙酮酸(PEP)、丙酮酸(PYR)和苯酚使用HPLC和HPLC-MS定量,色谱分离在Agilent ZORBAX SB-C18柱上进行,电喷雾电离(ESI)正离子模式。详细的碳通量分配计算见补充说明S5。目标代谢物通过HPLC使用Agilent 1260系统(Agilent Technologies, CA, USA)配备Thermo C18反相柱(4.6 × 150 mm, Thermo Fisher Scientific, MA, USA)分离和定量。L-酪氨酸和丹酚酸A的样品制备和HPLC分析分别按照Yao等人[34]和Zhou等人[35]的方案进行。L-DOPA按照Yuan等人[36]所述。咖啡酸按照Wang等人[37]的方法通过HPLC提取和分析。
【数据】检测波长:600 nm;仪器:Infinite 200 Pro、SBA-40E、Agilent 1260、ZORBAX SB-C18柱、Thermo C18柱(4.6 × 150 mm);试剂盒:ATP (S0026)、NADH/NAD+ (S0176)、NADPH/NADP+ (S0180S);离子模式:ESI正离子
2.9 解脂耶氏酵母相关生理生化参数
收集的酵母细胞被裂解。细胞内可溶性和总蛋白含量按既定方案[40]定量,并计算可溶性/总蛋白比率。细胞内还原型(GSH)和氧化型(GSSG)谷胱甘肽水平使用Beyotime GSH和GSSG检测试剂盒(Ellman法)测定,并计算GSH/GSSG比率。细胞内活性氧(ROS)水平使用Beyo3D™ ROS检测试剂盒(DCFH-DA)定量,在微板读数器上以488 nm激发和525 nm发射进行荧光检测,按照既定方案进行。
【数据】方法:Ellman法、DCFH-DA;激发波长:488 nm;发射波长:525 nm;测定指标:可溶性/总蛋白比、GSH/GSSG比、ROS水平
研究结果
3.1 解脂耶氏酵母基因编辑策略的优化与功能验证
解脂耶氏酵母是一种鲁棒的微生物底盘生物,因其固有的工业胁迫耐受性和卓越的代谢可塑性而备受重视。然而,其有限的基因编辑效率——特别是在位点特异性整合和多拷贝基因组插入方面——已成为阻碍先进代谢工程的关键瓶颈。传统的同源重组(HR)介导的位点特异性整合通常产生<20%的编辑效率,需要劳动密集的菌落PCR筛选来鉴定稀有的阳性转化子——这一过程既耗时又低通量。同时,传统的随机多拷贝整合系统往往无法提供足够的目标基因拷贝数来驱动异源通路的稳健表达[21,22]。
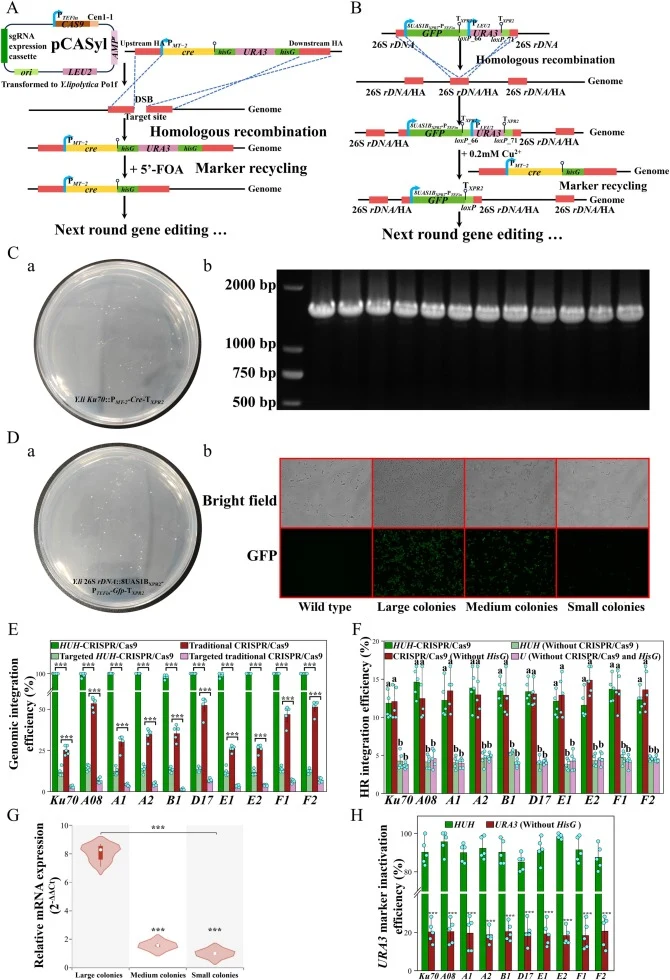
为克服基因组整合相关的低效率和劳动密集筛选问题,优化了一个基于瞬时CRISPR/Cas9的整合平台(图1A)。其增强的性能源于将短HUH基序策略性地整合到供体DNA片段中,精确位于侧翼同源臂之间(图S1A)。与常规方法——其中URA3由位于供体片段外的独立选择标记提供[48]——不同,该设计将选择标记直接整合在供体盒内,确保Ura+菌落仅来源于整个盒的真正基因组整合。关键的是,HUH盒参与两个不同的同源重组(HR)事件。过程1是Cas9介导的位点特异性整合,由Cas9在目标位点诱导的双链断裂(DSB)启动,并由侧翼同源臂引导;此处HUH盒仅作为惰性货物,不影响或调节HR反应本身(图1F)。过程2是染色体内HR介导的URA3选择标记切除——HUH盒的核心功能组件——其中侧翼URA3的两个正向重复HisG序列使得标记能够精确、内源性HR依赖性地去除,无需Cas9或gRNA(图1H)。因此,HUH盒具有双重功能:只有真正的基因组整合事件在整合后保留完整的HUH序列,使得能够通过快速PCR区分正确编辑并大幅减少假阳性(图1C, E);正向重复HisG序列随后支持高效、序列确定的标记切除——促进跨迭代基因组工程循环的可靠URA3回收(图1H)。
本系统中的靶向整合严格依赖于Cas9诱导的DSB,HUH盒的功能优势在随后的标记切除步骤中赋予。为排除Cas9/gRNA非依赖性整合,将供体质粒也在无Cas9/gRNA质粒的情况下转化到解脂耶氏酵母中;在–Ura培养基上的菌落形成可忽略不计,与缺乏HUH基序的常规供体无法区分(图1F,仅HUH和仅URA3对照组),确认观察到的靶向整合严格依赖于Cas9诱导的DSB。随后直接评估了5-FOA介导的URA3标记切除的保真度和效率。当URA3在HUH盒内被正向重复HisG序列侧翼时,5-FOA反选择产生的切除效率——定义为经菌落PCR确认发生URA3精确丢失的5-FOA抗性菌落比例——超过80%(图1H)。形成鲜明对比的是,当使用缺乏侧翼正向重复的相同URA3标记时,<30%的5-FOA抗性菌落代表真正的切除事件;大多数源于URA3的自发功能丧失突变。此类突变的URA3等位基因遗传不稳定,在后续编辑轮次中易于回复为Ura+——损害选择严格性并破坏多步工程中可靠的URA3回收。因此,HUH盒中的正向重复HisG序列将固有的随机5-FOA反选择——通常富集失活突变而非精确切除——转化为确定性、高效率、序列可预测的标记回收机制,对本研究中整个迭代基因组编辑至关重要。
为解决随机整合的低拷贝限制,利用内源性高重复26S核糖体DNA(rDNA)位点作为多拷贝插入的天然基因组"着陆垫"(图1B,图S1B)。该方法具有明显优势:由于驱动Cre表达的P MT-2 启动子具有渗漏性——即使在没有Cu2+的情况下——一些整合的Ura3拷贝在整合后被切除。这种CRE介导的渗漏切除产生内在选择压力:因此,只有达到足够高拷贝数的菌株才能产生足够的URA3活性以在选择条件下存活,从而实现内在的、拷贝数依赖的高整合克隆富集,有效提升目标基因拷贝数。由于Cre通过前一步建立的改进CRISPR-Cas9系统稳定整合到Ku70位点,随后诱导Cre表达——仅需添加0.2 mM Cu2+即可实现——介导Ura3标记的精确切除,留下单个突变的loxP位点以维持基因组稳定性。实施了"基于菌落大小的预筛选"策略:菌落直径与整合基因拷贝数强相关,允许快速、可视化地优先选择顶级候选者,大幅简化初始筛选。使用绿色荧光蛋白(GFP)作为报告基因,最大的菌落表现出最强的荧光强度(图1D),直接反映最高的GFP拷贝数。使用TEF1作为内参的RT-qPCR分析显示,相对于小(对照)菌落,目标基因在大菌落中显著上调8.57倍,在中菌落中上调1.52倍,证明菌落大小可作为目标基因表达水平的可靠表型代理(图1G)。重要的是,该系统独立于同源臂运作:仅使用P LEU2 驱动的URA3–目标基因融合即可实现高拷贝整合,极大增强了其多功能性和易用性。总之,这两个改进的工程平台为解脂耶氏酵母的精确和可扩展基因组工程建立了一个全面、协同的工具包。
【数据】编辑效率:传统HR <20%;5-FOA切除效率:>80%(含HisG正向重复)、<30%(无正向重复);Cu2+浓度:0.2 mM;GFP表达上调:大菌落8.57倍、中菌落1.52倍;内参基因:TEF1;启动子:P MT-2 、P LEU2
3.2 通过莽草酸途径的代谢工程与L-酪氨酸生物合成优化
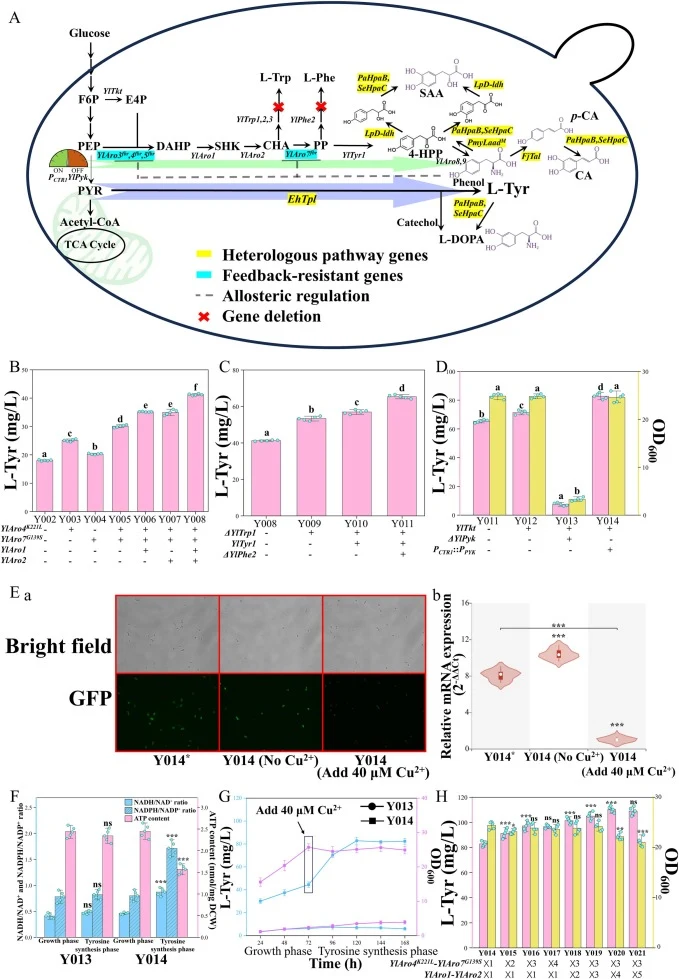
Y002作为亲本宿主,在分批发酵条件下初始L-酪氨酸滴度仅为18.05 mg/L。为增强L-酪氨酸生物合成通量,使用"推—拉—阻"代谢工程策略系统改造莽草酸途径。首先,应用推策略以缓解底物抑制并增强通过限速步骤的碳通量。先前研究已鉴定YlAro4和YlAro7为该途径的关键调控酶,均受L-酪氨酸反馈抑制。在YlAro4中引入K221L突变、在YlAro7中引入G139S突变,有效使这些酶对L-酪氨酸阻遏脱敏[38,39]。在Y002中过表达YlAro4 K221L使L-酪氨酸产量相对于对照增加1.39倍(P < 0.01),而过表达YlAro7 G139S产生1.13倍增加(P < 0.05)。两个突变的顺序整合产生Y005,其产生30.12 mg/L的L-酪氨酸——比亲本Y002高1.67倍(P < 0.01)。在Y008中进一步共过表达两个额外的限速酶YlAro1和YlAro2,使L-酪氨酸产量提升。
【数据】亲本菌株:Y002;初始滴度:18.05 mg/L;YlAro4 K221L过表达:1.39倍增加(P < 0.01);YlAro7 G139S过表达:1.13倍增加(P < 0.05);Y005产量:30.12 mg/L,比Y002高1.67倍(P < 0.01);突变位点:K221L、G139S;共过表达酶:YlAro1、YlAro2
讨论与解读
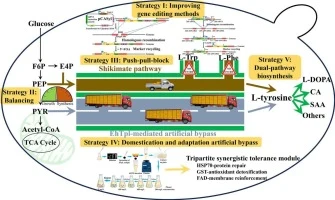
本研究通过改进基因组编辑、代谢工程和适应性耐受进化,在解脂耶氏酵母中开发了高产L-酪氨酸平台菌株——实现高价值芳香族天然产物的可持续生物合成。改造了两套编辑系统:HUH-CRISPR/Cas9位点特异性整合系统,通过PCR鉴定真正整合子消除假阳性(>90%的Ura+菌落为真正整合子),结合5-FOA介导的标记切除(>80%效率);以及P LEU2 /CRE-loxP随机多拷贝整合系统,利用P MT-2 驱动的渗漏CRE表达实现无反向选择压力的筛选。两套系统共同构成了适用于解脂耶氏酵母的鲁棒迭代基因组工程工具包。应用推—拉—阻策略——结合铜响应P CTR1 驱动的YlPyk动态调控——优化了天然莽草酸途径的通量,同时维持平衡的细胞生长和PEP可利用性。关键的是,首次在解脂耶氏酵母中引入了EhTpl介导的人工旁路,规避了天然芳香族氨基酸反馈抑制。为克服苯酚毒性这一关键瓶颈,采用ARTP诱变后接ALE,揭示了一个先前未表征的三方耐受模块(HSP70–GST–FAD)。该模块为工程化微生物对酚类化合物的耐受性提供了广泛适用的框架。
编译者解读
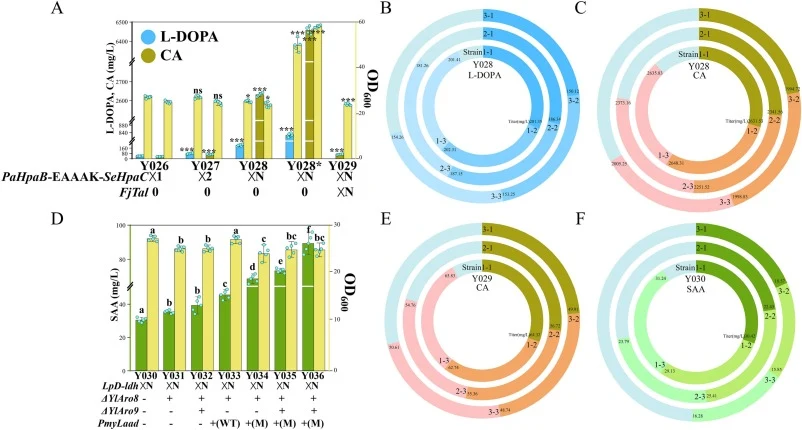
该研究的方法论价值在于将基因编辑工具优化与代谢通路工程深度耦合:HUH盒设计巧妙利用双重HR事件同时解决整合假阳性和标记回收两大痛点,而rDNA着陆垫结合渗漏CRE的"自选择"策略则绕开了传统高拷贝筛选的瓶颈。双通路策略中EhTpl旁路的引入是核心创新——它绕开了酪氨酸对自身通路的反馈抑制,使碳流不再受终产物浓度制约。三方耐受模块HSP70–GST–FAD的发现为酚类胁迫下的细胞工厂设计提供了可移植的模块化元件。局限在于:摇瓶与生物反应器产量差距(2319 vs 4681 mg/L)提示放大过程中传质与胁迫梯度仍是瓶颈;衍生物产量(L-DOPA 825.57 mg/L、咖啡酸64.23 mg/L、丹酚酸A 89.32 mg/L)距工业化仍有数量级差距,下游途径通量优化将是下一阶段重点。
参考来源
期刊:Chemical Engineering Journal, 2026
DOI: 10.1016/j.cej.2026.182438
DOI: 10.1016/j.cej.2026.182438