来源:Alginate-based biofilm-assisted encapsulation of a Co-culture of Bifidobacterium longum DSM20219 and Bacillus subtilis SOM8 enhances resistance to gastrointestinal stress(International Journal of Biological Macromolecules)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
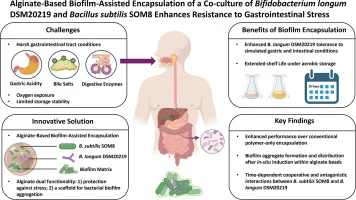
口服益生菌要过胃酸、胆盐、消化酶三道关,还要扛住有氧储存期的氧化胁迫。本研究用海藻酸钠水凝胶为骨架,让能产生物膜的枯草芽孢杆菌SOM8与厌氧的长双歧杆菌DSM20219原位共培养,构建了生物膜辅助共包封体系。结果很直接:模拟胃液和肠液中长双歧杆菌存活维持在7-log CFU/g以上,比纯海藻酸钠包封提升约3个数量级;4 °C有氧储存28天后仍保持6-log CFU/g以上。
研究背景
益生菌是摄入足够量后能给宿主带来健康益处的活微生物。作为菌群管理工具,它们已被广泛用于调节免疫、调控代谢、修复肠道屏障、缓解全身炎症以及抗生素后恢复。全球益生菌需求持续扩张,2026至2033年复合年增长率预计为12.8%。但加工、储存和递送过程中的温度波动、氧气、消化酶、胆盐和胃酸会大幅削弱菌体存活。
包封被认为是提升益生菌存活率和货架期的有效策略,兼具口服递送中的胃保护作用。传统做法以海藻酸钠、壳聚糖、果胶等碳水化合物类聚合物为壁材,配合喷雾干燥、冷冻干燥和挤出等技术。这些方法能提供部分保护,但被动包埋无法完全阻止胁迫因子渗入水合网络,对高度敏感的厌氧菌保护有限。海藻酸钠虽温和、细胞相容性好,但其多孔水合结构恰恰是胃酸、胆盐和氧气的通道。本研究由此切入:能否让包封体系里的细菌自己“造墙”,用原位生物膜弥补聚合物网络的先天不足。
研究方法
2.1 材料
本研究所用食品级海藻酸钠(SA)作为原位生物膜辅助包封的水凝胶载体支架,购自Sigma-Aldrich(美国;货号W201502)。该海藻酸钠为市售产品,供应商报告的粘度为5.0–40.0 cP(1% w/v,25 °C),标称分子量范围为12–40 kDa,甘露糖醛酸与古洛糖醛酸(M/G)比为1.56。本研究所用枯草芽孢杆菌SOM8菌株最初从芝麻油粕中分离,其益生菌潜力的表征已在我们此前的研究中报道。全基因组测序数据和组装contig已存入NCBI GenBank,BioProject ID为PRJNA1009692(登录号JAVICJ000000000)。相应的原始FASTQ文件可在同一登录号下的NCBI Sequence Read Archive中获取。长双歧杆菌DSM20219为分离自成人肠道的特征明确的模式菌株,获自德国莱布尼茨研究所DSMZ,由新加坡环境生命科学工程中心的同事分享。De Man-Rogosa-Sharpe(MRS)肉汤、Lennox(LB)肉汤、胰蛋白酶大豆(TS)肉汤、磷酸盐缓冲盐水(PBS,pH 7.4)、AnaeroJar™ 2.5 L、AnaeroGen™ 2.5 L产气袋、PureLink™ Quick质粒小提试剂盒、PureLink™ Quick凝胶回收试剂盒、Qubit蛋白检测试剂盒和Qubit dsDNA检测试剂盒均购自Thermo Fisher Scientific(美国)。限制性内切酶KpnI和BsaI购自New England Biolabs(美国)。Bacto琼脂购自BD(美国)。用于长双歧杆菌DSM20219且不受枯草芽孢杆菌SOM8干扰的选择性MRS琼脂,通过在普通MRS肉汤中添加0.2%(w/v)氯化锂和0.3%(w/v)丙酸钠制备。本研究所用其他所有化学品包括总碳水化合物检测试剂盒均购自Sigma Aldrich(美国)。所有培养基、化学品和器具在使用前均经121 °C、15 psi、15 min高压灭菌。
【数据】海藻酸钠粘度:5.0–40.0 cP(1% w/v,25 °C);分子量:12–40 kDa;M/G比:1.56;氯化锂:0.2% (w/v);丙酸钠:0.3% (w/v);灭菌条件:121 °C、15 psi、15 min
2.2 方法
#### 2.2.1 样品制备与包封
枯草芽孢杆菌SOM8和长双歧杆菌DSM20219的甘油保种培养物分别通过划线接种于LB和TS琼脂平板复苏,培养24 h以活化细胞。枯草芽孢杆菌SOM8的接种物通过将单菌落转接至LB肉汤中、好氧条件下200 rpm培养24 h制备。长双歧杆菌DSM20219培养物通过将单菌落接种至TS肉汤中、在AnaeroJar™ 2.5 L中厌氧静置培养24 h制备。24 h培养后的时期定义为第1天。第1天,将枯草芽孢杆菌SOM8和长双歧杆菌DSM20219的细胞悬液均调整至约10⁸–10⁹ CFU/mL于15 mL海藻酸钠载体溶液中,以确保包封及后续挑战试验有足够的起始浓度。海藻酸钠载体溶液通过将不同细菌组悬浮于溶解在去离子(DI)水中的灭菌2%或3%(w/v)SA中制备。0.1 M CaCl₂溶液作为交联介质,0.05 M柠檬酸钠用于溶解Ca²⁺交联的海藻酸钠微珠以进行细菌活力计数。实验分组汇总于表1,基于挤出的包封过程概述如下。
初始24 h培养(第1天)后,分配至无额外培养步骤条件的培养物在4 °C下以8,000 ×g离心10 min。去除上清液,替换为新鲜肉汤,再培养24 h(第2天)。对于包封前需洗涤步骤的组,培养物在相同条件下离心,弃去上清液,细胞用无菌PBS洗涤一次。长双歧杆菌DSM20219单独包封(G4)或与枯草芽孢杆菌SOM8联合包封(G5、G6)。洗涤后的细胞沉淀与15 mL SA溶液混合,获得均匀的SA–细胞悬液。挤出前,每个细菌培养物标准化至至少10⁸ CFU/mL,以确保后续模拟胃液(SGF)和模拟肠液(SIF)试验有足够的初始细胞数,这些试验需要足够的基线活力来量化存活率。随后将SA–细胞悬液使用连接至Legato 270注射泵(KD Scientific,美国)的23 G针头以1 mL/min的速率挤出至0.1 M CaCl₂溶液中,比例为1:4(例如,15 mL悬液加入60 mL CaCl₂中)。形成的微珠在CaCl₂中保持额外15 min以完成内部凝胶化,随后用DI水洗涤以去除过量Ca²⁺,因其可能对细菌活力产生不利影响。包封微珠随后转移至新鲜MRS肉汤中再培养24 h(第2天)。对于无此额外培养步骤的组(G1–G3),挤出在第2天按照相同程序进行,只是微珠不进行挤出后培养。所有实验组随后进行SGF和SIF挑战试验(第2天)。
【数据】离心条件:8,000 ×g、10 min、4 °C;SA浓度:2%或3% (w/v);CaCl₂浓度:0.1 M;柠檬酸钠浓度:0.05 M;挤出针头:23 G;挤出速率:1 mL/min;悬液与CaCl₂比例:1:4;凝胶化时间:15 min;细胞浓度:10⁸–10⁹ CFU/mL
#### 2.2.2 SGF和SIF挑战试验
益生菌递送的关键标准是对人体胃肠道恶劣条件(包括胃酸、胆盐和消化酶)的耐受性,使微生物能到达靶部位定植并发挥有益功能。SGF通过溶解0.2 M NaCl和2000 U/mL猪胃蛋白酶制备,用HCl调节pH至2。SIF通过将PBS与0.3%(w/v)牛胆盐和0.1%(w/v)胰酶组合制备。对于游离长双歧杆菌,初始细胞浓度通过以下方式确定:培养物在4 °C下以8,000 ×g离心10 min,弃去上清液,将细胞沉淀重悬于10 mL PBS中。取200 μL所得均匀悬液在96孔板中系列稀释,通过滴板法接种于选择性MRS琼脂平板厌氧计数菌落形成单位(CFU)。挑战试验通过将24 h培养的细胞沉淀重悬于10 mL SGF中2 h、10 mL SIF中2 h,或先在SGF中2 h后用0.9%(w/v)NaCl溶液冲洗再在SIF中额外孵育2 h进行,均在厌氧条件下200 rpm振荡,从而模拟人体胃肠道转运。处理后,细胞通过离心收集,用PBS洗涤两次以去除残留SGF或SIF,重悬于10 mL PBS中,使用与上述相同的程序进行CFU测定。对于顺序处理,通过离心去除SGF并替换为SIF。
对于湿挤出包封微珠(G1–G6),将预定重量(通常3–5 g,建议以最小化异质性)的微珠以0.5 g每1 mL胃肠液的比例浸入SGF或SIF中,在厌氧条件下200 rpm振荡孵育。此浓度参照此前关于乳酸杆菌包封微珠在模拟胃肠道条件下性能的研究,确保处理过程中所有微珠完全浸没。孵育后,使用不锈钢细网筛(Shein,新加坡)去除SGF或SIF,微珠用DI水洗涤以消除残留培养基。对于顺序实验,微珠首先暴露于SGF,然后用DI水冲洗一次,随后浸入等体积SIF中处理。处理后,微珠溶解于0.05 M柠檬酸钠中,最终体积调整至10 mL以确保完全溶解和细菌释放。取200 μL所得均匀悬液在96孔板中系列稀释,通过滴板法接种于选择性MRS琼脂平板计数存活的长双歧杆菌DSM20219。从溶解的10 mL微珠悬液中,CFU计数表示为CFU/mL;总CFU和CFU/g随后通过将总CFU归一化至用于SGF和SIF处理的初始微珠重量计算。
【数据】SGF:0.2 M NaCl、2000 U/mL猪胃蛋白酶、pH 2;SIF:PBS + 0.3% (w/v)牛胆盐 + 0.1% (w/v)胰酶;SGF处理时间:2 h;SIF处理时间:2 h;顺序处理:SGF 2 h + SIF 2 h;振荡速率:200 rpm;微珠与胃肠液比例:0.5 g/mL;微珠重量:3–5 g;溶解液:0.05 M柠檬酸钠;最终体积:10 mL
研究结果
3.1 枯草芽孢杆菌SOM8生物膜基质的诱导
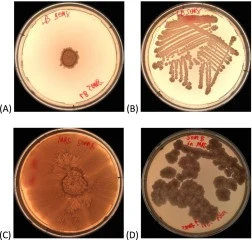
枯草芽孢杆菌SOM8的生物膜基质生产取决于培养条件的选择,该条件需能在不负面影响共培养微生物长双歧杆菌DSM20219生长的前提下诱导SOM8菌株的生物膜形成。为此,将枯草芽孢杆菌SOM8甘油保种划线,并将10 μL过夜培养物点种到LB和MRS琼脂平板上。如图1所示,枯草芽孢杆菌SOM8根据培养基表现出不同的生长特征。在LB琼脂上,菌落保持相对紧凑,扩散有限,而在MRS琼脂上生长导致明显更大的、皱褶状菌落,生物膜形成增强且具有明显的扩散形态。
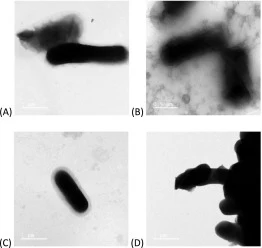
为进一步表征生物膜基质形成,进行了TEM,结果如图2所示。在MRS培养基中培养的枯草芽孢杆菌SOM8在戊二醛固定后可见细胞周围有丰富的胞外生物膜基质。相比之下,在LB培养基中生长的细胞表面相对光滑,基质沉积极少,表明生物膜产量降低。枯草芽孢杆菌SOM8在MRS培养基中生物膜产量增强可归因于基质基因tapA和eps操纵子的激活,其基因产物构成枯草芽孢杆菌胞外基质的主要成分。与此一致,此前一项研究证明,向LB肉汤中添加MRS培养基比例从1:5增至5:1会导致tapA表达显著上调,eps操纵子表达中度增加。
【数据】点种体积:10 μL;孵育时间:24 h;LB琼脂:菌落紧凑、扩散有限;MRS琼脂:菌落更大、皱褶状、生物膜增强;MRS中:胞外基质丰富;LB中:表面光滑、基质极少;MRS:LB比例:1:5至5:1时tapA显著上调
3.2 不同配方中长双歧杆菌DSM20219在SGF和SIF条件下的存活率
游离细胞和挤出微珠配方中长双歧杆菌DSM20219的初始浓度见补充图S1。所有配方均接受SGF和SIF挑战试验2 h。结果如图3所示,长双歧杆菌DSM20219对SGF和SIF高度敏感,即游离细胞在SGF中2 h后存活率下降超过5个对数级,在SIF中下降超过4个对数级,均无法检测到。这种损失推测归因于SGF中强酸性环境和消化酶胃蛋白酶的综合效应。在SIF中,胰酶和胆盐的存在也可能对细胞活力施加严重胁迫。双歧杆菌属的类似下降此前已有报道。例如,游离长双歧杆菌在SGF中下降约5.58个对数级,游离两歧双歧杆菌在SIF条件下4 h存活率损失约7个对数级。
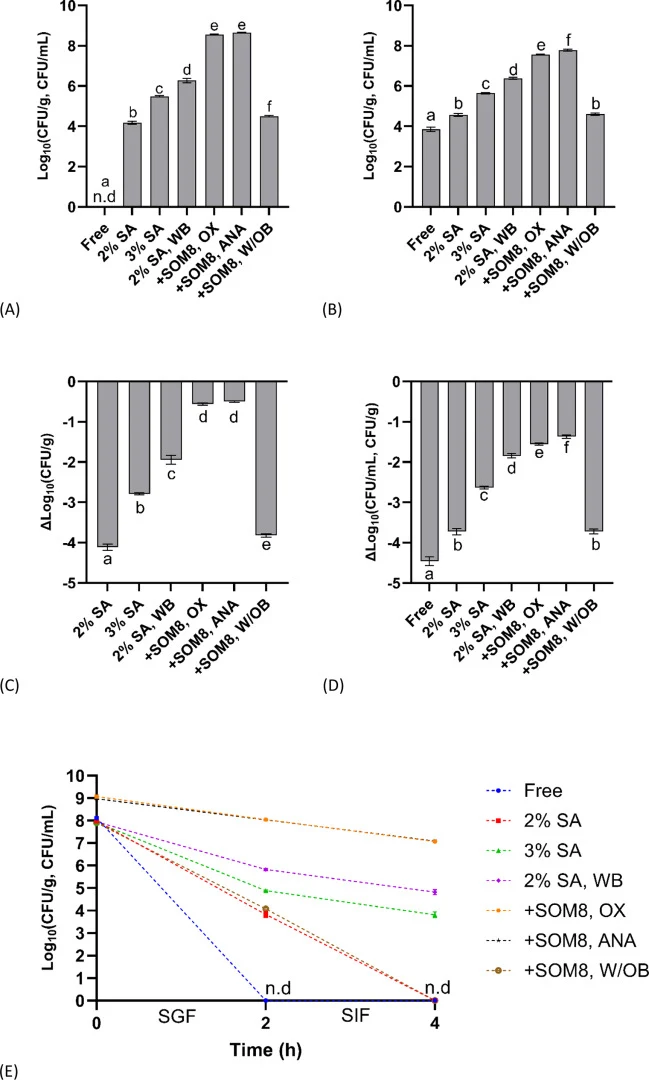
仅海藻酸钠包封对长双歧杆菌DSM20219抵抗胃肠道胁迫提供了部分保护。2%(w/v)SA包封将SGF和SIF中的存活率损失均降至约4个对数级,而3%(w/v)SA提供增强保护,将SGF中损失限制在约3个对数级,SIF中约2.5个对数级。然而,两种仅海藻酸钠配方在SGF暴露后长双歧杆菌DSM20219的最终存活计数均低于10⁶ CFU/g。该水平不足以实际应用,因为有效的益生菌定植和健康益处通常需要在到达靶部位前达到10⁶–10⁷ CFU/g的存活阈值。对于含枯草芽孢杆菌SOM8但未经原位共培养的组(+SOM8, W/OB),观察到与2%(w/v)SA单独包封相似的趋势,SGF和SIF中存活率下降均约4个对数级。该发现表明,与另一种细菌的简单物理混合,而未启动生物膜介导的保护机制,不足以保护长双歧杆菌DSM20219免受恶劣消化条件的影响。
在生物膜诱导组中,无论是长双歧杆菌DSM20219经历从浮游态到生物膜态的自身转变,还是与枯草芽孢杆菌SOM8共培养以利用其生物膜生产,SGF和SIF中的存活率均较非生物膜组显著改善。所有生物膜诱导组在SGF和SIF暴露后存活计数均维持在10⁶ CFU/g以上。值得注意的是,与枯草芽孢杆菌SOM8共培养加生物膜诱导提供了最大保护,长双歧杆菌DSM20219在SGF中达到超过10⁸ CFU/g,下降不到1个对数级,在SIF中超过10⁷ CFU/g,优于所有其他组。这些结果强调了主动生物膜形成在保护细菌抵抗胃肠道胁迫中的关键作用。除了作为物理保护层,枯草芽孢杆菌SOM8产生的生物膜可能通过其分泌的代谢物贡献额外益处,支持长双歧杆菌DSM20219的生长和韧性。类似的优势已在生物膜辅助包封策略中报道,该策略促进浮游细胞向生物膜相关状态转变,增强对恶劣条件的耐受性。虽然此前大多数研究聚焦于乳酸杆菌属如已建立的益生菌LGG,我们的工作通过开发共培养系统推进了这一概念,其中产生物膜的枯草芽孢杆菌SOM8增强敏感益生菌在胃肠道转运中的存活,从而实现更稳健的应用潜力。
为进一步模拟人体消化条件,所有配方依次暴露于SGF和SIF各2 h。如图3E所示,与枯草芽孢杆菌SOM8共培养结合生物膜诱导使长双歧杆菌DSM20219存活率维持在约7-log CFU/g。相比之下,自诱导生物膜组维持在约5-log CFU/g,而3%(w/v)SA单独包封达到约4-log CFU/g。与枯草芽孢杆菌SOM8共培养加生物膜诱导明显优于所有其他组,突显其在实际应用中的优越潜力,以及确保足够的长双歧杆菌DSM20219存活以定植靶部位并赋予健康益处的能力。
【数据】游离细胞SGF下降:>5 log;游离细胞SIF下降:>4 log;2% SA:SGF/SIF均降约4 log;3% SA:SGF降约3 log、SIF降约2.5 log;仅SA组SGF后:<10⁶ CFU/g;+SOM8 W/OB:SGF/SIF均降约4 log;生物膜诱导组:SGF/SIF后>10⁶ CFU/g;共培养+生物膜:SGF >10⁸ CFU/g(降<1 log)、SIF >10⁷ CFU/g;顺序SGF+SIF:共培养+生物膜约7 log CFU/g、自诱导约5 log CFU/g、3% SA约4 log CFU/g;文献对照:游离长双歧杆菌SGF降约5.58 log、游离两歧双歧杆菌SIF 4h降约7 log
3.3 长双歧杆菌DSM20219在四周有氧储存期间的存活率
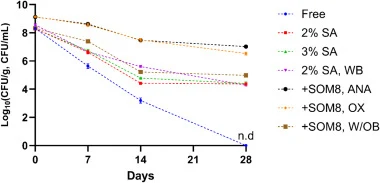
储存期货架寿命仍是益生菌应用的主要挑战,特别是对氧气敏感菌株如双歧杆菌属。长双歧杆菌DSM20219在不同配方中于4 °C有氧储存四周的存活情况如图4所示。未包封细胞表现出快速活力损失,从第0天约8-log CFU/g降至一周后6-log CFU/g,到第14天进一步降至3-log CFU/g,该水平不足以有效定植和发挥益生菌功能。到第28天,细胞通过滴板法或涂布法均无法检测到。仅SA包封、无共培养或生物膜诱导,稳定性略有改善,证实聚合物包封在延缓氧气诱导失活中的作用。然而,四周后存活率仍仅为4-log CFU/g,远低于实际应用所需水平。长双歧杆菌DSM20219自诱导生物膜辅助包封初期维持存活率在6 log CFU/g,但推测的氧气胁迫仍导致第4周下降至4-log CFU/g。相比之下,与枯草芽孢杆菌SOM8共培养而无生物膜诱导将稳定性改善至5-log CFU/g,可能归因于氧气消耗和种间相互作用。然而,该下降超过可接受阈值,且在胃肠道挑战试验中表现不佳。相比之下,与枯草芽孢杆菌SOM8共培养结合生物膜辅助包封实现了最高稳定性,长双歧杆菌DSM20219浓度在四周后维持在10⁷ CFU/g以上。值得注意的是,厌氧条件下的生物膜诱导提供了最大保护,与枯草芽孢杆菌SOM8在维持功能方面的作用一致。
【数据】未包封:Day 0约8 log、1周6 log、Day 14 3 log、Day 28不可检测;仅SA:4周后4 log CFU/g;自诱导生物膜:初始6 log、第4周4 log CFU/g;共培养无生物膜:5 log CFU/g;共培养+生物膜:4周后>10⁷ CFU/g;储存条件:4 °C、有氧、28天
3.4 微珠形态与生物膜空间分布
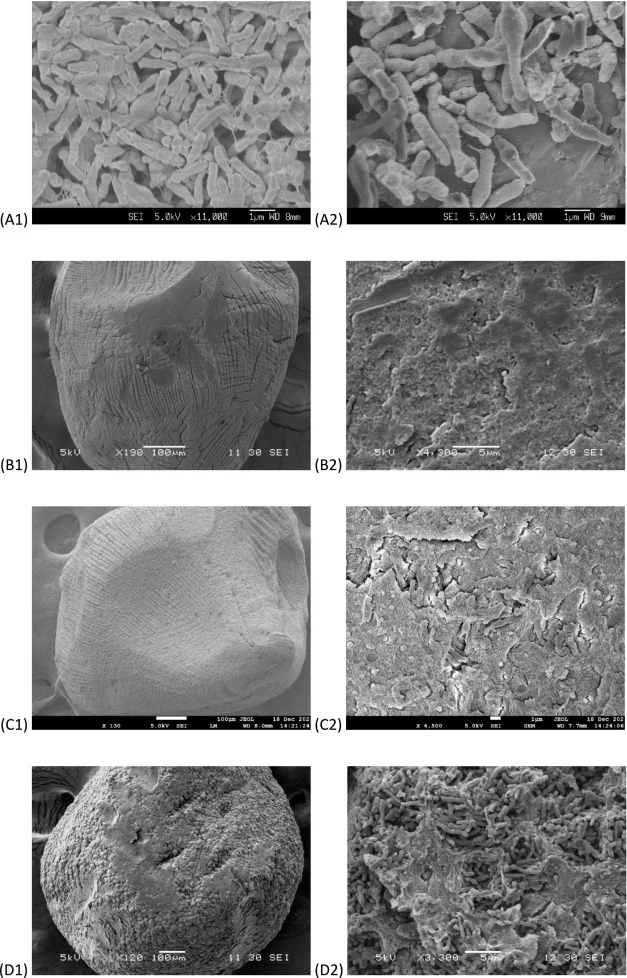
为进一步解析生物膜辅助包封的物理结构基础,采用FE-SEM和SEM对游离细胞沉淀及不同配方的挤出海藻酸钠微珠进行了表征。图5显示了微珠表面和横截面的代表性图像。无生物膜诱导的微珠(G1,2% w/v SA为代表)呈现典型的海藻酸钠水凝胶表面形态。
Imaris 3D成像展示了GFP标记的SOM8在微珠内的分布及不同条件下生物膜体积。图6A显示G7(GFP-SOM8,无生物膜诱导)中GFP-SOM8分布较为均匀;图6B显示G8(GFP-SOM8,好氧生物膜诱导)中形成明显的生物膜聚集体;图6C显示G9(GFP-SOM8,厌氧生物膜诱导)中生物膜分布最为密集。
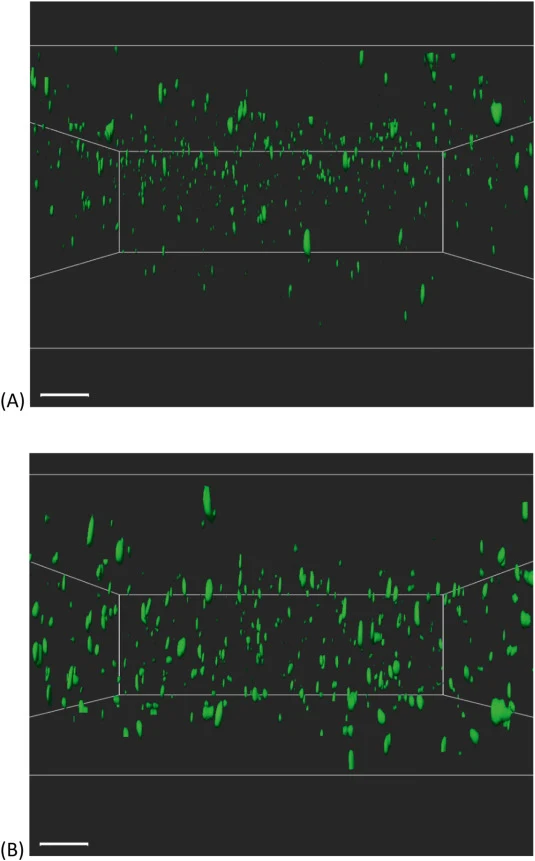
【数据】微珠配方:G1为2% (w/v) SA;成像菌株:GFP-SOM8;条件:G7无诱导、G8好氧诱导、G9厌氧诱导
3.5 共培养体系中生物膜形成的时程动态
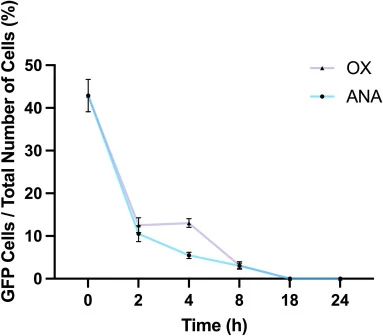
GFP-SOM8与长双歧杆菌DSM20219原位共培养过程中荧光强度的时间变化如图7所示。分析基于补充图S5所示的显微图像。好氧和厌氧条件下,GFP-SOM8荧光强度均随时间发生动态变化,反映了生物膜形成过程中菌体分布和聚集状态的改变。
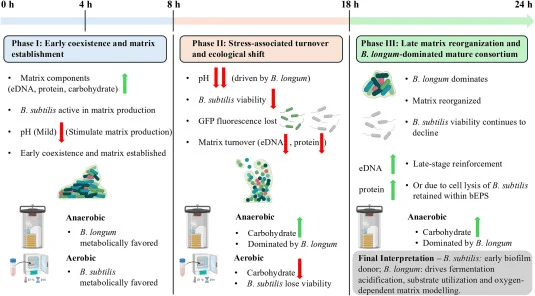
共培养体系中pH动态、GFP-SOM8存活率和生物膜基质生产的时间变化如图8所示。图8A展示了好氧和厌氧条件下pH和GFP-SOM8存活率的时间分辨变化;图8B展示了共培养体系中bEPS内eDNA含量的时间变化;图8C展示了生物膜基质其他组分的时间变化。
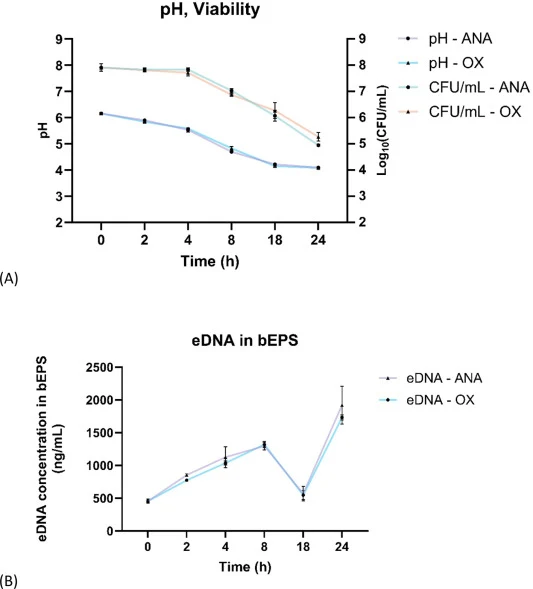
【数据】监测指标:pH、GFP-SOM8存活率、eDNA含量;条件:好氧与厌氧;生物学重复:n=3
3.6 种间互作的三阶段进程
时间分辨互作分析揭示了一个三阶段进程:早期共存与基质建立、胁迫相关周转、晚期基质重组,如图9所示。
【数据】互作阶段:三阶段(早期共存与基质建立、胁迫相关周转、晚期基质重组)
讨论与解读
海藻酸钠作为碳水化合物聚合物广泛用于益生菌包封,因其能在细胞相容条件下形成温和的交联水凝胶微珠。但仅海藻酸钠微珠对高度敏感的厌氧益生菌保护不足,其水合网络允许胃酸、胆盐、消化酶和氧气在胃肠道转运和储存期间渗入。本研究开发了海藻酸钠基生物膜辅助共包封系统,其中枯草芽孢杆菌SOM8作为产生物膜伙伴,为厌氧益生菌长双歧杆菌DSM20219服务,海藻酸钠支架提供细胞固定和包封后生物膜发育的初始水凝胶架构。
该系统显著增强了长双歧杆菌DSM20219的存活率,SGF和SIF暴露后维持超过7 log CFU/g,4 °C有氧储存四周后仍保持至少7 log CFU/g活细胞,优于所有对照配方。这些结果表明配方的保护性能不仅依赖于被动海藻酸钠包埋,还与原位生物膜形成、胞外基质发育、细胞聚集和共培养微环境的时间依赖性重塑相关。时间分辨共培养分析提示,枯草芽孢杆菌SOM8最初贡献于基质建立,随后……
编译者解读:该研究把“让细菌自己造保护层”的思路落到了共包封体系里,用产膜菌做“工程伙伴”而非单纯填充剂,思路巧妙。方法上依赖挤出法+Ca²⁺交联,工艺简单、可放大,但生物膜诱导需额外培养步骤,且厌氧诱导条件最有效——这在大规模生产中意味着额外的设备与成本。保护效果明确,但机制证据主要来自成像和时程关联,缺乏转录组或代谢组层面的直接因果验证。体内定植和长期安全性仍是空白,从“存活”到“生效”还有一段路。
参考来源
期刊:International Journal of Biological Macromolecules, 2026
DOI: 10.1016/j.ijbiomac.2026.153262
DOI: 10.1016/j.ijbiomac.2026.153262