来源:Isolation of Bacillus subtilis NJ01 and in silico evaluation of its antimicrobial metabolites as potential inhibitors of the CRN8 effector protein of Phytophthorainfestans(Microbial Pathogenesis)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
致病疫霉(Phytophthora infestans)引起的晚疫病每年造成全球马铃薯和番茄产业超过60亿美元的经济损失。过度依赖合成杀菌剂带来的环境与抗性风险,促使研究者转向可持续的生物防治策略。本研究从孟加拉国根际土壤中分离到一株对致病疫霉具有强拮抗活性的枯草芽孢杆菌NJ01,并通过AlphaFold2建模、虚拟筛选、分子对接及100 ns分子动力学模拟,从76种已知枯草芽孢杆菌抗菌代谢物中筛选出三种可稳定结合CRN8效应蛋白的候选化合物。研究为开发靶向卵菌效应蛋白的生物源杀菌剂提供了计算层面的证据。
研究背景
由卵菌和真菌感染引发的植物病害日益严重,全球作物产量因此每年损失20%至40%。长期以来,合成化学杀菌剂是防控这类病原体的主要手段。然而,这些农用化学品的过量及粗放使用加剧了病原体种群的抗生素抗性问题,使许多传统防治方法失效。除药效下降外,合成化学品对环境质量和人类健康的负面影响已引发全球关注。因此,开发可持续、环境友好且无毒副作用的替代方案,对保障作物保护和长期粮食安全至关重要。
有益根际细菌作为强效生物防治剂,通过直接和间接机制抑制植物病害。它们产生多种毒素、挥发性有机化合物(VOCs)和抗菌次级代谢产物来阻止病原体生长,直接参与抗生作用;同时释放几丁质酶和β-1,3-葡聚糖酶等裂解酶,破坏病原体细胞壁的结构完整性。此外,生物防治剂还可通过触发植物诱导系统抗性间接保护植物。枯草芽孢杆菌(Bacillus subtilis)是根际促生细菌中研究最为深入的物种之一,其产生的大量抗菌代谢物——包括脂肽、聚酮化合物和铁载体——使其成为开发新型生物防治制剂的理想候选者。
研究方法
2.1 样品采集与培养
根际土壤样品于2025年5月使用无菌采样工具和无菌自封袋,采自孟加拉国拉杰沙希地区BRRI实验田(24.3718° N,88.6604° E)。样品在无菌条件下运送至实验室,室温保存至进一步处理。具有典型晚疫病症状的马铃薯和番茄样品于同一采样期采自拉杰沙希Shaheb Bazar蔬菜市场(24.3650° N,88.5987° E)。病样置于无菌聚乙烯袋中,采集后立即运送至实验室,并于当天处理。根际土壤样品在无菌蒸馏水中进行系列稀释至10⁻⁵。从每个稀释度取100 μL等分试样涂布于Luria–Bertani(LB)琼脂平板上,37°C培养16 h以分离细菌菌落。根据形态特征选取离散菌落,反复传代培养以获得纯细菌分离物。对于病原体分离,从症状病斑扩展边缘切取约5 × 5 mm的小块组织,表面消毒后无菌转移至马铃薯葡萄糖琼脂(PDA)平板上。培养物在25°C培养7天,随后在新鲜PDA平板上传代以获得纯培养物,保存于4°C供后续实验使用。病原体的初步鉴定基于菌落形态和显微特征。尽管文献报道致病疫霉的最适生长温度约为19–20°C,但本研究选择25°C的培养温度,以保持病原体和拮抗细菌分离物处于相同的实验条件,从而实现拮抗活性的标准化评估。
【数据】样品来源:孟加拉国拉杰沙希BRRI实验田(24.3718° N,88.6604° E)和Shaheb Bazar蔬菜市场(24.3650° N,88.5987° E);采样时间:2025年5月;稀释度:10⁻⁵;培养基:LB琼脂、PDA;培养温度:细菌37°C、病原体25°C;培养时间:细菌16 h、病原体7天;保存温度:4°C
2.2 分离细菌的形态学检测
基于菌落形态对细菌分离物进行形态学表征,包括大小、形状、边缘、隆起度、表面质地和色素沉着。进行革兰氏染色以确定分离物的革兰氏反应。简要流程如下:细菌涂片经热固定于载玻片上,依次用结晶紫、碘液、酒精脱色剂和番红染色。染色后的载玻片在光学显微镜(1000×放大倍数)下使用浸油镜检,评估细胞形状、排列方式和革兰氏反应。
【数据】染色方法:革兰氏染色(结晶紫、碘液、酒精脱色剂、番红);显微镜放大倍数:1000×;镜检方式:浸油镜检
2.3 分离细菌的生化检测
使用麦康凯琼脂、甘露醇盐琼脂(MSA)、伊红美蓝(EMB)琼脂和过氧化氢酶试验对细菌分离物进行生化表征。对于麦康凯、MSA和EMB试验,将细菌培养物划线接种于相应琼脂平板上,37°C培养16–24 h。记录生长模式、乳糖发酵、甘露醇发酵和染料相互作用情况。过氧化氢酶活性测定方法为:在载玻片上新鲜细菌涂片上加一滴3%过氧化氢,立即产生气泡记录为阳性反应。
【数据】培养基:麦康凯琼脂、甘露醇盐琼脂(MSA)、伊红美蓝(EMB)琼脂;培养温度:37°C;培养时间:16–24 h;过氧化氢浓度:3%;阳性判定标准:立即产生气泡
2.4 分离细菌对致病疫霉的拮抗试验
使用PDA培养基上的双培养平板试验评估细菌分离物对致病疫霉的拮抗活性。将含有活跃生长菌丝块的5 mm直径琼脂块置于PDA平板中央,同时将各细菌分离物(调整至0.5麦氏浊度标准)在平板边缘附近划线接种。仅含致病疫霉菌丝块而无细菌接种的平板作为阴性对照,其径向生长(C)用作计算菌丝生长抑制百分比的基线。平板在25°C培养7天。通过测量真菌菌丝的径向生长抑制来评估抗真菌活性。菌丝生长抑制百分比通过比较处理平板(T)与阴性对照平板(C)中的病原体生长来计算,公式如下:菌丝生长抑制率(%)=(C − T)/ C × 100,其中C代表对照平板中真菌的径向生长,T代表存在细菌分离物时的径向生长。所有实验设三个重复。数据以平均值 ± 标准差(SD)表示。统计分析使用R编程进行单因素方差分析(one-way ANOVA)及Tukey事后检验(p < 0.05)。
【数据】培养基:PDA;菌丝块直径:5 mm;细菌浓度:0.5麦氏浊度标准;培养温度:25°C;培养时间:7天;重复数:3;统计方法:one-way ANOVA + Tukey事后检验;显著性阈值:p < 0.05;计算公式:抑制率(%)=(C − T)/ C × 100
2.5 分离细菌的分子鉴定与测序
使用Wizard®基因组DNA纯化试剂盒按制造商说明提取所选细菌分离物的基因组DNA。使用通用引物8F(5′-AGAGTTTGATCCTGGCTCAG-3′)和1492R(5′-CGGTTACCTTGTTACGACTT-3′)通过聚合酶链反应(PCR)扩增16S rRNA基因。PCR扩增条件如下:初始变性95°C 5 min,随后35个循环的变性95°C 30 s、退火56°C 30 s、延伸72°C 2 min,最后延伸72°C 10 min。扩增的PCR产物通过琼脂糖凝胶电泳可视化,纯化后送测序。测序由孟加拉国达卡1216的Biotech Concern公司完成,所得序列使用BLAST与NCBI GenBank数据库中的序列进行比对。使用多序列比对和建树方法进行系统发育分析以确认细菌身份。
【数据】DNA提取试剂盒:Wizard® Genomic DNA Purification Kit;引物:8F(5′-AGAGTTTGATCCTGGCTCAG-3′)、1492R(5′-CGGTTACCTTGTTACGACTT-3′);PCR条件:初始变性95°C 5 min,35个循环(变性95°C 30 s,退火56°C 30 s,延伸72°C 2 min),最终延伸72°C 10 min;测序公司:Biotech Concern Company,Dhaka 1216,Bangladesh;比对工具:BLAST,NCBI GenBank
2.6 RNA二级结构预测与序列分析
使用RNAfold网络服务器在37°C下进行RNA二级结构预测,计算最小自由能(MFE)、配分函数、熵、折叠数、ProbKnot和山形图分析。使用BioEdit软件测定核苷酸组成和G + C含量百分比。
【数据】预测温度:37°C;工具:RNAfold网络服务器(MFE、配分函数、熵、Folds、ProbKnot、Mountain Plot);核苷酸组成分析软件:BioEdit
2.7 蛋白质的检索、制备与质量评估
致病疫霉crinkler效应蛋白8(CRN8)的晶体结构在RCSB蛋白质数据库中不可用。因此,采用同源建模方法,使用AlphaFold2服务器获得假设的三维结构。CRN8的氨基酸序列从UniProt数据库检索(登录号:Q2M405)。使用PROCHECK、Verify3D和ERRAT服务器验证预测结构,评估立体化学质量和整体结构可靠性。随后,使用SWISS-PDB Viewer对建模蛋白进行能量最小化,以消除空间冲突并优化几何构型。使用COACH和CASTp网络服务器鉴定预测AlphaFold模型的潜在活性位点。
【数据】蛋白序列来源:UniProt(登录号:Q2M405);建模工具:AlphaFold2服务器;验证工具:PROCHECK、Verify3D、ERRAT服务器;能量最小化工具:SWISS-PDB Viewer;活性位点鉴定工具:COACH、CASTp网络服务器
2.8 配体收集与制备
初步基于广泛文献综述选择了共76种化合物用于分子对接分析(补充表S1)。所有所选配体均为文献报道的枯草芽孢杆菌来源抗菌代谢物。化合物的三维结构从PubChem数据库以SDF格式检索。在对接分析前,使用MMFF94力场和最速下降算法对配体进行2000步能量最小化。
【数据】化合物数量:76种;来源:PubChem数据库(SDF格式);能量最小化力场:MMFF94;算法:最速下降法;步数:2000步
2.9 虚拟筛选与分子对接
使用PyRx中实现的AutoDock Vina进行虚拟筛选,以鉴定致病疫霉CRN8蛋白的潜在小分子抑制剂。使用通用力场(UFF)和共轭梯度算法进行能量最小化,最大步数和更新间隔采用默认参数。制备的蛋白质和配体结构在对接前转换为PDBQT格式。网格盒以预测的活性位点为中心……
【数据】对接软件:AutoDock Vina(PyRx实现);能量最小化力场:通用力场(UFF);算法:共轭梯度算法;文件格式:PDBQT;网格盒中心:预测活性位点
研究结果
3.1 样品采集与培养
从拉杰沙希水稻研究所采集的根际土壤样品在LB琼脂上37°C培养16 h后产生大量细菌生长。系列稀释涂布在较低稀释度(10⁻¹–10⁻³)产生混合细菌种群,在较高稀释度(10⁻⁴–10⁻⁵)产生离散、分离良好的菌落。经反复传代培养,获得六株形态学上不同的细菌分离物(Isolate-1至Isolate-6),并作为纯培养物保存(图1)。对于真菌分离,接种于PDA平板上的腐烂番茄和马铃薯组织切片在25°C培养7天后发育出卵菌分离物。反复传代培养获得稳定的纯卵菌分离物。使用乳酸酚棉蓝(LPCB)染色进行显微镜检查,揭示了与致病疫霉一致的特征性菌丝和孢子囊结构(图1),该分离物保存于4°C供下游拮抗试验使用。从根际土壤样品系列稀释液(10⁻¹至10⁻⁵)获得的混合细菌培养平板涂布于LB琼脂上,37°C培养16 h(补充图S1)。
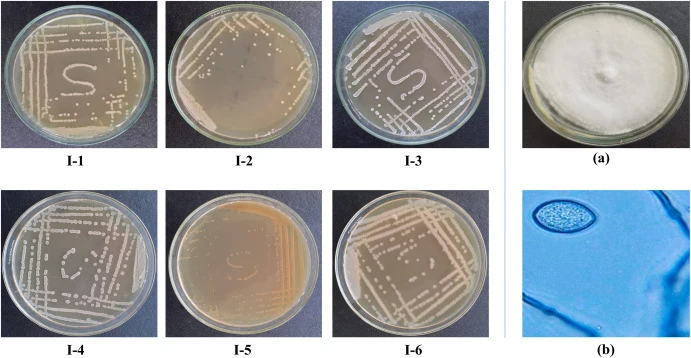
【数据】细菌培养:LB琼脂,37°C,16 h;真菌培养:PDA,25°C,7天;稀释度范围:10⁻¹–10⁻⁵;分离菌株数:6株细菌(Isolate-1至Isolate-6)+ 1株卵菌;染色方法:LPCB染色;保存温度:4°C
3.2 分离细菌的形态学检测
所有六株细菌分离物在LB琼脂上形成边界清晰的菌落,边缘光滑至略不规则,表面不透明。革兰氏染色显示,所有分离物(Isolate-1至Isolate-6)在油浸显微镜(1000×)下保留结晶紫并呈紫色,证实其为革兰氏阳性(图2)。细胞主要呈杆状形态,与芽孢杆菌属特征一致。在六株筛选菌株中未检测到革兰氏阴性分离物,表明根际土壤样品以属于芽孢杆菌属的革兰氏阳性、产芽孢细菌种群为主。
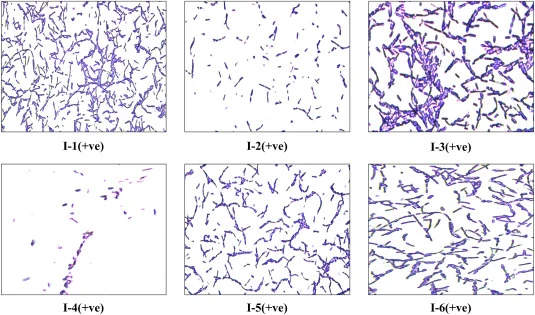
【数据】菌落特征:边缘光滑至略不规则,表面不透明;革兰氏染色结果:全部为革兰氏阳性;细胞形态:杆状;显微镜放大倍数:1000×(油浸镜);革兰氏阴性菌株数:0
3.3 分离细菌的生化检测
使用麦康凯琼脂、甘露醇盐琼脂(MSA)、伊红美蓝(EMB)琼脂(补充图S2)和过氧化氢酶试验对六株细菌分离物进行生化表征。所有分离物在麦康凯琼脂或EMB琼脂上均未显示生长,表明它们分别不能耐受胆盐和伊红–美蓝染料,提示它们不太可能是革兰氏阴性肠道细菌如大肠杆菌或沙门氏菌。此外,在甘露醇盐琼脂上无生长表明这些分离物不耐盐,不太可能属于耐盐属如葡萄球菌属。相反,所有六株分离物均表现出强过氧化氢酶活性,加入3% H₂O₂后立即产生剧烈气泡,证实了芽孢杆菌属等好氧细菌典型的过氧化氢酶阳性特征,与其好氧代谢一致。
【数据】培养基:麦康凯琼脂、MSA、EMB琼脂;培养温度:37°C;培养时间:16–24 h;过氧化氢浓度:3%;过氧化氢酶结果:全部阳性(立即剧烈气泡);麦康凯生长:全部阴性;EMB生长:全部阴性;MSA生长:全部阴性
3.4 分离细菌对致病疫霉的拮抗试验
使用PDA培养基上的双培养平板试验评估六株细菌分离物对致病疫霉的拮抗潜力。六株细菌分离物对致病疫霉的拮抗活性表现出显著差异(图3)。Isolate-2表现出最高的菌丝生长抑制率(约54%),其次是Isolate-3(约45%),表明对病原体具有强拮抗潜力。相比之下,Isolate-1、-4和-6表现出弱抑制作用,而Isolate-5在实验条件下显示可忽略或无 detectable 的抑制作用(图3)。分离物间观察到的差异使用单因素方差分析及Tukey事后检验进行统计学评估(p < 0.05)。分离物间拮抗活性的显著差异可能反映了它们产生或分泌抗真菌/抗卵菌代谢物能力的差异。特别是Isolate-5无抗真菌活性,表明它可能缺乏或低表达针对致病疫霉的有效拮抗因子。Isolate-2与真菌块之间形成的清晰抑制带表明产生了能够抑制致病疫霉菌丝扩展的可扩散抗真菌代谢物。基于显著优越的抑制百分比,Isolate-2被选为最有前景的生物防治候选菌株,并进行后续分子鉴定和计算分析。
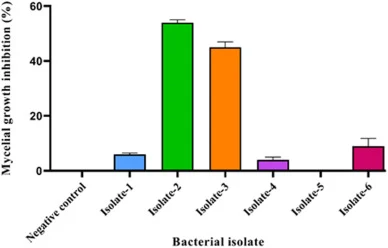
【数据】Isolate-2菌丝生长抑制率:约54%;Isolate-3抑制率:约45%;Isolate-1、-4、-6:弱抑制;Isolate-5:无可检测抑制;培养温度:25°C;培养时间:7天;统计方法:one-way ANOVA + Tukey事后检验;显著性阈值:p < 0.05;重复数:3
3.5 分离细菌的分子鉴定与测序
从Isolate-2提取的基因组DNA使用通用16S rRNA引物8F和1492R成功扩增,产生约1.5 kb的扩增子,与16S rRNA基因的预期大小一致(图4)。扩增产物经测序并在NCBI数据库中使用BLAST分析,显示与枯草芽孢杆菌菌株的序列相似性为99.53%。该分离物的16S rRNA基因序列已提交至GenBank,登录号为PZ117730。基于多序列比对和邻接法(neighbor-joining)的系统发育分析将Isolate-2聚类在枯草芽孢杆菌进化支内,确认了其种水平的分类学身份(补充图S3)。基于形态学、生化和分子特征的组合,Isolate-2被推定为枯草芽孢杆菌。
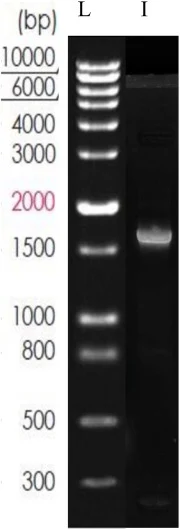
【数据】扩增子大小:约1.5 kb;引物:8F、1492R;序列相似性:99.53%(与B. subtilis);GenBank登录号:PZ117730;系统发育方法:邻接法(neighbor-joining);鉴定结果:Bacillus subtilis
3.6 RNA二级结构预测与序列分析
枯草芽孢杆菌NJ01的16S rRNA基因序列修剪至1060 bp长度,总GC含量为53.49%。核苷酸组成分析显示A(21.32%)、T(25.19%)、G(23.40%)和C(30.09%),表明为胞嘧啶富集序列。使用RNAfold网络服务器在37°C下进行RNA二级结构预测。最小自由能(MFE)结构预测为−339.60 kcal/mol,热力学系综自由能为−355.69 kcal/mol,系综多样性为172.40。MFE结构在系综中的频率为0.00%,表明高结构灵活性。质心二级结构预测为−296.00 kcal/mol。MFE、系综和质心结构的山形图比较,以及沿序列的位置熵值,展示了整个分子中广泛的碱基配对相互作用和稳定的茎环结构(图5)。
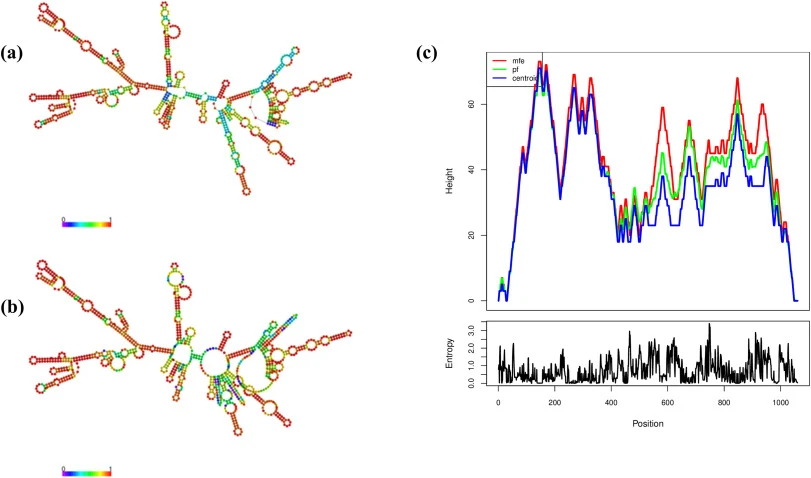
【数据】序列长度:1060 bp;GC含量:53.49%;核苷酸组成:A 21.32%、T 25.19%、G 23.40%、C 30.09%;预测温度:37°C;MFE:−339.60 kcal/mol;系综自由能:−355.69 kcal/mol;系综多样性:172.40;MFE系综频率:0.00%;质心结构:−296.00 kcal/mol
3.7 同源建模与结构评估
由于致病疫霉CRN8蛋白的晶体结构在RCSB蛋白质数据库中不可用,基于UniProt序列使用AlphaFold2服务器生成了三维同源模型。使用多种验证工具评估预测模型的结构质量。PROCHECK生成的Ramachandran图显示92.4%的残基位于最 favored 区域,6.2%位于额外允许区域,确认了可接受的立体化学质量(图6)。ERRAT2分析得出总体质量因子为90.60%,与较低分辨率结构的可靠模型质量一致(补充图S4)。AlphaFold pLDDT图进一步确认了结构域中每个残基的高置信度评分(补充图S5)。使用CASTp和COACH网络服务器鉴定了预测的活性位点残基,包括ALA173、ARG342、GLN108、TRP58和PHE209,并用于定义后续虚拟筛选的对接网格盒。
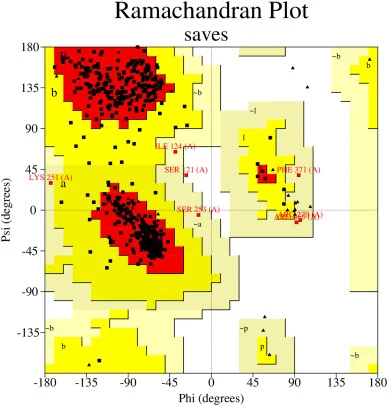
【数据】建模工具:AlphaFold2;验证工具:PROCHECK、ERRAT2、Verify3D;Ramachandran最favored区域:92.4%;额外允许区域:6.2%;ERRAT2质量因子:90.60%;活性位点残基:ALA173、ARG342、GLN108、TRP58、PHE209;活性位点鉴定工具:CASTp、COACH
3.8 虚拟筛选与分子对接
使用PyRx中实现的AutoDock Vina,对枯草芽孢杆菌来源的抗菌化合物针对致病疫霉CRN8蛋白进行虚拟筛选。所有筛选化合物的结合亲和力评分范围为−2.4至−8.4 kcal/mol。结合亲和力最高的前25种化合物以散点图形式呈现,供比较可视化(补充图S6)。基于最高的负结合亲和力评分和活性位点内的有利相互作用,选择了三种先导化合物进行进一步分析:C1(Androst-5-en-3-ol, 4,4-d……)
【数据】对接软件:AutoDock Vina(PyRx);结合亲和力范围:−2.4至−8.4 kcal/mol;先导化合物:C1(Androst-5-en-3-ol, 4,4-dimethyl-, (3beta)-)、C2(7-O-Malonyl macrolactin A)、C3(Simiarenol);C1结合能:−8.4 kcal/mol;C2结合能:−8.1 kcal/mol;C3结合能:−8.0 kcal/mol
3.9 分子动力学模拟
对CRN8–配体复合物进行了100 ns的分子动力学模拟。图8展示了RMSD、RMSF、回转半径(Rg)和SASA的分析结果。三种复合物在模拟过程中均表现出稳定性。主成分分析(PCA)揭示了CRN8蛋白在PC1和PC2上的构象分布(图9)。自由能景观(FEL)分析以RMSD和Rg为反应坐标构建,深蓝色盆地代表热力学稳定构象,表明三种化合物均能有效稳定CRN8蛋白(图10)。
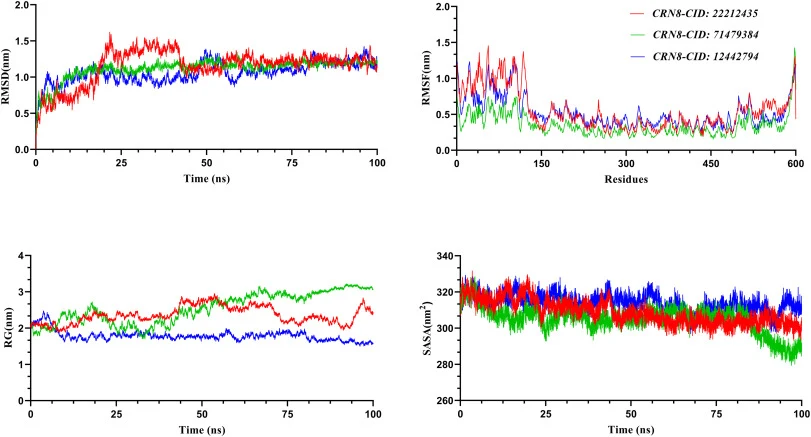
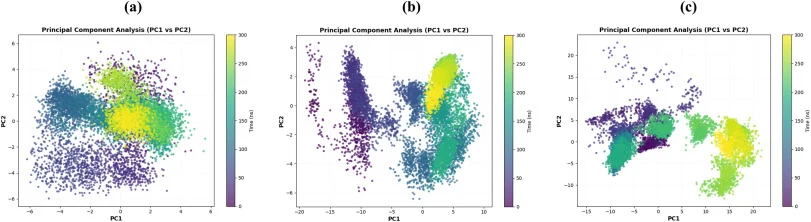
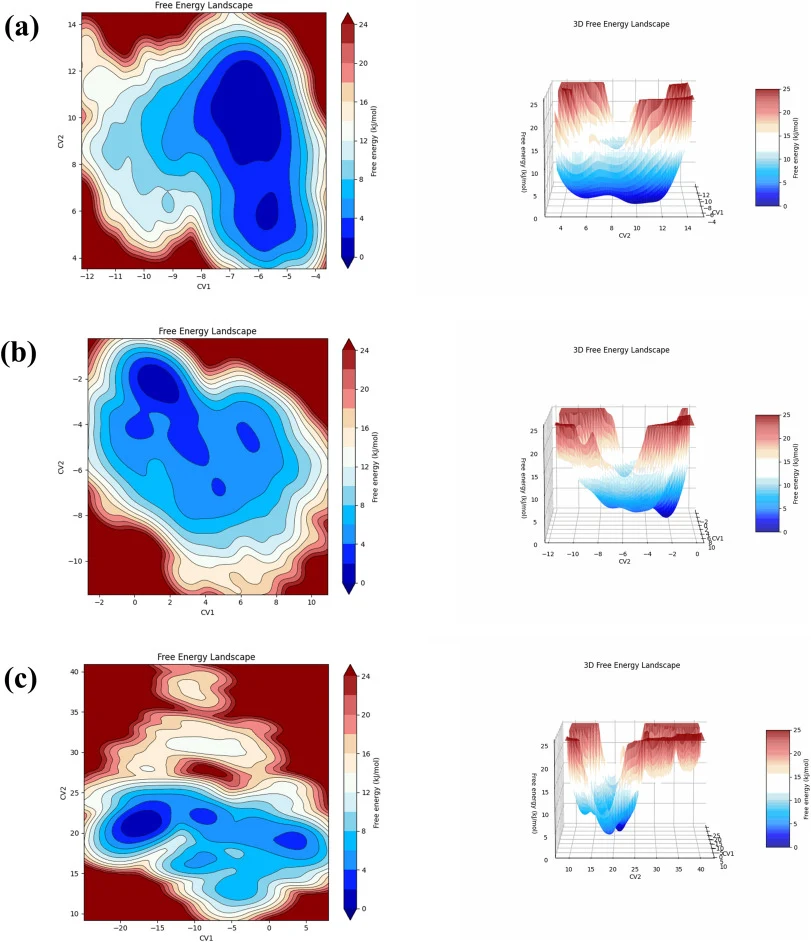
【数据】模拟时长:100 ns;分析参数:RMSD、RMSF、Rg、SASA;PCA分析:PC1和PC2;FEL反应坐标:RMSD和Rg;分析软件:GraphPad Prism v10.5
讨论与解读
致病疫霉引起的晚疫病是威胁全球马铃薯和番茄生产最具破坏性的卵菌病害之一,年经济损失超过60亿美元。合成杀菌剂带来的环境污染和抗性发展问题日益严重,促使研究者加速寻找可持续的生物防治策略。本研究从根际土壤中分离鉴定了枯草芽孢杆菌NJ01,展示了其对致病疫霉的拮抗活性,并通过计算方法鉴定了三种靶向CRN8效应蛋白的化合物。
从根际土壤中分离到六株革兰氏阳性、过氧化氢酶阳性、杆状细菌分离物,随后通过16S rRNA测序以99.53%的同源性将Isolate-2鉴定为枯草芽孢杆菌NJ01,这与芽孢杆菌属在多种植物系统可培养根际细菌群落中占主导地位的既有发现一致。先前研究表明,根际细菌分离物的16S rRNA基因序列分析和系统发育分析一致地将芽孢杆菌鉴定为优势属,在不同土壤环境中与枯草芽孢杆菌菌株高度相似。类似地,Islam等人从二十株根际土壤分离物中通过形态学和分子16S rRNA方法分离到枯草芽孢杆菌SI-18,确认其与NCBI数据库中序列同源性为99%。
编译者解读:该研究采用"分离鉴定+计算筛选"的混合策略,避开了传统活性追踪分离的耗时瓶颈,直接从已知代谢物库中虚拟筛选靶向CRN8的候选分子。AlphaFold2建模弥补了CRN8晶体结构缺失的短板,100 ns MD模拟为结合稳定性提供了动态证据。但研究目前停留在计算层面,三种先导化合物的体外抑菌活性、对CRN8效应的实际阻断能力以及田间防效均未验证。从合成生物学视角看,后续可将这些化合物的生物合成基因簇在枯草芽孢杆菌底盘中进行模块化重构,实现产量优化与结构衍生化,推动从"计算候选"到"可发酵产物"的转化。
参考来源
期刊:Microbial Pathogenesis, 2026
DOI: 10.1016/j.micpath.2026.108836
DOI: 10.1016/j.micpath.2026.108836