来源:Suppression of Aspergillus niger growth and ochratoxin A biosynthesis by citrus extracts: Phytochemical profiling, In vitro/In situ evaluation, and otaA gene expression analysis for post-harvest grain protection(Food Control)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
赭曲霉毒素A(OTA)是威胁谷物安全的主要真菌毒素之一。本研究以酸橙(Citrus aurantium)和柠檬(Citrus limon)的水醇提取物为对象,比较其抑制黑曲霉(Aspergillus niger)生长与OTA生物合成的能力。UPLC-PDA分析揭示了两者截然不同的酚类特征谱,体外实验显示提取物呈剂量依赖性抑制菌丝生长、产孢和OTA合成,其中柠檬提取物抗产毒活性更强。在硬粒小麦上的原位应用证实,10%柠檬处理可显著降低真菌负荷(65–78%)和OTA积累(82–92%),并下调otaA基因表达达92%。研究为柑橘副产物在可持续采后保护中的增值利用提供了依据。
研究背景
硬粒小麦(Triticum durum Desf.)是突尼斯的战略性谷物作物,兼具营养与经济价值,也是国内谷物消费和农业生产的重要组成部分。除加工与营养品质外,储存期间的保鲜是重大食品安全议题——在地中海气候环境中,温湿度条件尤其利于真菌繁殖和毒素积累。突尼斯的情况更为突出:谷物基食品消费广泛,采后真菌污染直接威胁食品质量与公众健康。在食品中报告的主要有毒分子类别中,真菌毒素占食品安全警报总量的29%。谷物及其副产物中真菌毒素污染是消费者健康的核心问题之一,可造成重大经济损失和一系列健康损害。即使遵循良好农业规范或维持最优储藏条件,真菌毒素污染也无法在食品供应链中被完全消除。此外,已有明确证据表明真菌毒素具有……(原文此处截断)。
研究方法
2.1 植物材料与提取物制备
以酸橙(Citrus aurantium)和柠檬(Citrus limon)的固体废弃物(果汁提取后收集的果皮、种子和叶片残渣)为原料制备提取物。水醇提取物采用70%(v/v)乙醇水溶液,通过超声辅助提取获得,使用40 kHz超声浴(100 W),于40 °C维持60 min。提取液经Whatman No. 1滤纸过滤,在40 °C下用旋转蒸发仪减压浓缩,冻干,并储存于−20 °C气密容器中直至使用。
【数据】提取溶剂:70%(v/v)乙醇水溶液;超声频率:40 kHz;功率:100 W;温度:40 °C;时间:60 min;浓缩温度:40 °C;储存温度:−20 °C
2.2 UPLC-PDA植物化学分析
柑橘提取物中的酚酸和黄酮类化合物采用超高效液相色谱(UPLC)(Waters ACQUITY H-Class System,美国)结合光电二极管阵列(PDA)检测器进行定量。分离在ACQUITY UPLC BEH C18柱(2.1 mm × 100 mm,1.7 μm粒径)上于40 °C完成。流动相由0.2%乙酸水溶液(A)和100%甲醇(B)组成,流速0.3 mL/min。进样体积3 μL。梯度洗脱程序如下:0–2 min为5% B;2–10 min从5%升至40% B;10–15 min从40%升至70% B;15–18 min从70%升至95% B;18–20 min维持95% B。随后系统重新平衡至初始条件(5% B)3 min,再进行下一次进样。检测波长根据各标准化合物的最大吸收设定。酚酸和黄酮类化合物的真实标准品在实验室常规制备,分别溶于甲醇配制成适当储备浓度并稀释,在相关工作范围内构建外标校准曲线。定量采用真实标准品的外标校准曲线,每种化合物设五个浓度水平。通过与真实标准品的保留时间和紫外光谱比较进行鉴定(当有标准品时)。无真实标准品或质谱确认的化合物被视为初步鉴定。
【数据】色谱柱:ACQUITY UPLC BEH C18(2.1 mm × 100 mm,1.7 μm);柱温:40 °C;流速:0.3 mL/min;进样体积:3 μL;流动相A:0.2%乙酸水溶液;流动相B:100%甲醇;梯度:0–2 min 5% B,2–10 min 5–40% B,10–15 min 40–70% B,15–18 min 70–95% B,18–20 min 95% B;再平衡:3 min;校准曲线浓度水平:5个
2.3 体外抗真菌活性
首先,本研究使用一株从储存的硬粒小麦籽粒中分离的产赭曲霉毒素黑曲霉(A. niger)菌株。该菌株因其与采后谷物污染的相关性及其OTA产生能力而被选中。该分离株以代码1C15保藏于实验室菌种库。接种体制备时,先将黑曲霉在麦芽提取物琼脂(MEA)上于25 °C培养7天。用含Tween 80(0.01%)的无菌蒸馏水收获孢子,使用血细胞计数板将悬浮液调整至10⁶孢子/mL浓度。然后,通过CYA培养基上的接触试验测试提取物的抗真菌和抗产毒活性。简言之,将系列体积的乙醇提取物分别充分溶解于二甲基亚砜(DMSO)中,最终浓度不超过1%(v/v)。随后,将制备的悬浮液加入温度低于45 °C的察氏酵母琼脂(CYA)培养基中,乙醇提取物的最终浓度为5、10、15、20和25 mg/mL,然后倒入培养皿。CYA平板用接种针在中心精确接种3 μL真菌孢子悬浮液。平板随后用封口膜密封,置于低密度聚乙烯袋中,在25 °C受控温度下培养7天。所有试验均设三个重复。最低抑制浓度(MIC)操作定义为培养7天后在CYA培养基上未观察到可见真菌生长的最低提取物浓度。由于未进行亚培养至无提取物培养基,该终点反映试验条件下的生长抑制,不能区分抑真菌和杀真菌活性。
【数据】菌株:黑曲霉(A. niger)1C15;培养基:MEA、CYA;培养温度:25 °C;培养时间:7天;孢子浓度:10⁶孢子/mL;Tween 80浓度:0.01%;DMSO最终浓度:≤1%(v/v);提取物浓度:5、10、15、20、25 mg/mL;接种体积:3 μL;重复数:3
2.4 生长评估与产孢评价
对于生长动力学研究,每天在两个正交方向精确测量菌落直径。随后将直径对时间作图以确定生长速率。菌丝生长抑制百分比与对照比较计算。菌丝生长评估后,对样品进行分析以评估水醇提取物对真菌孢子产生的影响。从每个平板收获的孢子用Tween 80溶液冲洗,离心并浓缩。使用血细胞计数板定量分生孢子浓度,以确定每cm²平板的孢子数。采用以下公式计算产孢抑制百分比:产孢抑制(%)= (Nc − Nt) / Nc × 100,其中Nc表示对照平板上产生的真菌孢子数量,Nt表示提取物处理平板上产生的真菌孢子数量。此外,通过线性回归分析将水醇提取物浓度与菌丝生长抑制程度相关联,确定真菌菌丝生长抑制的IC50。
【数据】测量方式:两个正交方向每日测量菌落直径;孢子冲洗液:Tween 80溶液;产孢抑制公式:(Nc − Nt) / Nc × 100;IC50计算方法:线性回归分析
2.5 OTA定量
OTA采用液相色谱系统(Smartline HPLC Series KNAUER,德国)分析,配备四元泵(Smartline 1000 plus Smart line manager 5000)、自动进样器(Smartline 3900)、带预柱的分析型反相柱(250×4.6 mm;eurospher 100-5 C18)、柱温箱(温度控制范围5 °C至85 °C)和荧光检测器(RF-10AXL.SHIMADZU)。柱温维持30 °C。流动相由水:乙腈:乙酸(41:57:2,v/v/v)组成,以等度模式1 mL/min输送。样品进样体积20 μL,OTA检测激发波长330 nm、发射波长463 nm。OTA校准曲线设定范围为5 ng/mL至1000 ng/mL。OTA常规从活跃生长菌落区域采集的三个琼脂塞(∅ = 6 mm)中提取。将琼脂塞放入琥珀色瓶中,按Chebil等(2020)所述提取。对于小麦样品,OTA从25 g研磨谷物的代表性样品中用100 mL乙腈/水(60:40,v/v)提取,并按Kabak等(2009)所述用IAC柱净化。为确定OTA产量,从提取的琼脂塞中测定毒素,并使用以下公式计算:OTA产量(ng/g)= C × V / P discs,其中C:从校准曲线测定的OTA浓度(ng/mL);V:悬浮液体积(1 mL);P discs:分析培养基中三个琼脂塞的质量(g)。OTA产量抑制(%)= (OPC − OPT) × 100 / OPC;其中OPC:对照的OTA产量,OPT:处理样品的OTA产量。
【数据】色谱系统:Smartline HPLC Series KNAUER;色谱柱:eurospher 100-5 C18(250×4.6 mm);柱温:30 °C;流动相:水:乙腈:乙酸(41:57:2,v/v/v);流速:1 mL/min;进样体积:20 μL;激发波长:330 nm;发射波长:463 nm;校准范围:5–1000 ng/mL;琼脂塞直径:6 mm;小麦样品量:25 g;提取液:100 mL乙腈/水(60:40,v/v)
2.6 RNA提取与基因表达分析(RT-qPCR)
使用TRIzol®试剂方案从冷冻菌丝体中提取总RNA,并用DNase I(无RNase)消除基因组DNA。从1 μg总RNA合成第一链cDNA。定量PCR在实时PCR系统中使用Power SYBR® Green Master Mix进行。20 μL反应体系包含1× Master Mix、200 nM各特异性引物和2 μL cDNA模板。otaA基因特异性引物为:正向,5′-ATGTCGCTTCCTCCGATCTC-3′;反向,5′-TCGATGGTGGTGATGGTGAT-3′。β-微管蛋白基因(正向,5′-GCTGCTGGCAACAATAC-3′;反向,5′-GACCTCAGCGTACAGTAG-3′)用作归一化参考基因。预期扩增子大小:otaA为142 bp,β-微管蛋白为156 bp。扩增效率由系列cDNA稀释液标准曲线计算,otaA为98.6%,β-微管蛋白为101.2%,从而证实了稳健的扩增性能并确认了该 assays 适用于可靠的相对定量。
【数据】RNA提取试剂:TRIzol®;DNA消除:DNase I(无RNase);cDNA合成模板量:1 μg总RNA;PCR反应体积:20 μL;Master Mix:1× Power SYBR® Green;引物浓度:200 nM;cDNA模板:2 μL;otaA引物:正向5′-ATGTCGCTTCCTCCGATCTC-3′,反向5′-TCGATGGTGGTGATGGTGAT-3′;β-微管蛋白引物:正向5′-GCTGCTGGCAACAATAC-3′,反向5′-GACCTCAGCGTACAGTAG-3′;扩增子大小:otaA 142 bp,β-微管蛋白156 bp;扩增效率:otaA 98.6%,β-微管蛋白101.2%
研究结果
3.1 植物化学特征谱及功能意义
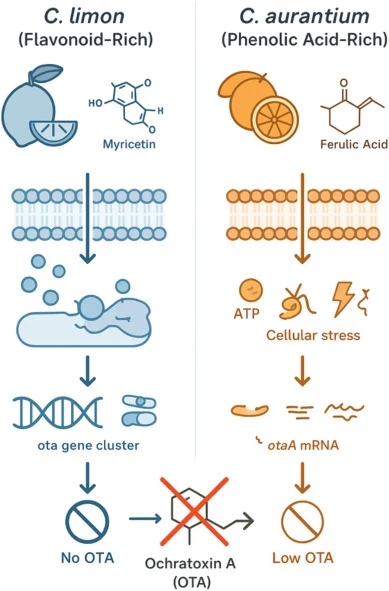
UPLC-PDA分析揭示了酸橙和柠檬提取物中生物活性化合物特征的明显定性和定量差异(表1)。这些差异表明酚酸和黄酮组成的种间特异性变异。酸橙提取物以阿魏酸(7.500 mg/g DW)、鞣花酸(3.285 mg/g DW)、木犀草素-7-O-葡萄糖苷(8.578 mg/g DW)、山柰酚3-芸香糖苷-7-半乳糖苷(5.109 mg/g DW)、穗花杉双黄酮(2.188 mg/g DW)和杨梅苷(2.473 mg/g DW)为主。文献报道这些化合物具有抗真菌或抗氧化特性,特别是阿魏酸和鞣花酸,可破坏细胞壁完整性、抑制分生孢子萌发并调节真菌细胞内的氧化应激。相比之下,柠檬显示出不同的化学特征,以高水平的芥子酸(7.640 mg/g DW)、杨梅素(9.499 mg/g DW)、芹菜素(6.284 mg/g DW)和异鼠李素糖苷(1.626–1.749 mg/g DW)为特征。芥子酸和杨梅素是强抗氧化剂,能够减少细胞内活性氧(ROS),而ROS是黑曲霉中OTA生物合成激活的关键信号因子。这些代谢物的较高丰度可能与柠檬在较低处理浓度下观察到的强OTA抑制有关。酸橙中特定黄酮糖苷占优势而柠檬中黄酮苷元占优势,提示这两个物种间糖基转移酶表达的差异。糖基化模式显著影响黄酮的生物利用度和生物活性,糖基化形式通常表现出增强的溶解性和稳定性。这些结果强化了先前的发现,即柑橘黄酮和酚酸具有显著的种间多样性,导致抗菌活性的功能特化。总体而言,对比鲜明的植物化学特征可能部分解释了生物测定中观察到的差异生物学响应。
【数据】酸橙主要成分:阿魏酸7.500 mg/g DW、鞣花酸3.285 mg/g DW、木犀草素-7-O-葡萄糖苷8.578 mg/g DW、山柰酚3-芸香糖苷-7-半乳糖苷5.109 mg/g DW、穗花杉双黄酮2.188 mg/g DW、杨梅苷2.473 mg/g DW;柠檬主要成分:芥子酸7.640 mg/g DW、杨梅素9.499 mg/g DW、芹菜素6.284 mg/g DW、异鼠李素糖苷1.626–1.749 mg/g DW
3.2 真菌生长的剂量依赖性抑制
两种柑橘提取物对黑曲霉菌丝生长均表现出明显的剂量依赖性抑制作用。在5%浓度下,酸橙抑制生长47.06%,而柠檬抑制25.88%。在10%浓度下,抑制效果分别增至61.18%和30.16%,而在20%浓度下两种提取物均实现完全生长抑制(100%)(表2)。酸橙在较低浓度下更强的表现可能与其高阿魏酸水平有关,因为该酚酸与改变真菌膜完整性、增加通透性和损害麦角固醇生物合成相关,从而抑制菌丝延伸。同时,酸橙中的木犀草素衍生物和穗花杉双黄酮可能协同破坏真菌细胞信号通路,因为这些黄酮对真菌MAPK通路表现出强抑制作用,而MAPK通路对菌丝伸长至关重要。本研究评估了宏观径向生长,但未包括菌丝形态或丝状化的显微检查;因此,无法就提取物诱导的真菌丝状结构改变得出直接结论。虽然酸橙在最低测试浓度下显示出更强的径向生长抑制,但整体数据集——特别是OTA抑制和otaA下调——表明柠檬具有更强的抗赭曲霉毒素特征。尽管柠檬在较低浓度下表现出较弱的抑制,但其生长抑制效果在20%时与酸橙相当,表明柠檬代谢物需要更高的阈值才能实现相似的膜和线粒体破坏水平。这与先前的观察一致,即柑橘黄酮醇(如杨梅素)表现出强抗氧化活性,但主要通过代谢而非膜靶向机制发挥抗真菌活性。
【数据】5%浓度:酸橙抑制47.06%,柠檬抑制25.88%;10%浓度:酸橙抑制61.18%,柠檬抑制30.16%;20%浓度:两者均100%抑制
3.3 产孢抑制
两种提取物均显著减少孢子产生,且对处理浓度的响应比对菌丝生长更明显。在5%浓度下,酸橙和柠檬分别抑制产孢62.0%和65.7%。在10%浓度下,酸橙抑制产孢85.6%,而柠檬完全抑制分生孢子形成(100%)(表2)。柠檬更强的产孢抑制可能至少部分与芥子酸、杨梅素和芹菜素的存在有关,这些物质通过改变ROS梯度和抑制产孢基因(如brlA和abaA)的转录来干扰分生孢子梗发育。包括杨梅素在内的黄酮醇还已知可抑制真菌NADH氧化酶活性,限制分生孢子发生所需的ATP。同时,酸橙中观察到的产孢抑制可能由鞣花酸和穗花杉双黄酮介导,据报道这些物质可破坏产孢过程中真菌细胞壁的重构。两种提取物在20%浓度下对产孢的完全抑制反映了跨多个代谢途径的累积毒性。在本研究中,产孢被选为相关表型终点,因为分生孢子产生直接促进真菌传播和储藏污染。然而,真菌持久性还可能涉及粘附和生物膜相关行为,本研究未对此进行调查。专门的生物膜试验在未来的研究中将是有价值的,以确定柑橘提取物是否也影响结构化真菌群落和表面定殖。
【数据】5%浓度:酸橙抑制产孢62.0%,柠檬抑制65.7%;10%浓度:酸橙抑制85.6%,柠檬抑制100%;20%浓度:两者均100%抑制
3.4 对OTA产量的影响及机制解释
OTA产量受两种提取物高度影响。在5%浓度下,酸橙抑制OTA 25.81%,而柠檬实现52.65%抑制。在10%浓度下,差异更加明显:柠檬完全阻断OTA生物合成(100%),而酸橙抑制OTA 85.23%。在20%浓度下,两种提取物均观察到OTA的完全抑制(表2)。柠檬在较低浓度下更强的抗产毒活性与芥子酸、杨梅素和芹菜素的较高丰度更为一致。先前研究表明,OTA生物合成受氧化应激途径调控,其中ROS作为otaA和otaB转录的正信号。柠檬的强抗赭曲霉毒素活性可能与其较高水平的芥子酸和杨梅素有关,这些物质已知能够抑制ROS积累,从而可能有助于减少OTA生物合成途径的激活。此外,柠檬中丰富的芹菜素据报道可抑制其他系统中的聚酮合酶活性,提示此处可能存在类似作用,尽管缺乏直接证据。在酸橙中,高阿魏酸浓度可能有助于10%浓度下的强OTA抑制,因为阿魏酸可通过破坏真菌膜稳定性和减少前体流入次生代谢来抑制OTA生物合成。类似地,木犀草素衍生物的贡献可能与抑制氧化应激和线粒体呼吸有关,从而通过干扰乙酰辅酶A(聚酮合成的关键底物)的可用性来减少OTA产生。这一解释需要进一步验证。总体而言,这些结果与以下观点一致:OTA抑制不仅仅源于真菌生物量的减少,还源于氧化应激信号、线粒体代谢以及OTA基因簇(包括otaA、otaB和otaR1)转录调控的可能调节。
【数据】5%浓度:酸橙抑制OTA 25.81%,柠檬抑制52.65%;10%浓度:柠檬抑制100%,酸橙抑制85.23%;20%浓度:两者均100%抑制
讨论与解读
本研究显示,酸橙和柠檬的水醇提取物均可降低黑曲霉生长、产孢和OTA产量,其中柠檬表现出更强的抗赭曲霉毒素特征。观察到的OTA产量降低与otaA基因下调相关,为提取物的抗产毒效果提供了分子层面的支持。在硬粒小麦上的原位应用进一步表明,这些提取物可减少真菌污染和OTA积累,且不会对测定的谷物品质参数产生不利影响。这些发现支持柑橘副产物作为天然采后保护剂的潜在用途。然而,仍需开展包括纯化成分分析、更广泛真菌菌株面板和延长储存评估在内的额外研究,以证实活性化合物、评估该策略的普适性并验证其实际可行性。
编译者解读:该研究以柑橘加工废弃物为原料,将植物化学表征、体外活性、原位谷物保护和基因表达分析整合为一条完整证据链,方法学上颇具借鉴意义。其亮点在于用RT-qPCR将表型抑制锚定到otaA转录水平,避免了单纯以菌丝生长抑制推断抗产毒活性的常见误区。局限也很明显:仅测试一株黑曲霉菌株,活性成分未纯化验证,原位实验周期偏短。从合成生物学视角看,柑橘提取物本质上是多组分天然产物混合物,其协同机制尚不明确;若能结合合成生物学手段异源表达关键黄酮合成途径,或可摆脱原料季节性与批次差异的制约,实现活性分子的可控生产。
DOI: 10.1016/j.foodcont.2026.112329