来源:Secretory expression of a Bacillus subtilis R5-derived laccase in Pichia pastoris: A promising biocatalyst for the oxidative transformation of aflatoxins(Food Bioscience)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
黄曲霉毒素B1(AFB1)被国际癌症研究机构列为I类致癌物,全球约25%农产品每年受霉菌毒素污染。本研究从枯草芽孢杆菌R5中挖掘获得漆酶BSR5,在食品级宿主毕赤酵母中实现异源分泌表达。纯化酶在pH 6.0、80 °C条件下对AFB1展现最优活性,熔解温度达74.5 °C,80 °C半衰期2.3 h。BSR5-介体系统在40 min内转化约90%的AFB1(10 μg/mL),并可作用于AFB2、AFG1、AFG2、AFM1和AFM2等多种衍生物,主要转化产物被推测为AFQ1。通过信号肽工程与分子伴侣共表达,胞外漆酶产量提升至328 mg/L。
研究背景
据联合国粮农组织估计,全球每年约25%的农产品受到霉菌毒素污染。黄曲霉毒素是曲霉通过聚酮途径产生的次级代谢产物——黄曲霉主要产B1和B2,寄生曲霉则可同时产G型和B型毒素。在已报道的20余种黄曲霉毒素中,AFB1毒性最强。这些毒素通过受污染的食品和饲料进入食物链,对人和动物产生致突变、免疫毒性、致畸和致癌效应。发展中国家约45亿人面临AFB1污染食品的暴露风险,5%–28%的肝癌病例可归因于膳食黄曲霉毒素暴露。
过去二十年,研究者致力于利用微生物酶将黄曲霉毒素转化为无毒或低毒代谢物。该策略既能保持产品的感官品质和营养价值,又具备高效、特异和环境友好等优势。皇家DSM公司已开发并商业化相关产品。漆酶作为多铜氧化酶,在介体辅助下可氧化多种酚类和非酚类底物,为黄曲霉毒素的生物降解提供了可行路径。然而,饲料加工通常涉及高温环节,因此兼具热稳定性和高效降解能力的漆酶仍是稀缺资源。本研究从结构相似的已知漆酶出发,通过FoldSeek结构搜索挖掘候选酶,在毕赤酵母中表达并系统表征其酶学性质与黄曲霉毒素转化能力。
研究方法
2.1 试剂、质粒与菌株
本研究所用化学试剂和药品均为分析纯或更高级别,购自国药集团化学试剂有限公司(中国上海)、麦克林生化科技有限公司(中国上海)或Sigma-Aldrich公司(美国密苏里州圣路易斯)。霉菌毒素黄曲霉毒素B1(AFB1)购自Pribolab公司(中国山东)。限制性内切酶(DpnI)和质粒提取试剂盒购自碧云天生物技术公司(中国上海)。DNA聚合酶(PrimeSTAR Max)购自Takara公司(中国北京)。寡核苷酸合成和DNA测序服务由生工生物工程(上海)股份有限公司提供。质粒制备试剂盒购自天根生化科技(北京)有限公司。大肠杆菌DH5α菌株(用于质粒克隆和扩增)和毕赤酵母GS115菌株(用于蛋白表达)由本实验室保藏。pPIC9K和pPICZ(α)A质粒亦由本实验室保存。毕赤酵母GS115的ku70基因敲除菌株(GS115-ΔKU70)在本研究中构建(表1)。
【数据】试剂级别:分析纯或更高级别;AFB1来源:Pribolab;内切酶:DpnI;DNA聚合酶:PrimeSTAR Max;宿主菌:E. coli DH5α、P. pastoris GS115;质粒:pPIC9K、pPICZ(α)A;敲除菌株:GS115-ΔKU70
2.2 基因挖掘与系统发育分析
采用基于结构和序列的生物信息学方法挖掘具有AFB1降解能力的潜在漆酶基因。以已知具有AFB1降解活性漆酶的AlphaFold预测结构为查询序列,通过FoldSeek服务器(https://search.foldseek.com/search)进行结构相似性搜索。搜索在AlphaFold/UniProt50数据库中以TMalign模式进行。所得候选序列进一步使用EFI-酶相似性工具(EFI-EST)(https://efi.igb.illinois.edu/efi-est/)分析,以比对分数阈值60生成序列相似性网络(SSN)。SSN使用Cytoscape 3.10.1以yFiles Organic Layout进行可视化。基于结构的系统发育树使用Foldtree软件(https://github.com/DessimozLab/fold_tree)构建,并通过TVBOT网络服务(https://www.chiplot.online/tvbot.html)可视化。基于聚类和系统发育分析,选取推定漆酶基因BSR5(来源于枯草芽孢杆菌R5)和OCPI(来源于Virgibacillus sp. Bac330)进行后续实验研究。检索其完整编码序列(CDS)用于后续密码子优化和异源表达。
【数据】搜索工具:FoldSeek;数据库:AlphaFold/UniProt50;搜索模式:TMalign;SSN阈值:60;可视化软件:Cytoscape 3.10.1;候选基因:BSR5(Bacillus subtilis R5)、OCPI(Virgibacillus sp. Bac330)
2.3 ΔKU70菌株构建与基因克隆
ΔKU70菌株采用CRISPR/Cas9介导的基因组编辑策略在毕赤酵母GS115中构建。使用本实验室先前建立并保存的CRISPR/Cas9质粒作为基因组编辑载体。使用CHOPCHOP在线平台设计靶向ku70位点的向导RNA(gRNA),通过PCR克隆替换原始gRNA序列导入CRISPR/Cas9质粒。对于同源定向修复(HDR),从毕赤酵母GS115基因组DNA中扩增ku70编码区上下游各约1000 bp序列作为同源臂,构建供体DNA片段。将重组CRISPR/Cas9质粒和HDR供体DNA通过电穿孔共转化至毕赤酵母GS115细胞。分离阳性转化子并通过DNA测序验证。所得ΔKU70菌株用作后续异源表达和分泌工程研究的宿主。bsr5编码序列在其C端融合6×His标签,以便对分泌酶进行亲和纯化。
【数据】编辑策略:CRISPR/Cas9;gRNA设计平台:CHOPCHOP;同源臂长度:约1000 bp;标签:C端6×His;转化方法:电穿孔
2.4 培养与生长条件
重组pPIC9K-bsr5质粒在转化前用SacI限制性内切酶线性化。将线性化构建体通过电穿孔导入毕赤酵母GS115和GS115-ΔKU70菌株。简要流程:将10 μL线性化质粒DNA与100 μL感受态细胞在冰上混合,孵育5–15 min。预冷电击杯彻底干燥去除残留水分,将细胞-DNA混合物转移至准备好的电击杯中。使用基因脉冲系统进行电穿孔,参数如下:电压1500 V,电阻200 Ω,电容25 μF。脉冲后立即向电击杯中加入1 mL冰冷无菌1 M山梨醇溶液,通过移液轻轻重悬细胞。将全部悬液无菌转移至无菌1.5 mL微量离心管中,30 °C、220 rpm振荡孵育2 h以恢复细胞并表达表型。将转化混合物涂布于MD培养基平板(1.34%酵母氮源(YNB)、2%葡萄糖、4×10⁻⁵%生物素)上,筛选在组氨酸营养缺陷型背景中成功整合异源基因的阳性转化子。将MD平板上生长的单菌落接种至BMGY培养基(1%酵母提取物、2%蛋白胨、1.34% YNB、2%甘油、0.1 M磷酸钾缓冲液,pH 6.0)中,30 °C、220 rpm培养24 h进行预培养。离心收集细胞,用无菌水洗涤,重悬于BMMY培养基(与BMGY相同,但以2%甲醇替代甘油)。将细胞悬液转移至摇瓶,28 °C(AOX1表达系统的常规诱导温度)、220 rpm培养。对甲醇浓度进行了优化(见补充信息,图S1);每24 h添加优化终浓度1.0%的甲醇以维持诱导。离心(8000 rpm,10 min)收集培养上清液用于后续酶活测定和降解实验。
【数据】线性化酶:SacI;质粒DNA量:10 μL;感受态细胞量:100 μL;冰上孵育:5–15 min;电穿孔参数:1500 V、200 Ω、25 μF;恢复条件:30 °C、220 rpm、2 h;MD培养基:1.34% YNB、2%葡萄糖、4×10⁻⁵%生物素;BMGY:1%酵母提取物、2%蛋白胨、1.34% YNB、2%甘油、0.1 M磷酸钾缓冲液、pH 6.0;预培养:30 °C、220 rpm、24 h;诱导培养基:BMMY(2%甲醇);诱导温度:28 °C;转速:220 rpm;甲醇终浓度:1.0%(每24 h添加);离心条件:8000 rpm、10 min
2.5 重组BSR5的纯化
离心(8000 rpm,10 min,4 °C)收集培养上清液,经0.22-μm膜过滤。澄清上清液通过10-kDa截留膜超滤置换至结合缓冲液(50 mM Tris-HCl、500 mM NaCl、pH 7.3),上样至经相同缓冲液预平衡的Ni²⁺-NTA柱。用10倍柱体积结合缓冲液洗涤后,再用含40 mM咪唑的洗涤缓冲液洗涤,目标蛋白用洗脱缓冲液(50 mM Tris-HCl、500 mM NaCl、500 mM咪唑、pH 7.3)洗脱,收集具有漆酶活性的组分。纯化蛋白在SDS-PAGE上显示为单一条带,表观分子量约65 kDa(图S5和S6),略大于成熟蛋白的理论分子量(59 kDa),可能是由于在毕赤酵母中的糖基化所致。蛋白浓度采用Bradford法以牛血清白蛋白为标准品测定。
【数据】离心条件:8000 rpm、10 min、4 °C;过滤膜:0.22-μm;超滤截留:10-kDa;结合缓冲液:50 mM Tris-HCl、500 mM NaCl、pH 7.3;洗涤咪唑浓度:40 mM;洗脱缓冲液:50 mM Tris-HCl、500 mM NaCl、500 mM咪唑、pH 7.3;表观分子量:约65 kDa;理论分子量:59 kDa;蛋白定量方法:Bradford法
2.6 pH和温度对酶活的影响
BSR5漆酶的最适pH使用乙酸缓冲液(pH 3.0–6.0,50 mM)、磷酸缓冲液(PBS,pH 6.0–7.0,50 mM)和Tris-HCl缓冲液(pH 7.0–10.0,50 mM)测定。最适温度在30 °C至90 °C范围内测定活性。以最适条件下的活性设为100%计算相对活性。
【数据】缓冲液:乙酸缓冲液(pH 3.0–6.0,50 mM)、PBS(pH 6.0–7.0,50 mM)、Tris-HCl(pH 7.0–10.0,50 mM);温度范围:30–90 °C;相对活性基准:最适条件设为100%
2.7 酶活测定与HPLC分析
酶活采用底物消耗法测定。反应混合物含10 μg/mL AFB1、0.5 mmol/L ABTS和1 mmol/L Cu²⁺,溶于50 mM乙酸缓冲液(pH 6.0)。AFB1储备液用乙腈配制,稀释至反应缓冲液中使最终乙腈含量不超过5%(v/v)。反应在80 °C保持40 min,用乙腈终止。反应后通过HPLC测定残留AFB1,基于底物减少量计算酶活。HPLC分析使用Waters ACQUITY HPLC系统,配备ph...
【数据】AFB1浓度:10 μg/mL;ABTS浓度:0.5 mmol/L;Cu²⁺浓度:1 mmol/L;缓冲液:50 mM乙酸缓冲液、pH 6.0;乙腈终含量:≤5%(v/v);反应温度:80 °C;反应时间:40 min;终止方式:乙腈;检测方法:HPLC
研究结果
3.1 重组酶的构建与表达
漆酶(Lac)是去除污染饲料基质中霉菌毒素的可靠生物催化剂,尤其在介体存在下降解AFB1。本研究采用图1所示的工作流程挖掘和表达饲料适用的漆酶。首先,以CotA的X射线晶体结构(PDB: 9BD5)为模板,在Foldseek服务器(https://search.foldseek.com/search)中搜索潜在的AFB1降解漆酶。结果从AlphaFold/Uniprot50数据库中获得1002个候选酶。为缩小搜索空间,使用EFI-EST工具进一步分析这些候选酶。通过限制蛋白序列长度在450–550个氨基酸范围内,最终数据集缩减至385个候选酶。随后,通过EFI-EST工具中的SSN模块对385个候选酶进行酶聚类分析,将候选酶聚为三组(图1A)。主要簇(Cluster 3)包含探针酶CotA。据此,基于与CotA的高结构相似性,从Cluster 3中选取两个推定漆酶BSR5(蛋白登录号:BBF67783.1)和OCPI(蛋白登录号:GAQ19688.1)。系统发育分析进一步显示,BSR5和OCPI与CotA聚类在同一分支,提示这些候选酶可能具有可比的催化能力。
为表达这两个推定漆酶,对BSR5和OCPI的序列进行密码子优化以适应GRAS菌株毕赤酵母的表达,然后构建至pPIC9k质粒。将重组质粒转化至毕赤酵母GS115和ku70缺失毕赤酵母GS115菌株(GS115-ΔKU70)。毕赤酵母中ku70的缺失可提高基因靶向效率,所得菌株在葡萄糖和甲醇上的生长与GS115相当(图1B)。在168 h培养过程中,推定漆酶被表达并用于降解AFB1。如图1C所示,毕赤酵母GS115的密度在培养96 h后保持稳定。发酵液上清用于评估推定漆酶的活性,基于其降解AFB1的能力。培养24 h后,BSR5发酵液上清在介体ABTS存在下实现约30%的AFB1降解。96 h后,AFB1降解率增至98%,此后维持该水平,后期发酵时间无显著变化。然而,OCPI发酵液对AFB1未检测到降解活性,与GS115对照相同。因此,选择候选酶BSR5在GS115-ΔKU70中进行下一步发酵(图1D)。值得注意的是,BSR5在GS115-ΔKU70中表达的生长和酶活与在GS115中观察到的相同。因此,GS115-ΔKU70-BSR5菌株用于后续表征和分泌优化。
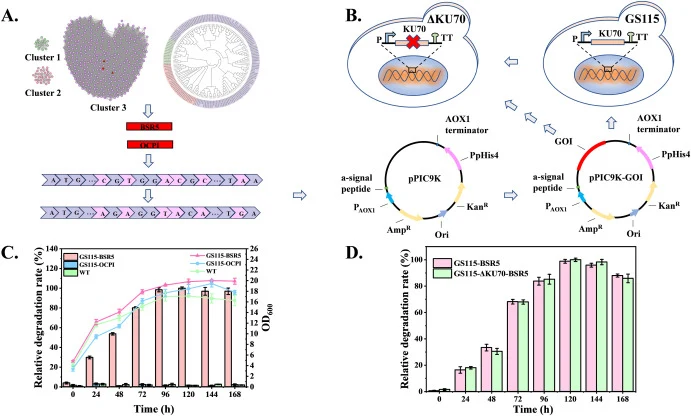
【数据】模板结构:CotA(PDB: 9BD5);候选酶总数:1002个;序列长度筛选范围:450–550 aa;最终候选酶:385个;聚类数:3组;选取基因:BSR5(BBF67783.1)、OCPI(GAQ19688.1);培养时间:168 h;GS115密度稳定时间:96 h;24 h BSR5降解率:约30%;96 h降解率:98%;OCPI降解活性:未检出
3.2 pH、温度和金属离子对酶活的影响
本研究通过考察各种环境因素对酶活的影响来评价重组漆酶的催化特性。使用不同pH缓冲液,包括乙酸缓冲液(pH 3.0–6.0)、磷酸缓冲液(PBS,pH 6.0–7.0)和Tris-HCl缓冲液(pH 7.0–10.0)。如图2A所示,该酶在pH 4.0–10.0的宽范围内表现催化活性,最适反应pH为6.0。已有研究发现许多真菌来源漆酶在酸性条件下活性较高,而细菌漆酶通常具有强耐碱性。这种pH依赖性通常与酶活性中心关键氨基酸残基的电离状态密切相关,进而决定酶与底物的结合亲和力。重组细菌漆酶的最适反应温度为80 °C(图2B)。实验结果表明,重组漆酶的催化活性受金属阳离子存在的显著影响(图2E)。值得注意的是,在无金属离子条件下,该酶表现出可忽略的催化活性。添加Cu²⁺导致催化性能大幅提升,而Ca²⁺和Al³⁺仅显示轻微激活作用。相反,其他离子包括K⁺、Na⁺、Mg²⁺、Mn²⁺、Zn²⁺和Fe²⁺对酶活无显著影响。这种对Cu²⁺的强烈依赖与先前报道的几种在异源宿主中表达的重组漆酶特征高度一致,如来自枯草芽孢杆菌的BsCotA和来自黑曲霉的AnLI,其中铜离子对于维持T1铜中心的结构完整性和促进霉菌毒素降解过程中的高效电子传递至关重要。
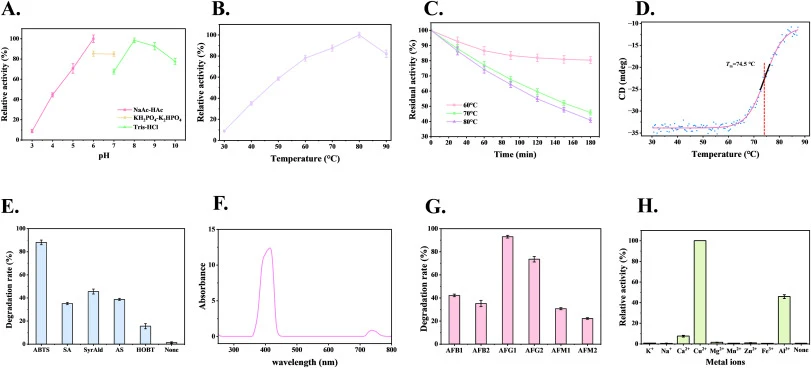
【数据】pH范围:4.0–10.0;最适pH:6.0;最适温度:80 °C;无金属离子活性:可忽略;Cu²⁺效应:大幅提升;Ca²⁺、Al³⁺效应:轻微激活;K⁺、Na⁺、Mg²⁺、Mn²⁺、Zn²⁺、Fe²⁺效应:无显著影响
3.3 热稳定性与动力学参数
为在结构层面进一步证实热稳定性,通过CD光谱监测纯化BSR5的热去折叠过程。222 nm处的CD信号随温度升高呈协同下降,得到熔解温度(T m)为74.5 °C(图2C),表明BSR5在其最适反应温度(80 °C)附近仍保持天然折叠。BSR5的热失活遵循一级动力学(70和80 °C下R² > 0.99)。在60、70和80 °C下测定了失活速率常数(k d)和半衰期(t 1/2)(图2D)。BSR5在60 °C下半衰期为9.9 h,70 °C下为2.8 h,80 °C下为2.3 h,在60 °C下3 h后保留约80%残余活性,80 °C下3 h后保留41%。与先前表征的热稳定细菌漆酶相比,BSR5在80 °C下的t 1/2(2.3 h)与经典枯草芽孢杆菌CotA(约1.9 h;稳定因子SF ≈ 1.25)相当且略优,并大幅超越地衣芽孢杆菌CotA(80 °C下1 h后仅保留8%活性)。然而,BSR5的热稳定性低于极端嗜热漆酶,如天蓝色链霉菌SLAC(80 °C下t 1/2 > 10 h)和Geobacillus sp. WSUCF1漆酶(70 °C下t 1/2 = 72 h)。总体而言,这些结果表明BSR5是一种稳健的热稳定芽孢杆菌CotA型漆酶,其T m(74.5 °C)和80 °C半衰期(2.3 h)与表征最充分的同源物CotA一致且适度更优,而非异常热稳定。
除热稳定性外,进一步对BSR5的催化效率和底物范围进行了基准评价。通过拟合Michaelis-Menten方程测定BSR5对ABTS的动力学参数(图S3)。K m和V max值分别为202.2 ± 24.1 μM和27.7 ± 1.0 μM/min。转换数(k cat)为2.72 s⁻¹,对应催化效率(k cat/K m)为1.35 × 10⁴ M⁻¹·s⁻¹(图S3)。BSR5对ABTS的催化效率低于经典枯草芽孢杆菌CotA(约1.6 × 10⁵ M⁻¹·s⁻¹)。
【数据】T m:74.5 °C;动力学级数:一级(R² > 0.99 at 70和80 °C);t 1/2:60 °C为9.9 h、70 °C为2.8 h、80 °C为2.3 h;残余活性:60 °C 3 h约80%、80 °C 3 h为41%;CotA对比t 1/2:约1.9 h(SF ≈ 1.25);K m:202.2 ± 24.1 μM;V max:27.7 ± 1.0 μM/min;k cat:2.72 s⁻¹;k cat/K m:1.35 × 10⁴ M⁻¹·s⁻¹;CotA k cat/K m:约1.6 × 10⁵ M⁻¹·s⁻¹
3.4 LMS对AFB1及其衍生物降解的影响
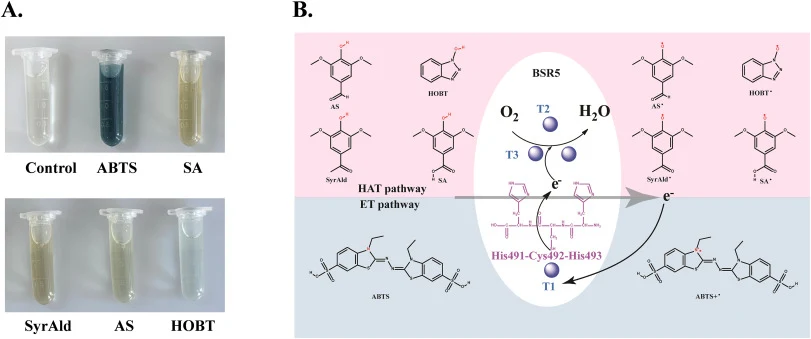
尽管BSR5的热稳定性先前已有表征,但其转化黄曲霉毒素的能力尚未被探索。AFB1及其衍生物的去除在BSR5的最适条件下进行(温度80 °C,pH 6.0)。在天然介体(SA、SyrAld和AS)和合成介体(ABTS、HOBT)存在下,比较了BSR5对AFB1的降解能力,如图2F所示。在无介体...
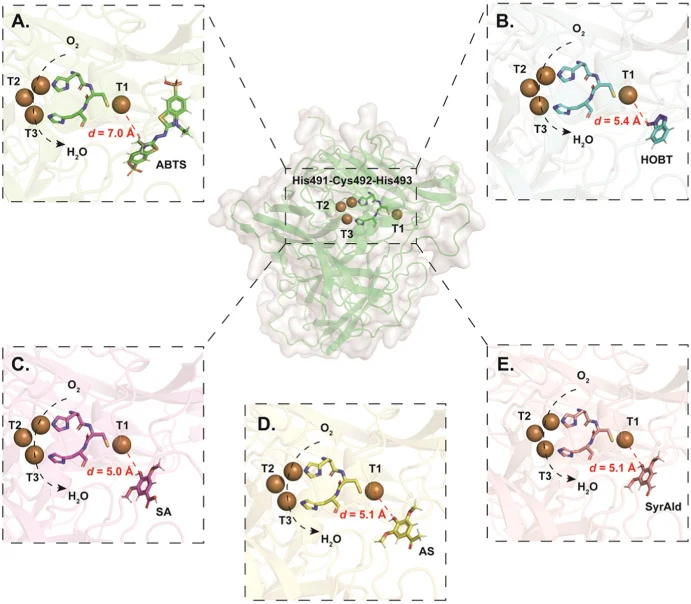
【数据】反应温度:80 °C;反应pH:6.0;测试介体:SA、SyrAld、AS(天然)、ABTS、HOBT(合成);原文此段后续数据未详述
讨论与解读
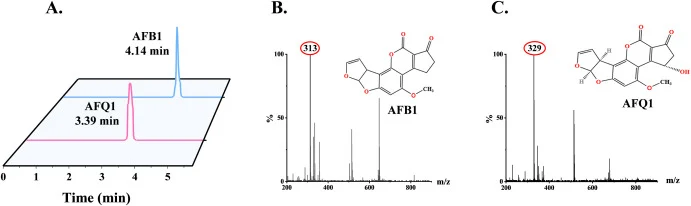
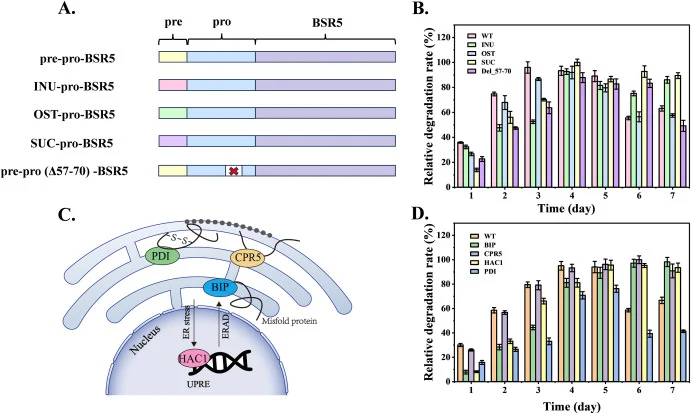
本研究首次在食品级宿主毕赤酵母中实现枯草芽孢杆菌R5漆酶的分泌表达,并通过信号肽工程和分子伴侣共表达将分泌量提升至328 mg/L(HAC1共表达,提升1.53倍)。纯化酶具有热稳定性(T m = 74.5 °C;80 °C下t 1/2 = 2.3 h)。在测试的五种介体(SA、AS、SyrAld、HOBT和ABTS)中,ABTS对AFB1去除最有效。在此条件下,BSR5-ABTS系统在40 min内转化约90%的AFB1(10 μg/mL),同时也可转化AFB2、AFG1、AFG2、AFM1和AFM2。AFB1的主要转化产物被初步鉴定为AFQ1,一种据报道毒性低于AFB1的代谢物。由于未进行直接毒性试验,本研究仅证明了黄曲霉毒素的转化而非脱毒。此外,所有实验均在缓冲液中进行,在实际食品或饲料基质中的验证有待未来研究。
编译者解读: 该研究的方法论价值在于"结构搜索→序列聚类→异源表达→介体筛选"的快速挖掘路径,将未知功能的漆酶候选从千余个缩减至两个并验证其一。BSR5的80 °C最适温度和2.3 h半衰期契合饲料制粒的工艺窗口,这是其区别于多数真菌漆酶的核心优势。但需清醒看到:催化效率(1.35 × 10⁴ M⁻¹·s⁻¹)仅为经典CotA的约十分之一,且介体ABTS本身成本高、有潜在毒性,工业可行性存疑。AFQ1的毒性仅凭文献推测而无实验验证,是走向应用前必须补齐的关键证据链。
参考来源
期刊:Food Bioscience, 2026
DOI: 10.1016/j.fbio.2026.110088
DOI: 10.1016/j.fbio.2026.110088