来源:Coupling fatty acid biosynthesis to β-oxidation enhances the biosynthesis of malonyl-CoA-dependent polyketides(Metabolic Engineering)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
丙二酰辅酶A是聚酮合成的核心延伸单元,但在大肠杆菌中主要被脂肪酸合成消耗。本研究设计了一条脂肪酸合成–β-氧化碳回收通路(FABOX通路),将进入脂肪酸合成的碳流导向游离脂肪酸,再经β-氧化回收为乙酰辅酶A,从而支撑丙二酰辅酶A依赖型聚酮的合成。该策略在AQ256和间苯三酚中提升产量,对黄酮木素无效,13C-丙二酸示踪支持碳回收机制。
研究背景
聚酮是一类重要的生物活性天然产物,涵盖药物、色素、染料和功能材料。其结构多样性和生物活性使其成为代谢工程与合成生物学的重要目标。聚酮合酶(PKS)按结构组织分为I、II、III型,但共享同一合成原理:通过延伸单元脱羧缩合延伸碳链。丙二酰辅酶A是最广泛使用的延伸单元,其胞内可用性成为丙二酰辅酶A依赖型聚酮生产的关键限制因素。
大肠杆菌因生长快、遗传可操作性强而被广泛用作生产宿主。在大肠杆菌中,丙二酰辅酶A是脂肪酸合成的必需前体,其胞内浓度受到严格调控并维持在较低水平。因此,外源引入的聚酮途径与脂肪酸合成直接竞争丙二酰辅酶A,构成聚酮生产的 major 瓶颈。本研究提出将脂肪酸合成与β-氧化耦合的碳回收策略,以缓解这一竞争。
研究方法
2.1 菌株与培养条件
本研究使用的大肠杆菌菌株列于补充表1。大肠杆菌DH5α用于质粒构建和扩增。细胞在LB培养基(10 g/L胰蛋白胨、5 g/L酵母提取物、5 g/L NaCl;Nacalai Tesque,京都,日本)中培养,并添加适当抗生素。为评估培养条件,还使用了2×YT培养基(16 g/L胰蛋白胨、10 g/L酵母提取物、5 g/L NaCl)和SB培养基(33 g/L胰蛋白胨、20 g/L酵母提取物、7.5 g/L NaCl)。抗生素终浓度分别为50 μg/mL氯霉素、30 μg/mL卡那霉素、50 μg/mL壮观霉素和100 μg/mL氨苄青霉素。培养物在37 °C、200 rpm振荡条件下孵育。
【数据】培养基:LB(10 g/L胰蛋白胨、5 g/L酵母提取物、5 g/L NaCl);抗生素浓度:氯霉素50 μg/mL、卡那霉素30 μg/mL、壮观霉素50 μg/mL、氨苄青霉素100 μg/mL;温度:37°C;转速:200 rpm
2.2 质粒构建
用于菌株构建的质粒和本研究所用PCR引物分别列于补充表2和补充表3。克隆过程中产生的中间质粒在相关处描述于补充信息中。详细的克隆步骤、所用限制酶、引物序列、引入的突变和合成基因设计描述于补充信息中。为引入AQ256生物合成途径,将来自Photorhabdus laumondii TTO1的antA-I基因分为两个操纵子(antA-C和antD-I),置于T7启动子控制下,构建pACYC-AQ256(Cummings et al., 2019; Suematsu et al., 2025)。为增强丙二酰辅酶A和CoA供应,构建了携带来自Corynebacterium glutamicum的Cg-acc和来自Pseudomonas putida的Pp-coaA的pET-Acc-CoaA。对于丙二酸同化途径,如前所述构建了携带来自Malonomonas rubra的madLM的pMW219-MadLM和携带来自Bradyrhizobium japonicum的mcs的pET-MCS(Suematsu et al., 2025)。本研究中通过将mcs引入pET-Acc-CoaA构建了pET-Acc-CoaA-MCS。对于III型PKS表达,构建了携带来自Pseudomonas protegens的phlD的pACYC-PhlD和携带来自Streptomyces griseus的rppA的pACYC-RppA。为促进游离脂肪酸生成并增强β-氧化,构建了pCDF-'TesA、pCDF-FadD和pCDF-'TesA-FadD以表达来自大肠杆菌K-12的'tesA和/或fadD。此外,构建了pCDF-FadDEBA和pCDF-'TesA-FadDEBA以共表达来自大肠杆菌K-12的fadD、fadE和fadBA,并构建了pCDF-'TesA-FadEBA以共表达来自大肠杆菌K-12的'tesA、fadE和fadBA。为评估脂肪酸产量水平和链长组成改变的效果,构建了三个基于硫酯酶的系统。第一,生成pCDF-'AbTEm及其衍生物(pCDF-'AbTEm-FadEBA和pCDF-'AbTEm-FadDEBA)。'AbTE突变体是源自Acinetobacter baylyi AbTE的修饰脂肪酸酰基-ACP硫酯酶,缺失N端信号肽并携带G17R和A165R突变,据报道可高效生产分泌型中长链脂肪酸(C8-C18)(Sarria et al., 2018)。第二,构建pCDF-CpFatB1、pCDF-CpFatB1-FadEBA和pCDF-CpFatB1-FadDEBA。CpFatB1突变体是源自Cuphea palustris的修饰C8特异性脂肪酸酰基-ACP硫酯酶,据报道可高效生产分泌型C8脂肪酸(Hernández Lozada et al., 2018)。第三,构建pCOLA-MvFAS-7和pCOLA-acpS-MvFAS-7。MvFAS-7源自Mycolicibacterium vaccae,在丙二酰/棕榈酰转移酶(MPT)结构域携带R1475K,在酮基合成酶(KS)结构域携带G2684S和M2685W突变,此前报道这些突变可在酿酒酵母中高效胞外生产中等链长脂肪酸(C6-C12)(Zhu et al., 2020)。
【数据】质粒:pACYC-AQ256、pET-Acc-CoaA、pMW219-MadLM、pET-MCS、pET-Acc-CoaA-MCS、pACYC-PhlD、pACYC-RppA、pCDF-'TesA、pCDF-FadD、pCDF-'TesA-FadD、pCDF-FadDEBA、pCDF-'TesA-FadDEBA、pCDF-'TesA-FadEBA、pCDF-'AbTEm、pCDF-'AbTEm-FadEBA、pCDF-'AbTEm-FadDEBA、pCDF-CpFatB1、pCDF-CpFatB1-FadEBA、pCDF-CpFatB1-FadDEBA、pCOLA-MvFAS-7、pCOLA-acpS-MvFAS-7;突变:G17R、A165R、R1475K、G2684S、M2685W;基因来源:Photorhabdus laumondii TTO1、Corynebacterium glutamicum、Pseudomonas putida、Malonomonas rubra、Bradyrhizobium japonicum、Pseudomonas protegens、Streptomyces griseus、大肠杆菌K-12、Acinetobacter baylyi、Cuphea palustris、Mycolicibacterium vaccae
2.3 突变大肠杆菌菌株的构建
删除编码细胞分裂抑制剂的sulA基因以促进基因组编辑(Jiang et al., 2015)。用于菌株构建的供体DNA和引物序列列于补充表4。基于CRISPR/Cas9方法构建BL21(DE3)ΔsulA菌株(Jiang et al., 2015)。使用pEcCas9-RED连同指导RNA质粒和编辑供体DNA(sulA dsOligo)进行sulA的染色体中断。质粒消除后,确认氨苄青霉素和卡那霉素敏感性以获得BL21(DE3)ΔsulA。随后,使用λ-Red重组在BL21(DE3)ΔsulA背景中将fadR替换为卡那霉素抗性盒(Datsenko and Wanner, 2000)。通过FLP重组酶去除抗性盒,得到BL21(DE3)ΔsulAΔfadR。通过菌落PCR和Sanger测序验证基因修饰。质粒构建、供体DNA设计和基因组编辑的详细步骤描述于补充信息中。
【数据】菌株:BL21(DE3)ΔsulA、BL21(DE3)ΔsulAΔfadR;方法:CRISPR/Cas9、λ-Red重组、FLP重组酶;验证:菌落PCR、Sanger测序;抗性:氨苄青霉素、卡那霉素
2.4 菌株构建
通过电穿孔将质粒引入BL21(DE3)或BL21(DE3)ΔsulAΔfadR(Green and Sambrook, 2012)。本研究中生成的菌株列于补充表1。
【数据】方法:电穿孔;宿主:BL21(DE3)、BL21(DE3)ΔsulAΔfadR
2.5 分批发酵
基于先前报道的方法进行分批培养(Suematsu et al., 2025)。预培养物在添加适当抗生素的LB培养基中于37 °C、200 rpm振荡培养过夜。将过夜预培养物接种到含抗生素和0.1 M MOPS(pH 7.0)的35 mL LB培养基中,初始OD600为0.05,于37 °C振荡培养。当培养物达到对数中期(OD600 = 0.6-0.8)时,加入0.1 mM IPTG。在指示处,与IPTG诱导同时加入10 g/L葡萄糖或22 mM丙二酸二钠(TCI Chemicals,东京,日本)。随后将培养温度切换至20 °C,继续以180 rpm振荡培养。在IPTG加入后9、24、48、72和96 h收集样品。对于在限定M9培养基中的培养,通过离心收获过夜预培养物以去除LB培养基,并重悬于M9培养基中。将所得细胞悬液接种到补充有适当抗生素、10 g/L葡萄糖、维生素和微量金属的35 mL M9培养基中,初始OD600为0.2,于37 °C振荡培养。当培养物达到对数中期(OD600 = 0.6-0.8)时,加入0.1 mM IPTG。随后将培养温度切换至20 °C,继续以180 rpm振荡培养。在IPTG加入后24、48和72 h收集样品。为评估间苯三酚生产的培养条件,比较了LB、2×YT和SB培养基。还评估了葡萄糖和甘油浓度、基于MOPS的pH控制和培养温度的影响。限定M9培养基的详细组成提供于补充信息中。
【数据】培养基:LB + 0.1 M MOPS(pH 7.0)、M9 + 10 g/L葡萄糖 + 维生素 + 微量金属、2×YT、SB;初始OD600:0.05(LB)、0.2(M9);诱导:OD600 0.6-0.8时加入0.1 mM IPTG;添加物:10 g/L葡萄糖或22 mM丙二酸二钠;温度:37°C(生长)、20°C(诱导后);转速:200 rpm(预培养)、180 rpm(诱导后);取样时间:9、24、48、72、96 h(LB)、24、48、72 h(M9)
2.6 细胞干重测定
通过收集1.0 mL或0.75 mL培养物,用Milli-Q水洗涤细胞,并使用真空冷冻干燥机(FreeZone 2.5 Plus系统,Labconco,堪萨斯城,MO,美国)干燥至恒重来测定细胞干重(DCW)。DCW(mg-DCW/mL)由测量的干重计算。
【数据】样品体积:1.0 mL或0.75 mL;洗涤:Milli-Q水;仪器:FreeZone 2.5 Plus真空冷冻干燥机;单位:mg-DCW/mL
2.7 AQ256、间苯三酚和黄酮木素的分析
AQ256的提取和分析按照先前报道的方法进行(Suematsu et al., 2025)。使用Cosmosil 5C18-AR II柱(2.0 mm × 150 mm)(Nacalai Tesque, Inc.,京都,日本)通过HPLC分析AQ256,柱温箱设定为40 °C。样品进样体积为10 μL。流动相由乙腈(A)和0.1%甲酸水溶液(B)组成,流速为0.3 mL/min。梯度程序从40% A开始2 min,在10 min内增加至98% A,保持2 min,在1 min内返回40% A,并维持20 min。检测波长为284 nm。合成AQ256参考标准品购自ChemSpace(里加,拉脱维亚),其结构经NMR验证。培养物来源的AQ256基于与相同HPLC条件下分析的参考标准品匹配的保留时间进行鉴定。AQ256使用校准曲线定量制备。
【数据】色谱柱:Cosmosil 5C18-AR II(2.0 mm × 150 mm);柱温:40°C;进样体积:10 μL;流动相:乙腈(A)、0.1%甲酸水溶液(B);流速:0.3 mL/min;梯度:40% A 2 min → 98% A 10 min → 保持2 min → 40% A 1 min → 维持20 min;检测波长:284 nm;标准品:ChemSpace合成AQ256,NMR验证
研究结果
3.1 脂肪酸合成与β-氧化的工程化
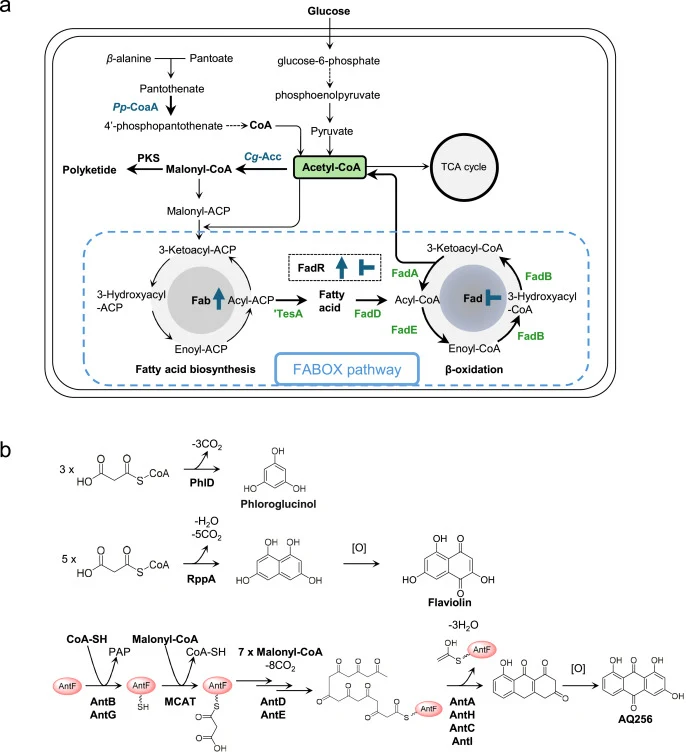
为测试将脂肪酸合成与β-氧化耦合是否能增强丙二酰辅酶A依赖型聚酮的生物合成,我们聚焦于大肠杆菌中由模型PKS生产的三种聚酮,它们均使用丙二酰辅酶A衍生的延伸单元作为生物合成砌块。这些包括III型聚酮间苯三酚(Achkar et al., 2005; Zha et al., 2009)和黄酮木素(Funa et al., 1999),分别由三个和五个丙二酰辅酶A单元组装而成,以及II型聚酮1,3,8-三羟基蒽醌(AQ256)(Bräuer et al., 2020; Cummings et al., 2019),由八个丙二酰辅酶A单元组装而成(图1b)。我们首先选择AQ256作为模型化合物,逐步引入遗传修饰以评估其对产量和胞内代谢状态的影响,旨在建立FABOX通路。
为建立AQ256生产的基线,我们构建了pACYC-AQ256,其中来自Photorhabdus laumondii TTO1的antA-I基因簇置于T7启动子下(Cummings et al., 2019; Suematsu et al., 2025)。将该质粒引入大肠杆菌BL21(DE3)生成菌株AQ-1,其在补充10 g/L葡萄糖(55 mM)的LB培养基中培养72 h后产生0.4 ± 0.1 mg/g-DCW AQ256(图2a)。
为建立用于评估FABOX通路的前体供应增强背景,我们通过引入来自Corynebacterium glutamicum的Acc(Cg-Acc)增强乙酰辅酶A向丙二酰辅酶A的转化,该酶在用于异源PKS基聚酮生产的低温条件下保留活性(Kaku et al., 2022)。由于AQ256生物合成需要ACP磷酸泛酰巯基乙胺化,且β-氧化通过CoA连接的中间体进行(图1),我们还通过引入来自Pseudomonas putida的泛酸激酶(Pp-CoaA)增强CoA供应,该酶对CoA代谢物的反馈抑制不敏感(Ogata and Chohnan, 2015; Satoh et al., 2020)。在AQ-1中共表达Cg-acc(accBC、accE和dtsR1)和Pp-coaA生成AQ-2,将AQ256产量提高至1.2 ± 0.1 mg/g-DCW,相当于比AQ-1增加3.0倍(图2a)。这些结果表明,增强丙二酰辅酶A和CoA供应改善了AQ256生产。
【数据】菌株:AQ-1、AQ-2;质粒:pACYC-AQ256、pET-Acc-CoaA;基因:antA-I、Cg-acc(accBC、accE、dtsR1)、Pp-coaA;AQ-1产量:0.4 ± 0.1 mg/g-DCW(72 h);AQ-2产量:1.2 ± 0.1 mg/g-DCW;倍数:3.0倍;培养基:LB + 10 g/L葡萄糖(55 mM);时间:72 h
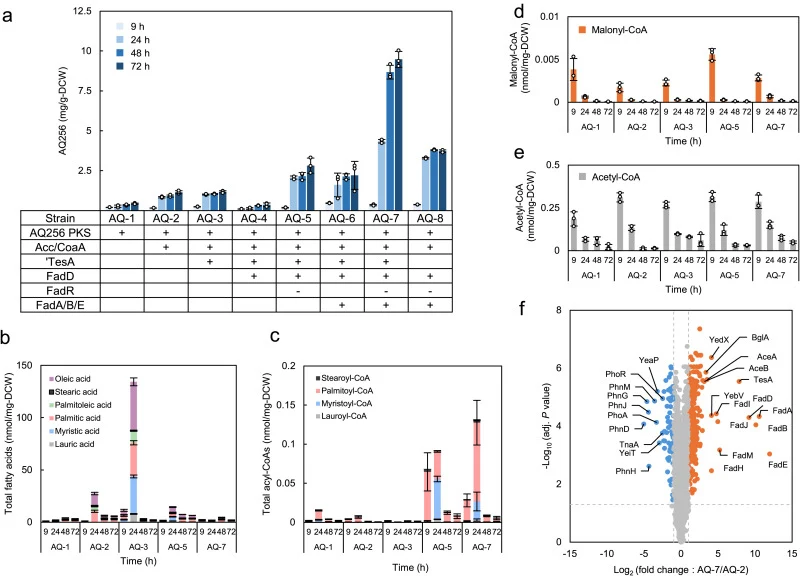
接下来,为将进入脂肪酸合成的碳流导向游离脂肪酸形成,我们将大肠杆菌K-12来源的'tesA引入AQ-2,生成AQ-3。'TesA是内源硫酯酶TesA的N端信号肽缺失胞质变体,可水解脂肪酸酰基-ACP中间体以产生游离脂肪酸(Cho and Cronan, 1995; Davis et al., 2000)。AQ-3中AQ256产量与AQ-2相当(图2a),尽管胞内游离脂肪酸水平短暂增加(图2b)。因此,仅游离脂肪酸形成不足以增加AQ256产量,表明下游酰基辅酶A形成和β-氧化可能限制碳回收。
为将游离脂肪酸中的碳回收到中心代谢,我们接下来在AQ-3中增强β-氧化。我们通过单独或组合过表达来自大肠杆菌K-12的β-氧化基因(β-氧化子集;fadA、fadB、fadD和fadE),并伴随或不伴随转录抑制基因fadR的删除(ΔfadR),构建了AQ-4至AQ-8。单独过表达fadD(AQ-4)增加了FadD介导的游离脂肪酸向酰基辅酶A的转化,将AQ256产量降低至与AQ-1相似的水平(图2a),表明仅酰基辅酶A形成不足以有效支持向AQ256生物合成的碳回收。在AQ-4背景中,ΔfadR(AQ-5)和过表达fadA、fadB和fadE(AQ-6)分别将AQ256产量提高至2.8 ± 0.5和2.2 ± 0.9 mg/g-DCW,均高于AQ-3(图2a)。将ΔfadR与过表达fadA、fadB和fadE结合生成AQ-7,其携带完整的FABOX通路。AQ-7产生9.5 ± 0.5 mg/g-DCW AQ256(49.4 ± 2.0 mg/L;比AQ-3高8.1倍),代表工程菌株中最高的AQ256产量。在AQ-8中去除'tesA过表达将AQ256产量降低至3.7 ± 0.1 mg/g-DCW,尽管产量仍高于AQ-3(图2a)。类似地,从AQ-7中去除fadD过表达生成AQ-21,其产生2.5 ± 0.1 mg/g-DCW AQ256(补充图1)。在分析的菌株(AQ-1、AQ-2、AQ-3、AQ-5和AQ-7)中,细胞干重和残留葡萄糖水平无显著差异(补充图2a和b),表明脂肪酸合成与β-氧化的功能整合未损害细胞生长或葡萄糖消耗。胞内代谢物分析显示,在AQ-3中观察到的游离脂肪酸短暂增加在AQ-5和AQ-7中被抑制(图2b),而酰基辅酶A水平显著增加(图2c)。相比之下,丙二酰辅酶A和乙酰辅酶A水平在分析菌株间无显著差异,且与AQ256产量无直接相关性(图2d、e)。
【数据】菌株:AQ-3、AQ-4、AQ-5、AQ-6、AQ-7、AQ-8、AQ-21;基因:'tesA、fadD、fadA、fadB、fadE、fadR;AQ-3产量:与AQ-2相当;AQ-4产量:与AQ-1相似;AQ-5产量:2.8 ± 0.5 mg/g-DCW;AQ-6产量:2.2 ± 0.9 mg/g-DCW;AQ-7产量:9.5 ± 0.5 mg/g-DCW(49.4 ± 2.0 mg/L),比AQ-3高8.1倍;AQ-8产量:3.7 ± 0.1 mg/g-DCW;AQ-21产量:2.5 ± 0.1 mg/g-DCW;代谢物:酰基辅酶A增加,丙二酰辅酶A和乙酰辅酶A无显著差异
为在限定培养基条件下进一步评估FABOX通路的效果,将AQ-1、AQ-2和AQ-7在补充10 g/L葡萄糖、维生素和微量金属的限定M9培养基中培养。在M9条件下,AQ-7也显示出比AQ-2更高的AQ256产量,72 h达到4.22 ± 0.13 mg/g-DCW,而AQ-2为2.23 ± 0.06 mg/g-DCW,相当于1.9倍增加(补充图3a)。AQ-7在24和48 h的细胞干重低于AQ-1和AQ-2,但在72 h增加至2.05 ± 0.06 g/L,达到与AQ-2相当的水平(2.13 ± 0.04 g/L)(补充图3c)。尽管FABOX介导的AQ256产量增强幅度小于在补充10 g/L葡萄糖的LB培养基中观察到的幅度,但在限定M9条件下仍保留了增产效果。
【数据】菌株:AQ-1、AQ-2、AQ-7;培养基:M9 + 10 g/L葡萄糖 + 维生素 + 微量金属;AQ-7产量:4.22 ± 0.13 mg/g-DCW(72 h);AQ-2产量:2.23 ± 0.06 mg/g-DCW(72 h);倍数:1.9倍;AQ-7 DCW:2.05 ± 0.06 g/L(72 h);AQ-2 DCW:2.13 ± 0.04 g/L(72 h)
FABOX通路涉及Acc介导的乙酰辅酶A向丙二酰辅酶A转化过程中的ATP消耗,以及脂肪酸生物合成过程中的NADPH消耗。此外,游离脂肪酸向酰基辅酶A转化过程中消耗ATP,而β-氧化过程中产生NADH和FADH2(补充图4)。因此,我们分析了AQ-2和AQ-7中胞内能量和氧化还原相关代谢物。AQ-7中ATP水平在9 h低于AQ-2,但从24 h起在AQ-7中维持相对较高水平(补充图5a)。CoA水平在9 h也在AQ-7中低于AQ-2(补充图5b)。NADH水平和NADH/NAD+比值在9 h在AQ-7中高于AQ-2,但这些增加在培养后期未持续(补充图5d和e)。NADPH水平在整个培养过程中在AQ-7中高于AQ-2,而NADP+水平在培养后期在AQ-7中较高(补充图5f和g)。NADPH/NADP+比值在9 h也在AQ-7中较高,但此后两菌株间差异减小(补充图5h)。因此,相对于AQ-2,AQ-7未显示测量的ATP或NADPH水平持续降低或测量的NADH水平持续增加。
【数据】菌株:AQ-2、AQ-7;时间点:9、24 h及之后;ATP:AQ-7在9 h较低,24 h起较高;CoA:AQ-7在9 h较低;NADH:AQ-7在9 h较高,后期未持续;NADPH:AQ-7全程较高;NADP+:AQ-7后期较高;NADPH/NADP+:AQ-7在9 h较高,后期差异减小
为进一步检查AQ256产量增加是否反映蛋白质丰度变化,我们比较了24 h时AQ-7和AQ-2的蛋白质组。如预期,FadA、FadB、FadD和FadE在AQ-7中增加,分配给TesA的肽段也增加,可能反映引入的'tesA构建体的表达(图2f)。参与不饱和脂肪酸β-氧化和辅助β-氧化反应的蛋白质,包括FadH、FadI、FadJ和FadM,也增加,与ΔfadR对β-氧化调节子的去阻遏一致(Cronan, 1997; Janßen and Steinbüchel, 2014)。乙醛酸循环酶AceA和AceB也增加,与ΔfadR解除IclR介导的阻遏并诱导aceBAK操纵子的报道一致(Gui
【数据】菌株:AQ-2、AQ-7;时间:24 h;增加蛋白:FadA、FadB、FadD、FadE、TesA、FadH、FadI、FadJ、FadM、AceA、AceB;方法:蛋白质组分析
3.2 FABOX通路结合丙二酸同化增强AQ256生产
(原文节选未包含此部分完整内容,以下为图3相关结果概述)
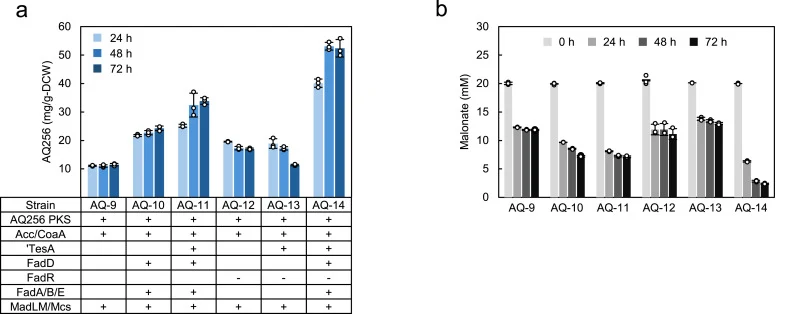
携带丙二酸同化通路的菌株在补充22 mM丙二酸的LB培养基中培养,AQ-9在ant基因簇之外还表达madLM、mcs、Pp-coaA和Cg-acc。图3显示了AQ256生产的时间进程。
【数据】菌株:AQ-9;基因:madLM、mcs、Pp-coaA、Cg-acc、ant基因簇;培养基:LB + 22 mM丙二酸;时间点:24、48、72 h
3.3 FABOX通路对其他丙二酰辅酶A依赖型聚酮的影响
(原文节选未包含此部分完整内容,以下为图4相关结果概述)
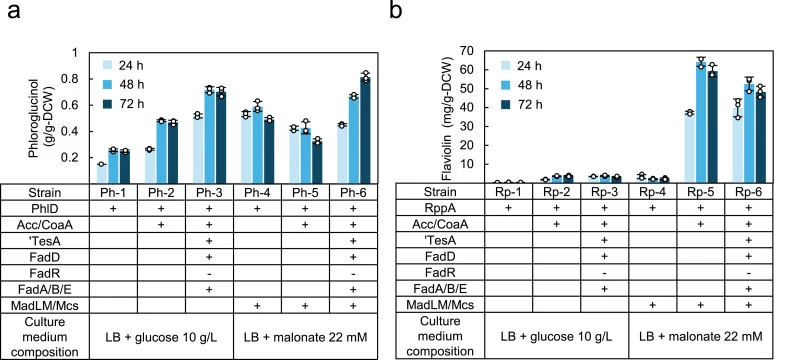
在表达PhlD的工程菌株中,在补充葡萄糖(10 g/L)或丙二酸(22 mM)条件下评估间苯三酚生产。产量在24、48和72 h定量。FadR行中的“−”表示fadR缺失。图4显示了FABOX通路对间苯三酚和其他丙二酰辅酶A依赖型聚酮的影响。
【数据】菌株:表达PhlD的工程菌株;条件:10 g/L葡萄糖或22 mM丙二酸;时间点:24、48、72 h;基因:phlD;FadR:缺失(−)
3.4 丙二酸来源碳进入乙酰辅酶A和AQ256的同位素示踪
(原文节选未包含此部分完整内容,以下为图5相关结果概述)
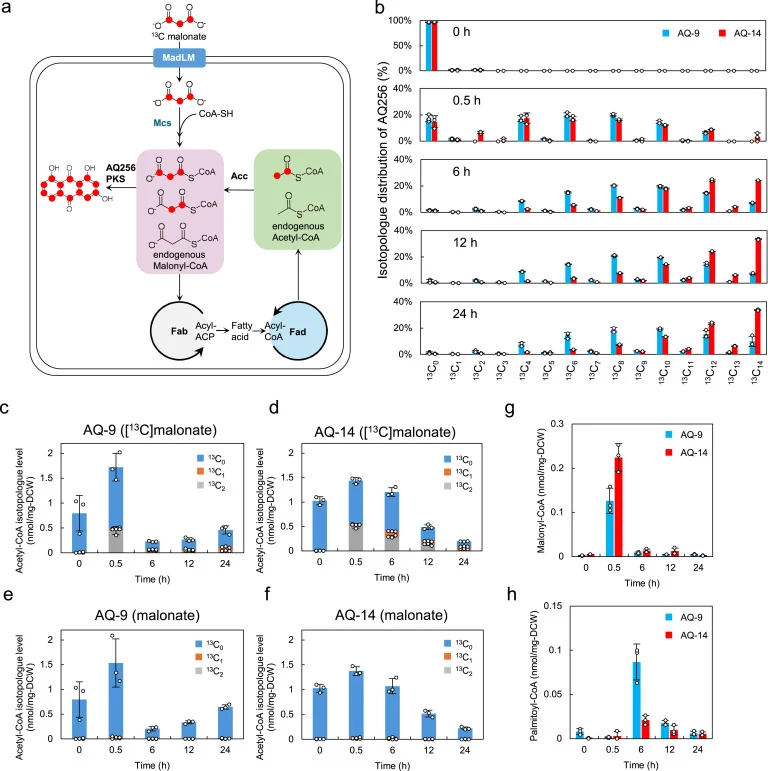
图5显示了从13C3-丙二酸预测的13C标记流的示意图。13C3-丙二酸通过丙二酸同化通路转化为1,2,3-13C3-丙二酰辅酶A。同位素示踪结果与β-氧化介导的丙二酸来源碳回收进入乙酰辅酶A和AQ256一致。
【数据】示踪剂:13C3-丙二酸;中间体:1,2,3-13C3-丙二酰辅酶A;通路:丙二酸同化通路;目标:乙酰辅酶A、AQ256
3.5 碳源依赖性细胞状态塑造产物依赖性生产响应
(原文节选未包含此部分完整内容,以下为图6相关结果概述)
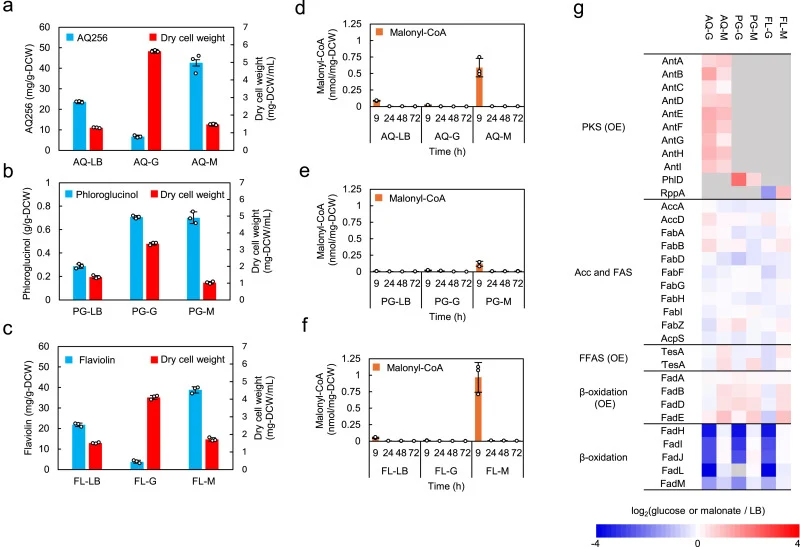
图6显示了AQ-14、Ph-6和Rp-6在不同碳源条件下的聚酮产量和细胞干重。蓝色和红色柱分别表示聚酮产量和细胞干重。
【数据】菌株:AQ-14、Ph-6、Rp-6;条件:不同碳源;测量:聚酮产量、细胞干重
3.6 碳供应策略差异影响AQ256和间苯三酚生产
(原文节选未包含此部分完整内容,以下为图7相关结果概述)
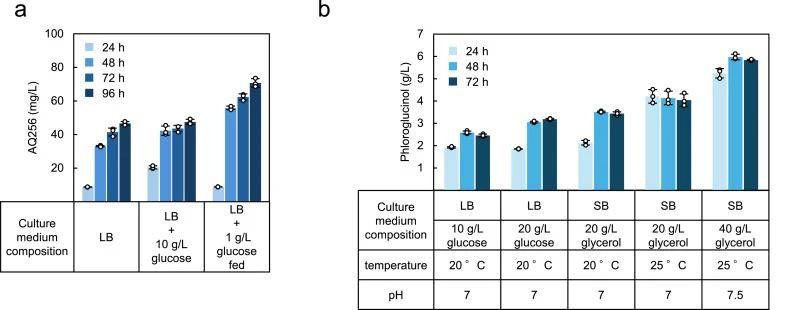
图7显示了AQ-7在不同葡萄糖供应条件下的AQ256生产时间进程。细胞在无葡萄糖的LB培养基、接种时补充10 g/L葡萄糖的LB培养基或逐步补充葡萄糖的LB培养基中培养。
【数据】菌株:AQ-7;条件:LB无葡萄糖、LB + 10 g/L葡萄糖(接种时)、LB逐步补充葡萄糖;时间进程:AQ256生产
讨论与解读
本研究结果支持一个模型:FABOX通路将进入脂肪酸生物合成的碳导向游离脂肪酸形成,并通过β-氧化将其返回乙酰辅酶A,从而以产物依赖的方式增强聚酮生产。在其他微生物中,乙酰辅酶A供应已通过降解链霉菌中积累的三酰甘油(W. Wang et al., 2020)或工程化酵母过氧化物酶体β-氧化(Li et al., 2025)得到增强。相比之下,此处开发的大肠杆菌策略的独特之处在于,它在膜脂掺入之前将脂肪酸生物合成过程中产生的酰基中间体导向游离脂肪酸形成,并通过β-氧化再生乙酰辅酶A。此外,传统的抑制竞争途径的丙二酰辅酶A增强策略可能损害细胞生长(Omura, 1976; Zha et al., 2009),在某些情况下还会减少PKS衍生品的形成(Hiltunen and Söderhäll, 1992; Lam et al., 1993; Suematsu et al., 2025)。相比之下,在补充葡萄糖的LB条件下,当'tesA介导的脂肪酸生物合成碳流重定向与β-氧化的逐步增强相结合时,细胞生长得以维持(补充图2)。总之,这些发现表明,FABOX通路通过将过量酰基碳流回收为乙酰辅酶A而不明显损害细胞生长,以有利于聚酮生产的方式重新配置碳流。
编译者解读
该研究的核心价值在于提出了一种"不堵反疏"的碳流重配置逻辑:传统策略通过抑制脂肪酸合成来节约丙二酰辅酶A,而FABOX通路选择将竞争通路的产物经β-氧化回收为乙酰辅酶A,再重新羧化为丙二酰辅酶A。这种闭环设计在AQ256上实现了8.1倍提升,且未损害细胞生长。但该策略对黄酮木素无效,提示其效果高度依赖产物对前体动态的敏感性。此外,ATP和NADPH的消耗可能限制其在低能量条件下的应用。未来若能将FABOX与动态调控或厌氧代谢耦合,或可进一步拓展其适用边界。
参考来源
期刊:Metabolic Engineering, 2026
DOI: 10.1016/j.ymben.2026.102557
DOI: 10.1016/j.ymben.2026.102557