来源:Engineering glucose uptake for enhanced production of L-tyrosine in Bacillus amyloliquefaciens(Journal of Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
L-酪氨酸是重要的芳香族氨基酸,广泛应用于膳食补充剂和高值食品配料的前体。微生物发酵是其可持续生产路径,但高滴度仍难实现。本研究以解淀粉芽孢杆菌为底盘,系统改造葡萄糖转运与磷酸化途径:过表达非PTS系统的Bao-glcP1和Cgb-glK使产量分别提升36%和33%,经启动子、终止子及5′-UTR优化后达458.27 mg/L;叠加PTS削弱策略获得底盘菌株B52(407.16 mg/L),最终过表达限速酶AroA与TyrA将滴度推至1400.53 mg/L。该工作为非模式芽孢杆菌的氨基酸生物制造提供了遗传资源与调控元件。
研究背景
L-酪氨酸不仅是蛋白质合成的必需组分,也是L-DOPA、白藜芦醇及多种生物碱等高值活性化合物的关键前体,在制药、营养品和精细化工领域市场潜力巨大。传统化学提取与酶法合成工艺复杂且存在环境问题,微生物发酵因环境可持续性和过程可控性成为主流路线。目前工程化微生物细胞工厂已取得显著进展:在大肠杆菌中,通过解除反馈抑制、强化前体与还原力供给、共利用碳源等策略,5 L发酵罐中L-酪氨酸滴度达到109.2 g/L,为迄今最高报道值;在解淀粉芽孢杆菌中,通过酶工程使滴度达到1.10 g/L。高产L-酪氨酸的策略通常聚焦于反馈抑制、前体供给、副产物形成和表达元件等方面,但葡萄糖摄取系统在其中所扮演的角色尚未被充分认识。
研究方法
2.1 菌株、质粒与培养条件
本研究所用菌株、质粒和引物分别列于表1、表S1和表S2。种子培养时,将菌株接种至50 mL LB培养基(10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl)中,37℃、180 rpm振荡培养12 h。随后将种子培养液以3%(v/v)接种量接入50 mL L-酪氨酸发酵培养基。发酵培养基配方为(每升):22 g葡萄糖、3 g (NH₄)₂SO₄、6.75 g K₂HPO₄、1.25 g KH₂PO₄、1.5 g MgSO₄·7H₂O、5 g柠檬酸钠、3 g蛋白胨、6 g酵母提取物,以及1 mL微量元素(4 g/L FeSO₄·7H₂O、4 g/L CaCl₂、1 g/L MnSO₄·5H₂O、0.4 g/L CoCl₂·6H₂O、0.2 g/L ZnSO₄·7H₂O、0.1 g/L AlCl₃·6H₂O、0.1 g/L CuCl₂·H₂O、0.05 g/L H₃BO₄)。培养在37℃、180 rpm条件下进行36 h。
【数据】培养基:LB(10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl);接种量:3%(v/v);温度:37℃;转速:180 rpm;种子培养时间:12 h;发酵时间:36 h;葡萄糖:22 g/L;(NH₄)₂SO₄:3 g/L;K₂HPO₄:6.75 g/L;KH₂PO₄:1.25 g/L;MgSO₄·7H₂O:1.5 g/L;柠檬酸钠:5 g/L;蛋白胨:3 g/L;酵母提取物:6 g/L
2.2 质粒与工程菌株的构建
过表达菌株按此前报道的方法构建(Ji et al., 2023)。以菌株B1/P43-Bao-glcP1为例,分别基于解淀粉芽孢杆菌Bao-glcP1的编码序列、枯草芽孢杆菌168的组成型启动子P43和地衣芽孢杆菌的终止子TamyL设计引物Bao-glcP1-F/R、P43-F/R和TamyL-F/R。使用引物P43-F和TamyL-R通过重叠延伸PCR组装融合片段P43-Bao-glcP1-TamyL。该片段随后连接至经BamHI/XbaI酶切的pHY300PLK,转化大肠杆菌DH5α进行扩增。阳性克隆通过菌落PCR和测序验证,获得质粒pHY-P43-Bao-glcP1-TamyL。所有其他过表达质粒均采用相同流程构建。验证后的质粒随后电转化至基础菌株B1,生成相应的过表达菌株。基因缺失与整合按已报道方法进行(Zhao et al., 2025)。以菌株B1ΔXKDG::P43-UTR1-Bao-glcP1-BT2的构建为例:从解淀粉芽孢杆菌基因组中扩增插入位点上下游同源臂(片段A和B),连同P43-UTR1-Bao-glcP1-BT2表达盒一起扩增。这三个片段通过重叠延伸PCR融合,生成片段A-P43-UTR1-Bao-glcP1-BT2-B。融合产物与温敏载体T2(2)-ori经BamHI和XbaI酶切、连接后转化大肠杆菌DH5α。使用引物T2-F/R通过菌落PCR鉴定阳性克隆并测序验证,获得整合质粒T2(2)-ori::P43-UTR1-Bao-glcP1-BT2。该质粒电转化至菌株B1,经两轮同源重组获得最终菌株B50。其他敲除与整合菌株按类似流程构建。
【数据】限制性内切酶:BamHI、XbaI;宿主:大肠杆菌DH5α;启动子:P43(枯草芽孢杆菌168);终止子:TamyL(地衣芽孢杆菌);温敏载体:T2(2)-ori;同源重组轮次:2轮;目标菌株:B50
2.3 L-酪氨酸的测定
发酵液中L-酪氨酸采用高效液相色谱(HPLC)定量。简要流程:取1 mL样品,加入0.6 mL 1 M HCl酸化,充分混匀后于10,000 ×g离心3 min。上清液经0.22 μm滤膜过滤后进行分析。分离在配备ZORBAX eclipse XDB-C18色谱柱(4.6 mm × 250 mm,5 μm)的Agilent 1100 HPLC系统上进行。流动相为10%甲醇与90%乙酸钠缓冲液(100 mM,pH 4.0)的混合物,等度洗脱,流速0.6 mL/min。柱温维持30℃,进样量10 μL,检测波长280 nm。定量基于L-酪氨酸标准品的外标校准曲线。
【数据】样品体积:1 mL;HCl:0.6 mL(1 M);离心:10,000 ×g、3 min;滤膜:0.22 μm;色谱柱:ZORBAX eclipse XDB-C18(4.6 mm × 250 mm,5 μm);流动相:10%甲醇+90%乙酸钠缓冲液(100 mM,pH 4.0);流速:0.6 mL/min;柱温:30℃;进样量:10 μL;检测波长:280 nm
2.4 多序列比对与保守性分析
多序列比对使用ClustalW(https://www.genome.jp/tools-bin/clustalw)完成。比对结果使用ESPript(https://espript.ibcp.fr/ESPript/cgi-bin/ESPript.cgi)进行可视化并标注二级结构元件。序列保守性分析使用ConSurf(https://consurf.tau.ac.il/)进行。跨膜结构域拓扑结构使用Protter(https://wlab.ethz.ch/protter)可视化(Omasits et al., 2014)。
【数据】软件:ClustalW、ESPript、ConSurf、Protter;原文未详述其他参数
2.5 分子对接
蛋白Bao-GlcK和Cgb-GlK的结构使用AlphaFold3预测(Abramson et al., 2024)。葡萄糖的3D结构从PubChem数据库(https://pubchem.ncbi.nlm.nih.gov/)获取,并使用MMFF94力场进行能量最小化。分子对接使用AutoDock Vina 1.2.0进行(Eberhardt et al., 2021)。对接前,使用PyMOL 2.5为受体蛋白添加氢原子。对接网格以同源蛋白中鉴定到的活性位点对应空腔为中心。使用ADFRsuite 1.0制备配体和受体文件并转换为PDBQT格式以供AutoDock Vina使用。对接过程中,全局搜索穷举度设为32,其他参数保持默认值。选择对接得分最高的构象作为预测结合姿态,并使用PyMOL 2.5可视化。
【数据】软件:AlphaFold3、AutoDock Vina 1.2.0、PyMOL 2.5、ADFRsuite 1.0;力场:MMFF94;穷举度:32;其他参数:默认值
2.6 统计分析
所有发酵实验均进行三次重复,含三个生物学平行,以确保数据可靠性。统计分析使用SPSS 20.0进行,结果以平均值±标准差表示。数据使用GraphPad Prism 8处理和可视化。两组间比较采用Student's t检验。多组比较采用单因素方差分析(ANOVA)及Tukey诚实显著差异(HSD)事后检验。测试菌株与对照之间的统计学显著差异表示为(p < 0.05)、(p < 0.01)和(p < 0.001),ns表示无显著差异。
【数据】重复次数:3次生物学平行;软件:SPSS 20.0、GraphPad Prism 8;显著性水平:p < 0.05、p < 0.01、p < 0.001;ns:无显著差异
研究结果
3.1 葡萄糖转运系统对L-酪氨酸生物合成的影响
葡萄糖作为最常见的碳源,关键性地调控着代谢通量、产物滴度、得率和生产率(Ding et al., 2025)。解淀粉芽孢杆菌同时利用PTS和非PTS系统摄取葡萄糖(图1A)。此前研究表明,增强非PTS途径中葡萄糖通透酶的表达可促进L-酪氨酸生物合成,提示该系统具有代谢工程潜力(Ji and Wei, 2020)。为建立与L-酪氨酸生物合成更兼容的葡萄糖利用路线,本研究异源表达了来自多种微生物的十个葡萄糖转运蛋白基因(glcP/glcU)和七个葡萄糖激酶基因。结果表明,过表达来自解淀粉芽孢杆菌的glcP1和来自谷氨酸棒杆菌的glK显著增强了L-酪氨酸产量,滴度分别达到395.82 mg/L和385.37 mg/L(图1B和1C)。与对照菌株B2相比,分别提高了36%和33%。重要的是,过表达这两个基因对细菌生长无显著影响(图S1A和S1B)。相比之下,其余异源基因的表达未显著增强产量,表明葡萄糖转运和磷酸化的特定基因选择对提高L-酪氨酸滴度至关重要。
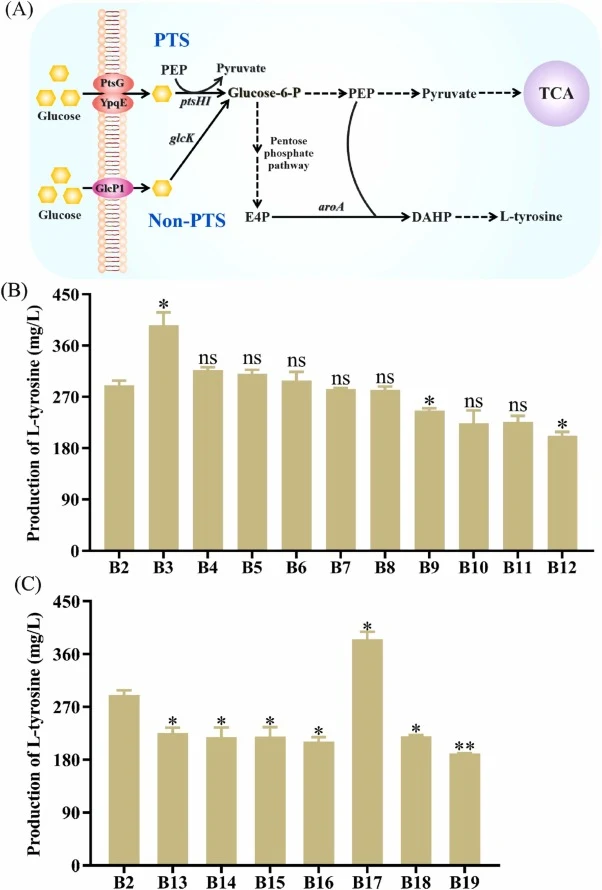
【数据】菌株:B2(对照)、Bao-glcP1过表达株、Cgb-glK过表达株;L-酪氨酸滴度:395.82 mg/L(Bao-glcP1)、385.37 mg/L(Cgb-glK);提升幅度:36%、33%;对照菌株:B2;基因数量:10个葡萄糖转运蛋白基因、7个葡萄糖激酶基因
3.2 glcP1和glK基因的比较分析与功能分化
为阐明来自解淀粉芽孢杆菌的葡萄糖转运蛋白基因glcP1的功能优势,进行了系统的序列和结构分析。跨膜结构域预测显示,解淀粉芽孢杆菌的GlcU含有八个跨膜结构域(图S2),而GlcP1采用主要促进因子超家族(MFS)典型的12跨膜螺旋(12-TM)架构(图2A)。这种12-TM拓扑结构在进化上针对摇杆开关交替访问机制进行了优化,其中TM1、TM4、TM7和TM10形成中央底物结合腔,TM2、TM5、TM8和TM11介导结构域间构象变化,TM3、TM6、TM9和TM12通过脂双层相互作用提供结构稳定性(Sauve et al., 2023)。这一架构差异可能为GlcP1的优越转运功能提供了结构基础。为进一步探究GlcP1的特异性,对来自不同来源的三个GlcP同源物进行了多序列比对和系统发育分析。结果显示,Bao-GlcP1与Bsu-GlcP和Bli-GlcP的氨基酸一致性分别仅为28%和29%,表明其与其他功能同源物存在显著的进化分歧(图S3)。保守性分析是鉴定蛋白质关键功能残基的有力工具(Ashkenazy et al., 2016)。ConSurf分析揭示,底物结合和转运相关的核心区域(残基1–61、92–145、215–275和308–356)高度保守,确保了基本转运功能。相比之下,特定的胞外环和末端区域(残基180–210、282–303和359–404)保守性较低,可能与宿主特异性相互作用有关(图2B)。Bao-GlcP1的功效源于其保守核心和宿主适应区域,为转运蛋白工程提供了关键启示——即平衡核心功能与宿主兼容性。
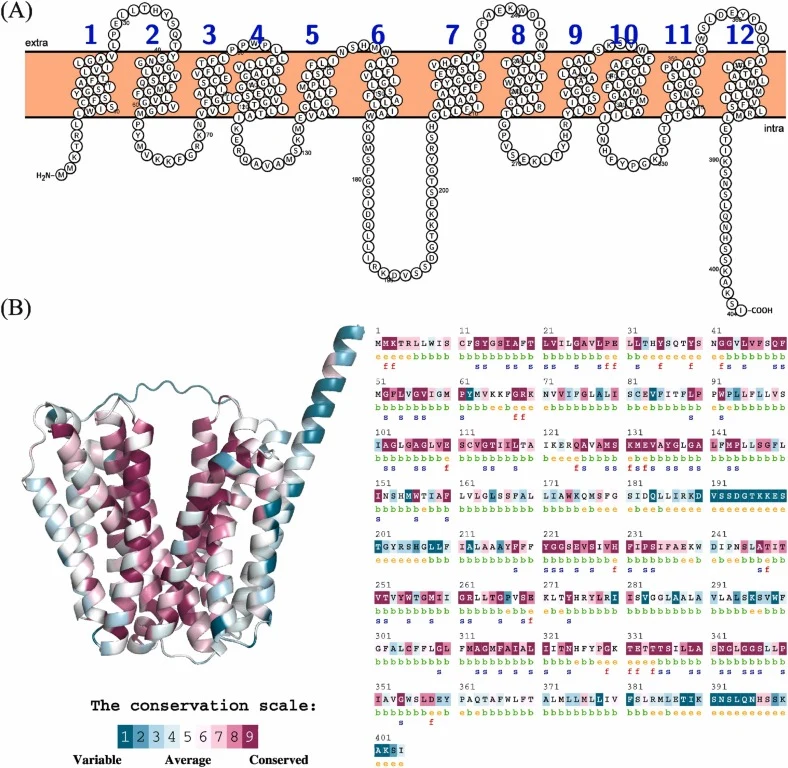
【数据】GlcU跨膜结构域:8个;GlcP1跨膜结构域:12个;Bao-GlcP1与Bsu-GlcP氨基酸一致性:28%;Bao-GlcP1与Bli-GlcP氨基酸一致性:29%;保守核心区域残基:1–61、92–145、215–275、308–356;低保守区域残基:180–210、282–303、359–404
为阐明葡萄糖激酶基因Cgb-glK的功能优势,进行了多序列比对分析。结果显示,Bao-GlcK与Bli-GlcK、Bce-GlcK、Bmh-GlcK和Cgb-GlcK的氨基酸序列一致性分别为78%、61%、61%和31%,而与Eco-GlcK未检测到相似性(图3A)。此外,来自谷氨酸棒杆菌和解淀粉芽孢杆菌的葡萄糖激酶在一级和三级结构上均保守(图3A和3B)。ConSurf分析揭示葡萄糖结合口袋位于高度保守区域,与其催化作用一致(图S4)。分子对接显示,葡萄糖与Cgb-GlK形成五个氢键(PRO158、GLU159、ALA141、HIS109和ASP110)(图3C),而与Bao-GlcK仅形成四个氢键(GLU161、GLY73、ASN111和ASP112)(图3D),表明Cgb-GlK的底物结合更稳定。与此一致,Cgb-GlK对葡萄糖的结合能(−27.74 kcal/mol)低于Bao-GlcK(−23.68 kcal/mol),反映其更高的底物亲和力。这种增强的结合可能是Cgb-GlK功能优势的基础。这些发现为葡萄糖代谢的适应性进化提供了分子层面的见解,并确定了酶工程的潜在靶点。
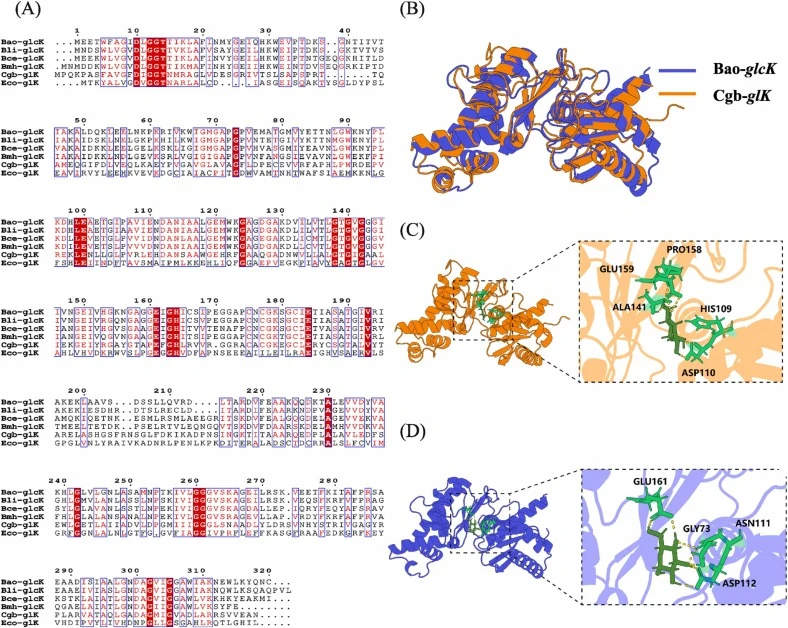
【数据】Bao-GlcK与Bli-GlcK一致性:78%;与Bce-GlcK:61%;与Bmh-GlcK:61%;与Cgb-GlcK:31%;与Eco-GlcK:未检测到相似性;Cgb-GlK氢键数:5个(PRO158、GLU159、ALA141、HIS109、ASP110);Bao-GlcK氢键数:4个(GLU161、GLY73、ASN111、ASP112);Cgb-GlK结合能:−27.74 kcal/mol;Bao-GlcK结合能:−23.68 kcal/mol
3.3 转录优化增强L-酪氨酸产量
研究表明,优化关键基因的转录对于驱动高效代谢物合成至关重要(Rao et al., 2023)。为进一步提高L-酪氨酸产量,本研究通过启动子和终止子工程系统优化了Bao-glcP1和Cgb-glK在转录水平的表达。首先,选择芽孢杆菌中常用的三个强组成型启动子(PsrfA、PbacA和PytzE)驱动Bao-glcP1和Cgb-glK的过表达,旨在为每个基因鉴定最兼容的启动子(图4A)。如图4B和4C所示,组成型启动子P43有效驱动了Bao-glcP1和Cgb-glK在解淀粉芽孢杆菌中的表达,并产生了最高的L-酪氨酸滴度。这表明这两个基因在代谢途径中的表达更依赖于持续稳定的表达模式,与此前报道的发现一致(Jiang et al., 2022)。值得注意的是,虽然PsrfA在驱动Bao-glcP1时表现与P43相当,但用于Cgb-glK时使L-酪氨酸产量降低了31%(图4B和4C)。这种明显的基因特异性响应表明,最佳启动子选择不仅取决于其固有强度,还取决于与目标基因的功能兼容性。例如,虽然P43在表达纳豆激酶时活性高于PgisB,但对于Eco-TyrAM53I/A354V则观察到相反的结果(Liu et al., 2019b; Zhao et al., 2026)。在未来的研究中,可通过检测不同时间点目标基因的mRNA表达水平(通过qPCR)和蛋白表达水平来系统阐明动态调控模式。
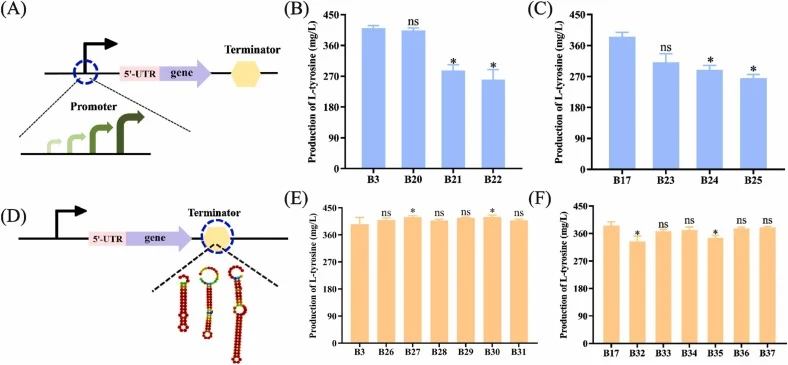
【数据】启动子:PsrfA、PbacA、PytzE、P43;PsrfA驱动Cgb-glK时L-酪氨酸产量降低:31%;最高滴度启动子:P43
终止子序列也关键性地影响mRNA稳定性。高效终止子通常形成稳定的茎环(发夹)结构,有效防止mRNA 3′端被外切酶降解,从而延长其半衰期并增强基因表达(Chen et al., 2026; Ito et al., 2020)。基于此原理,选择了文献报道的若干具有不同效率的终止子序列(de Hoon et al., 2005),以鉴定在解淀粉芽孢杆菌中具有功能的终止子(图4D)。如图4E和4F所示,菌株B27(419.57 mg/L)和B30(420.26 mg/L)的L-酪氨酸滴度较对照提高了6%,表明所用终止子适度增强了Bao-glcP1的表达。相比之下,将终止子(T1-T6)应用于Cgb-glK并未显著增强L-酪氨酸产量,后续实验中Cgb-glK使用原始TamyL终止子。这一结果暗示终止子功能可能受基因特异性或宿主兼容性因素的制约,表现出明显的基因依赖性。
【数据】菌株B27滴度:419.57 mg/L;菌株B30滴度:420.26 mg/L;较对照提升:6%;Cgb-glK终止子:TamyL(原始);终止子T1-T6对Cgb-glK:无显著增强
3.4 5′-UTR序列的理性设计增强L-酪氨酸产量
5′-UTR关键性地影响mRNA稳定性、结构和翻译,与启动子和终止子一起作为关键的转录后调控元件(She et al., 2024)。基于在线设计平台(https://sbi.postech.ac.kr/utr_library/)预测的翻译效率评分和5′-UTR序列(S...
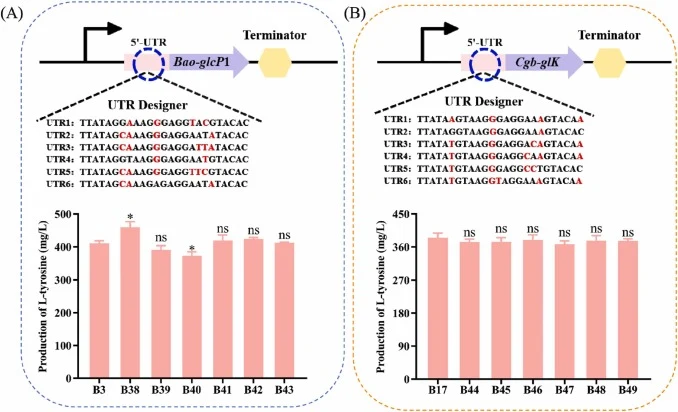
【数据】原文节选至此中断,后续内容未详述
讨论与解读
本研究在解淀粉芽孢杆菌中建立了系统的代谢工程框架,通过整合多维策略实现L-酪氨酸的高水平生产。首先改造葡萄糖转运途径,过表达两个非PTS基因Bao-glcP1和Cgb-glK,使L-酪氨酸滴度分别提高36%和33%。随后对表达元件(启动子、终止子和5′-UTR)进行精细调控,进一步提升产量。值得注意的是,单纯阻断PTS系统而不强化非PTS系统会导致L-酪氨酸产量下降。通过整合非PTS途径并削弱PTS系统,重建了葡萄糖摄取和磷酸化,获得高产底盘菌株,滴度达407.16 mg/L(较野生型B1提高43%)。随后过表达L-酪氨酸生物合成途径中的关键限速酶,将滴度提升至1400.53 mg/L。本研究不仅为解淀粉芽孢杆菌中高效生产L-酪氨酸提供了关键遗传资源和调控元件,也拓展了非模式芽孢杆菌作为底盘细胞用于L-酪氨酸衍生物生物制造的潜力。
编译者解读:该研究的方法论价值在于将“碳源摄取”这一常被忽视的节点纳入氨基酸代谢工程的设计空间。选择非PTS系统而非直接强化PTS,规避了PTS消耗磷酸烯醇式丙酮酸而挤占芳香族氨基酸前体供给的固有矛盾。从395 mg/L到1400 mg/L的跨越主要依赖限速酶过表达,说明转运与磷酸化改造为下游途径提供了更充裕的前体流。局限在于5′-UTR优化部分数据在节选中不完整,且未在发酵罐规模验证,工业化放大尚需时日。
参考来源
期刊:Journal of Biotechnology, 2026
DOI: 10.1016/j.jbiotec.2026.07.005
DOI: 10.1016/j.jbiotec.2026.07.005