来源:Partial replacement of fish meal with Yarrowia lipolytica alters hepatic lipid metabolism in turbot (Scophthalmus maximus): Potential involvement of the C/EBPα–Apoea axis(Aquaculture Reports)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
鱼粉是水产饲料的核心蛋白源,但其供应受限、价格攀升,寻找可持续替代蛋白已成行业刚需。本研究以产油酵母——解脂耶氏酵母(Yarrowia lipolytica)替代大菱鲆饲料中12%的鱼粉蛋白,系统评估了生长性能、血清与肝脏脂质指标、肝组织学变化及脂质代谢相关基因表达,并结合原代肝细胞过表达/敲低、双荧光素酶报告、启动子缺失与定点突变,解析了 C/EBPα 对 apoea 启动子的转录调控。结果显示:12%替代不损害生长,但显著提高摄食率、肝体比与脏体比,升高血清和肝脏 TG、TC,加重肝细胞空泡化;机制上锁定 C/EBPα–Apoea 轴及约 −229 bp 的关键响应位点。
研究背景
鱼粉因营养价值高、氨基酸组成优良、消化率高、适口性好,长期占据水产饲料主要蛋白源地位。但水产养殖规模快速扩张、海洋源饲料原料供给有限、生产成本不断上涨,迫使业界寻找可持续且营养适配的替代方案。近年来的替代尝试已从传统植物蛋白拓展到昆虫粉和单细胞蛋白等新型原料。单细胞蛋白可利用多种底物高效生产,被视为有前景的水产饲料原料。
解脂耶氏酵母是一种产油酵母,营养组成良好:蛋白含量较高,必需氨基酸、矿物质、维生素及生物活性物质含量可观;同时具备较强的胞内脂质积累能力,三酰甘油是其主要的储存脂质形式。这些营养与代谢特性支持其作为水产饲料替代蛋白源的潜力。
研究方法
2.1 实验设计与饲料
配制两种等氮等脂实验饲料,以鱼粉和解脂耶氏酵母(YL)为主要蛋白源,鱼油和大豆卵磷脂为主要脂质源。对照饲料(YL0)不含解脂耶氏酵母。在 YL12 饲料中,对照组中由鱼粉提供的12%蛋白被等量的解脂耶氏酵母蛋白替代。替代水平基于鱼粉的蛋白贡献计算,而非基于饲料总重量或直接的原料替代。由于鱼粉和解脂耶氏酵母的粗蛋白含量不同,相应调整了二者的添加水平,以确保实验饲料保持等氮等脂。实验饲料的配方和概略成分见表1。本研究所用解脂耶氏酵母由中国科学院天津工业生物技术研究所提供。该产品以干物质计含72.71%粗蛋白和1.30%粗脂质。其采用基于合成气的厌氧–好氧耦合发酵工艺生产。简言之,合成气中的一氧化碳首先被厌氧羧基营养细菌转化为低分子量有机酸,随后通过好氧发酵生产解脂耶氏酵母生物质。酵母细胞经高压均质破碎,破碎率超过99%。所有原料先粉碎并过80目筛。按配方将各原料充分混合,先加微量组分,再逐步加入大量组分。干料混匀后加入脂质源,随后加入足量水制成软硬适中的面团。面团随后制成2.0 mm颗粒,55 ℃干燥,按饲料处理分装,−20 ℃保存备用。
【数据】蛋白源:鱼粉、解脂耶氏酵母;脂质源:鱼油、大豆卵磷脂;酵母粗蛋白:72.71%(干物质基础);酵母粗脂质:1.30%(干物质基础);破碎率:>99%;筛目:80目;颗粒直径:2.0 mm;干燥温度:55 ℃;保存温度:−20 ℃;替代水平:鱼粉蛋白的12%
2.2 实验鱼与饲养管理
饲养试验在山东威海山东科合高科股份有限公司进行。健康大菱鲆幼鱼取自同一设施。正式试验前,鱼在水泥池(6.0 m × 6.0 m × 1.0 m)中驯化3天,投喂商业饲料。试验前禁食24 h以确保初始体重测量准确。试验开始时,随机选取180尾健康、无可见外伤、活力良好、体型均匀的大菱鲆幼鱼。以缸均值计,平均初始体重为43.40 ± 0.4 g。鱼随机分配至6个养殖缸(每缸150 L),每缸30尾,每个饲料处理设3个重复缸。试验持续8周。每日08:00和17:00表观饱食投喂两次。试验期间水温维持22–24 ℃,pH 7.5–8.2,溶解氧7.2–7.4 mg/L,盐度33–34‰。
【数据】驯化时间:3天;禁食时间:24 h;鱼数:180尾;初始体重:43.40 ± 0.4 g;养殖缸:6个;缸体积:150 L;每缸鱼数:30尾;重复数:3;试验时长:8周;投喂次数:2次/天(08:00、17:00);水温:22–24 ℃;pH:7.5–8.2;溶解氧:7.2–7.4 mg/L;盐度:33–34‰
2.3 样品采集
饲养试验结束时,鱼禁食24 h后采样。首先记录每缸总生物量和存活鱼数以计算增重率和存活率。生长性能参数以缸水平数据计算,每缸视为一个实验重复。体指数和生化分析每缸随机取1尾鱼。鱼用MS-222(200 mg/L)深度麻醉。记录体重和体长。从尾静脉采血。4 ℃凝固后,血样4000 × g离心10 min。分离血清并−80 ℃保存。随后解剖肝脏和内脏并称重,计算肝体比(HSI)和脏体比(VSI)。肝脏样品分为两部分。一部分置于冻存管中,液氮速冻后−80 ℃保存用于生化和分子分析。另一部分固定于4%多聚甲醛用于组织学检查。每个饲料处理获得3个生物学重复。
【数据】禁食时间:24 h;麻醉剂:MS-222;麻醉浓度:200 mg/L;凝血温度:4 ℃;离心:4000 × g、10 min;保存温度:−80 ℃;固定液:4%多聚甲醛;生物学重复:3
2.4 生长性能与生化分析
2.4.1 生长性能参数计算
生长性能和体指数按以下公式计算:
存活率(SR,%)= 100 × 终末鱼数 / 初始鱼数
终末平均体重(FBW,g)= 终末生物量 / 终末鱼数
增重率(WGR,%)= 100 ×(终末体重 − 初始体重)/ 初始体重
特定生长率(SGR,%/天)= 100 × [ln(终末体重) − ln(初始体重)] / 饲养天数
摄食率(FR,%)= 100 × 摄食量 / [饲养天数 ×(初始体重 + 终末体重)/ 2]
肝体比(HSI,%)= 100 × 肝脏重 / 体重
脏体比(VSI,%)= 100 × 内脏重 / 体重
肥满度(CF)= 100 × 体重 / 体长³
饲料系数(FCR)= 摄食量 / 总增重
【数据】公式参数:SR、FBW、WGR、SGR、FR、HSI、VSI、CF、FCR;原文未详述具体数值
2.4.2 血清和肝脏生化参数测定
血清和肝脏匀浆中甘油三酯(TG)和总胆固醇(TC)水平按试剂盒说明书使用南京建成生物工程研究所(中国南京)的商用检测试剂盒测定。血清高密度脂蛋白胆固醇(HDL-C)和低密度脂蛋白胆固醇(LDL-C)水平使用南京建成生物工程研究所(中国南京)的商用诊断试剂盒测定。血清极低密度脂蛋白(VLDL)浓度按制造商方案使用鱼类VLDL ELISA试剂盒(Fankew,中国)测定。
【数据】检测指标:TG、TC、HDL-C、LDL-C、VLDL;试剂来源:南京建成生物工程研究所;VLDL试剂盒:Fankew;原文未详述具体数值
2.5 肝脏组织学检查
肝脏样品按常规石蜡组织学流程处理。简言之,固定组织经梯度乙醇脱水、二甲苯透明、石蜡包埋,切片厚度5 μm。切片经二甲苯脱蜡、降浓度乙醇复水,使用商用苏木精溶液(Solarbio,G1120)进行HE染色用于组织学观察。分化返蓝后,切片用伊红溶液(Solarbio,G1120)复染。染色切片随后脱水、透明、中性树脂封片,并使用数字切片扫描系统(3DHISTECH Panoramic MIDI,匈牙利)扫描。苏木精和伊红观察按先前方案在肝组织中进行。每样品随机检查10个视野,随后用Image J(1.51版,美国国立卫生研究院)定量HE染色中空泡的相对面积。
【数据】切片厚度:5 μm;苏木精:Solarbio G1120;伊红:Solarbio G1120;扫描系统:3DHISTECH Panoramic MIDI;视野数:10个/样品;定量软件:Image J 1.51
2.6 肝脏脂质代谢相关基因的实时定量PCR分析
使用TRIzol试剂从肝脏样品中提取总RNA。RNA浓度用Biodropsis BD-1000核酸分析仪(OSTC,中国)测定,RNA完整性通过琼脂糖凝胶电泳评估。提取的RNA使用HiScript III RT SuperMix for qPCR(+ gDNA wiper)(Vazyme,中国)逆转录为第一链cDNA。实时定量PCR(RT-qPCR)在StepOnePlus Real-Time PCR System(Applied Biosystems,美国)上使用ChamQ SYBR Color qPCR Master Mix(High ROX Premixed)(Vazyme,中国)进行。目标基因包括apoea、apob、mtp、lpl、ppara、fas、lxr、acc、cd36、srebp1、cpt1a和cebpa。基于先前在大菱鲆肝脏中的验证研究及其在饲料研究中的稳定表达,选择ef1a作为参考基因。引物序列见表2。引物使用Pri……(原文此处中断)
【数据】RNA提取试剂:TRIzol;核酸分析仪:Biodropsis BD-1000;逆转录试剂盒:HiScript III RT SuperMix for qPCR(+ gDNA wiper);qPCR仪器:StepOnePlus Real-Time PCR System;qPCR试剂:ChamQ SYBR Color qPCR Master Mix(High ROX Premixed);目标基因:apoea、apob、mtp、lpl、ppara、fas、lxr、acc、cd36、srebp1、cpt1a、cebpa;参考基因:ef1a
研究结果
3.1 解脂耶氏酵母替代鱼粉对大菱鲆生长性能的影响
56天饲养试验后,YL0组与YL12组之间的存活率(SR)、终末体重(FBW)、增重率(WGR)、特定生长率(SGR)、饲料系数(FCR)和肥满度(CF)均无显著差异(p > 0.05)。相反,YL12组的摄食率(FR)较YL0组显著升高(p < 0.05)。此外,YL12组的脏体比(VSI)和肝体比(HSI)也显著升高(p < 0.05)(表5)。这些结果表明,用解脂耶氏酵母替代12%的鱼粉组分未显著损害大菱鲆的生长性能,但提高了摄食率并升高了内脏和肝脏指数。
【数据】试验时长:56天;SR、FBW、WGR、SGR、FCR、CF:组间无显著差异(p > 0.05);FR:YL12显著高于YL0(p < 0.05);VSI、HSI:YL12显著高于YL0(p < 0.05)
3.2 解脂耶氏酵母替代鱼粉对大菱鲆血清和肝脏脂质参数的影响
8周投喂后,YL12组血清甘油三酯(TG)、总胆固醇(TC)、低密度脂蛋白胆固醇(LDL-C)、高密度脂蛋白胆固醇(HDL-C)和极低密度脂蛋白(VLDL)水平均显著高于YL0组(p < 0.05)。YL12组肝脏TG和TC含量也显著高于YL0组(p < 0.05)(表6)。这些结果表明,用解脂耶氏酵母替代12%的鱼粉组分改变了大菱鲆血清脂质相关指标,并伴随肝脏TG和TC含量显著升高。
【数据】投喂时长:8周;血清TG、TC、LDL-C、HDL-C、VLDL:YL12显著高于YL0(p < 0.05);肝脏TG、TC:YL12显著高于YL0(p < 0.05)
3.3 解脂耶氏酵母替代鱼粉对大菱鲆肝脏组织学变化的影响
苏木精和伊红(HE)染色显示,两组肝细胞中均存在胞质空泡。与YL0组相比,YL12组鱼的肝脏显示出更广泛的肝细胞空泡化,特征是空泡样结构数量更多、分布更广、空泡大小异质性增加,并偶见相邻空泡融合。定量形态学分析进一步显示,YL12组的相对空泡面积显著高于YL0组(p < 0.05)(图1)。
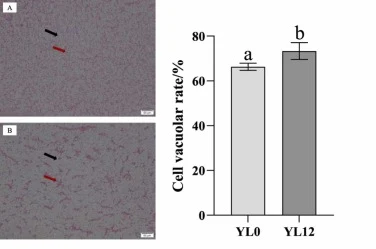
【数据】相对空泡面积:YL12显著高于YL0(p < 0.05);染色方法:HE;定量方法:Image J
3.4 大菱鲆肝脏脂质代谢相关基因表达变化
YL12组肝脏cebpa表达显著高于YL0组(p < 0.05),提示脂质代谢相关转录调控被激活。参与脂蛋白组装和输出的apoea、apob和mtp的mRNA水平在YL12组也显著升高(p < 0.05)。此外,脂质摄取和水解相关基因cd36和lpl显著上调(p < 0.05)。脂肪生成相关基因srebp1和acc、脂肪酸β-氧化相关基因cpt1a以及转录调节因子lxr的表达水平在YL12组也显著升高(p < 0.05)。相反,两组间ppara和fas的mRNA水平无显著差异(p > 0.05)(图2)。
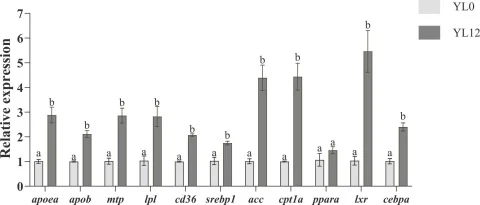
【数据】cebpa、apoea、apob、mtp、cd36、lpl、srebp1、acc、cpt1a、lxr:YL12显著高于YL0(p < 0.05);ppara、fas:组间无显著差异(p > 0.05)
3.5 大菱鲆Apoea的序列与蛋白特征
大菱鲆apoea基因全长为2425 bp,包含四个外显子(图3)。其开放阅读框编码262个氨基酸的蛋白质。预测分子式为C₁₃₂₀H₂₁₁₇N₃₇₉O₄₂₆S₁₄,分子量为30.56 kDa,理论等电点为5.25,表明其为酸性蛋白(表7)。该蛋白含46个带负电荷残基(Asp + Glu)和38个带正电荷残基(Arg + Lys)。预测不稳定指数为43.34,提示其可能被归类为不稳定蛋白。进一步的基于序列的生物信息学分析显示,Apoea不含预测的跨膜螺旋,表明其不太可能是整合膜蛋白。疏水性分析显示,Leu8具有最高疏水性值(3.3),而Ser26具有最强亲水性(−2.922)。平均亲水性值为−0.784,表明Apoea整体为亲水性,但氨基酸序列上存在局部疏水区域。三维结构预测进一步表明Apoea主要由α-螺旋组成(图4)。系统发育分析显示,Apoea蛋白清晰分为两大支系,即鱼类和高等脊椎动物。大菱鲆Apoea与日本牙鲆(Paralichthys olivaceus)的Apoea聚类最近(图5)。
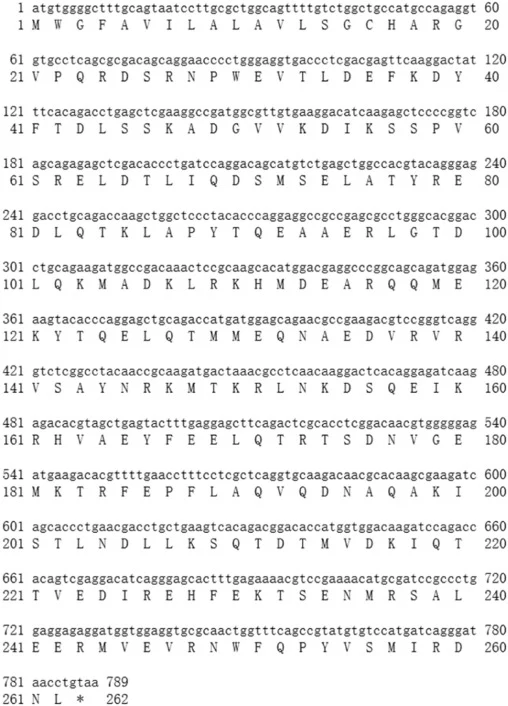
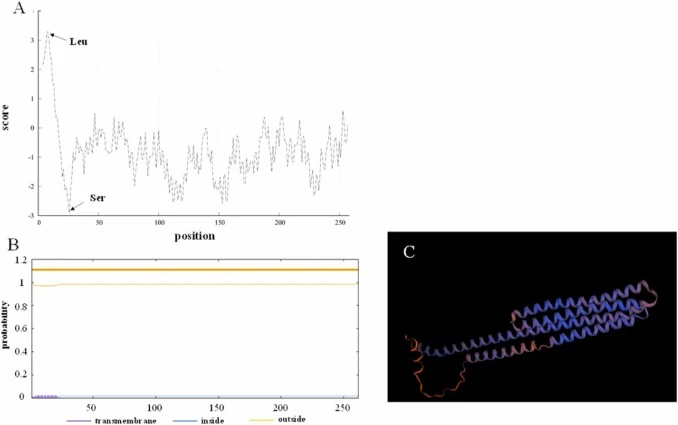
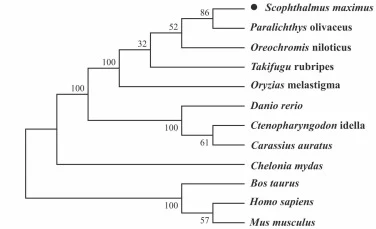
【数据】apoea基因全长:2425 bp;外显子数:4;ORF编码氨基酸数:262;分子式:C₁₃₂₀H₂₁₁₇N₃₇₉O₄₂₆S₁₄;分子量:30.56 kDa;理论等电点:5.25;负电荷残基:46(Asp + Glu);正电荷残基:38(Arg + Lys);不稳定指数:43.34;最高疏水性:Leu8(3.3);最强亲水性:Ser26(−2.922);平均亲水性:−0.784;跨膜螺旋:无
3.6 Apoea过表达对脂质代谢相关基因表达的影响
将pcDNA3.1-Apoea-EGFP转染原代大菱鲆肝细胞48 h后,apoea mRNA水平显著高于空载体对照组(p < 0.05),证实过表达成功(图6)。随后检测脂质代谢相关基因的表达。Apoea过表达显著增加了与脂蛋白组装和转运相关的apob和mtp的表达,以及与脂蛋白水解相关的lpl(p < 0.05)。脂肪酸合成相关基因acc也显著上调(p < 0.05),而srebp1表达无显著变化(p > 0.05)。相反,cd36、cpt1a和ppara未受显著影响(p > 0.05)。
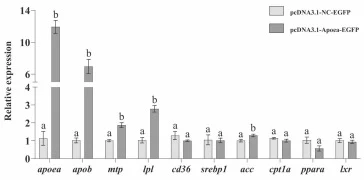
【数据】转染时间:48 h;apoea:过表达组显著高于空载体对照(p < 0.05);apob、mtp、lpl、acc:显著上调(p < 0.05);srebp1:无显著变化(p > 0.05);cd36、cpt1a、ppara:无显著影响(p > 0.05)
3.7 Apoea敲低对脂质代谢相关基因表达的影响
将靶向Apoea的siRNA转染原代大菱鲆肝细胞48 h后,apoea mRNA水平较乱序siRNA对照组(NC-siRNA)显著降低(p < 0.05),证实敲低有效(图7)。进一步分析显示,Apoea敲低显著下调apob表达(p < 0.05),而mtp mRNA水平无显著变化(p > 0.05)。cd36和acc的表达也显著降低(p < 0.05)。相反,fas、lpl、cpt1a和ppara在两组间无显著差异(p > 0.05)。
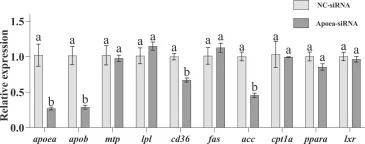
【数据】转染时间:48 h;apoea:敲低组显著低于NC-siRNA(p < 0.05);apob、cd36、acc:显著下调(p < 0.05);mtp:无显著变化(p > 0.05);fas、lpl、cpt1a、ppara:无显著差异(p > 0.05)
3.8 Apoea过表达和敲低对肝细胞培养上清脂质参数的影响
Apoea过表达48 h后,肝细胞培养上清中TG和VLDL水平显著高于空载体对照组(p < 0.05)。TC、LDL-C和HDL-C水平无显著差异(p > 0.05)(图8)。相反,siRNA介导的Apoea敲低48 h后,培养上清中TG和VLDL水平显著降低(p < 0.05),而TC、LDL-C和HDL-C水平与乱序siRNA对照组无差异(p > 0.05)(图9)。这些结果表明,Apoea主要影响肝细胞培养上清中的TG和VLDL水平,而TC、LDL-C和HDL-C在这些实验条件下未显著改变。
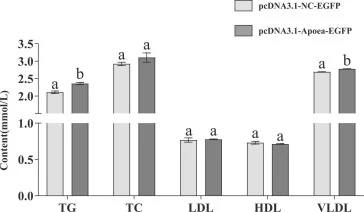
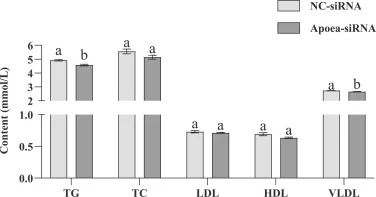
【数据】时间:48 h;过表达组TG、VLDL:显著高于空载体对照(p < 0.05);过表达组TC、LDL-C、HDL-C:无显著差异(p > 0.05);敲低组TG、VLDL:显著降低(p < 0.05);敲低组TC、LDL-C、HDL-C:无显著差异(p > 0.05)
3.9 C/EBPα介导的apoea启动子转录激活及关键响应位点鉴定
双荧光素酶报告实验显示,将pGL3-Apoea启动子报告质粒和pcDNA3.1-C/EBPα共转染HEK293T细胞后,相对荧光素酶活性较共转染pGL3-Apoea报告质粒和空pcDNA3.1载体(pcDNA3.1-NC)的细胞显著升高(p < 0.05)。增幅约为1.44倍,表明C/EBPα增强了apoea启动子的转录活性(图10)。此外,在原代大菱鲆肝细胞中过表达C/EBPα 48 h后,RT-qPCR分析显示apoea mRNA显著升高(p < 0.05)(图11)。该结果进一步支持C/EBPα对apoea转录的正向调控作用。启动子缺失分析进一步揭示了apoea启动子片段对C/EBPα的差异响应。荧光素酶活性的首次显著下降出现在p1 a……(原文此处中断)
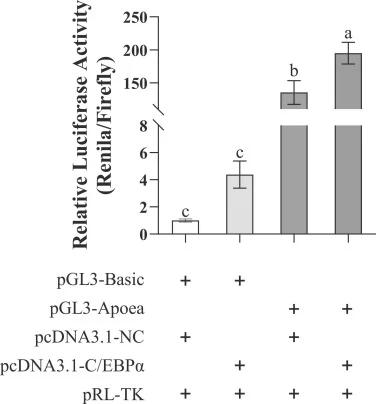
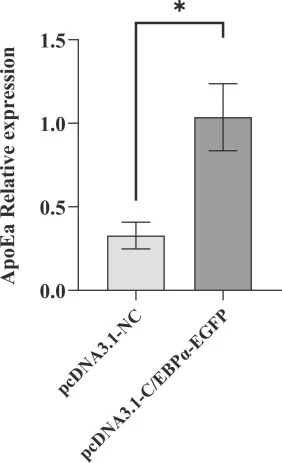
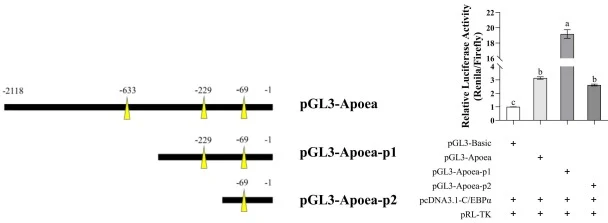
【数据】共转染:pGL3-Apoea + pcDNA3.1-C/EBPα;荧光素酶活性增幅:约1.44倍(p < 0.05);C/EBPα过表达时间:48 h;apoea mRNA:显著升高(p < 0.05);关键响应位点:约−229 bp
讨论与解读
解脂耶氏酵母因生物质含蛋白、必需氨基酸、矿物质、维生素和生物活性化合物,被视为有前景的单细胞蛋白源。但其在水产饲料中的营养效应因物种和饲料添加水平而异。本研究中,用解脂耶氏酵母替代12%的鱼粉组分未对大菱鲆生长性能产生负面影响——存活率、终末体重、增重率和特定生长率在YL0与YL12组间相当。这与先前投喂试验结果一致:解脂耶氏酵母在适宜饲料水平下可被耐受,不产生明显的生长性能不良影响。在 juvenile 大口黑鲈中,适量替代鱼粉支持生长和肠道健康,但过量替代损害生长、抗氧化能力和肠道状态。太平洋白虾中也报道了类似的剂量依赖性响应。大西洋鲑投喂梯度水平的高脂、高EPA解脂耶氏酵母生物质,在中等添加水平下未显示明显的生长性能损害,尽管饲料利用和……(原文此处中断)
编译者解读:本研究将饲料替代试验与肝细胞过表达/敲低、双荧光素酶报告、启动子缺失和定点突变逐层串联,从表型到基因表达再到转录调控,形成了较完整的机制链条。C/EBPα–Apoea 轴的鉴定为理解替代蛋白源诱导肝脏脂质沉积提供了分子靶点。局限在于:替代水平仅设12%一个处理,缺乏剂量梯度;关键响应位点约−229 bp的上下游调控网络尚未展开;Apoea影响TG/VLDL的具体分泌途径仍待追踪。
参考来源
期刊:Aquaculture Reports, 2026
DOI: 10.1016/j.aqrep.2026.103850
DOI: 10.1016/j.aqrep.2026.103850