来源:Systematic metabolic engineering of Corynebacterium glutamicum for gram-scale pyridoxal 5′-phosphate production(Biochemical Engineering Journal)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
磷酸吡哆醛(PLP)是维生素B6的主要活性辅酶形式,参与转氨、脱羧、消旋等大量酶催化反应。本研究以谷氨酸棒杆菌为底盘,对DXP依赖型PLP合成途径进行系统性代谢工程改造。从已有菌株CG-PLP0出发,依次引入EcZwf/EcDxs、反义模块、多因素模块化优化、染色体rpe/taldo1敲除、基于4HTP节点的途径模块化与启动子架构替换,最终添加EcPdxK获得CG-PLP7,摇瓶产量达595.8mg/L,较出发菌株提高8.6倍。5L生物反应器三批次独立发酵96h平均产量为2.0 ± 0.2g/L,实现了克级PLP生产。
研究背景
PLP是维生素B6的主要活性辅酶形式,参与转氨基、脱羧、消旋、裂解反应、一碳代谢以及含氮化合物转化等广泛的酶催化反应。由于PLP依赖型酶广泛参与氨基酸代谢和细胞核心过程,PLP及维生素B6相关化合物在食品、医药、营养强化和生物催化领域应用广泛。维生素类化合物可持续生产需求的增长,推动了微生物细胞工厂合成PLP的研究兴趣。传统维生素B6类化合物的生产主要依赖化学合成或多步转化工艺,这些路线虽然技术成熟,但通常涉及多步反应、较苛刻的反应条件和复杂的副产物控制。相比之下,微生物发酵可利用可再生碳源、在温和条件下运行,提供了更绿色、更灵活的生产路径。已有多種微生物宿主被用于维生素和辅因子合成研究,谷氨酸棒杆菌因其安全应用历史、成熟的工业发酵背景、稳健的生理特性以及对中心碳代谢的适应性而尤为引人关注。
研究方法
2.1 菌株、质粒与试剂
本研究所用宿主菌株为谷氨酸棒杆菌ATCC 13032。以先前建立的DXP依赖型PLP生产菌株CG-PLP0为起始菌株,逐步构建CG-PLP1至CG-PLP7。主要表达骨架为pXMJ19-CmR和pEC-XK99E-KanR,分别赋予氯霉素和卡那霉素抗性。根据构建体的不同,使用Ptac、Ptrc或PH36驱动相应的表达模块。详细的质粒架构、启动子分配、RBS序列和基因来源信息见支持信息(表S1–S3)。用于PLP途径构建的关键基因包括EcEpd、EcPdxB、EcPdxA、SmPdxJ、EcPdxH、EcZwf、EcDxs和EcPdxK。anti-Cg-pdxS-ASm模块作为靶向Cg-pdxS相关内源途径的反义干预手段引入。在CG-PLP4中完全敲除了染色体基因rpe和taldo1。PLP标准品、HPLC级甲醇及其他分析试剂均为色谱级或分析级。基因来源和登录号信息见支持信息。
【数据】菌株:谷氨酸棒杆菌ATCC 13032;质粒:pXMJ19-CmR、pEC-XK99E-KanR;启动子:Ptac、Ptrc、PH36;抗性:氯霉素、卡那霉素;敲除基因:rpe、taldo1;反义模块:anti-Cg-pdxS-ASm(300bp);其余参数:原文未详述
2.2 培养基组成
一级种子培养使用LBHis培养基,含5g/L胰蛋白胨、2.5g/L酵母提取物、5g/L NaCl、18.5g/L脑心浸液和91g/L山梨醇。当OD600达到约6时转接一级种子,通常在12–14h后。二级种子培养使用LBG培养基,含10g/L胰蛋白胨、5g/L酵母提取物、10g/L NaCl和20g/L葡萄糖。当OD600达到约10时转接二级种子,通常在12–14h后。发酵培养基含60g/L葡萄糖、5g/L尿素、8g/L玉米浆粉、0.0004g/L生物素、0.0004g/L维生素B1、1g/L K2HPO4、1g/L KH2PO4、0.0294g/L CaCl2·2H2O、1.2325g/L MgSO4·7H2O和5mL/L微量元素母液。微量元素母液含FeSO4·7H2O、MnSO4·H2O、ZnSO4·7H2O、CuSO4·5H2O、NiCl2·6H2O和HCl,母液浓度分别为10g/L、10g/L、1g/L、2g/L、0.02g/L和1mL/L HCl。根据载体的抗性标记添加抗生素。卡那霉素和氯霉素的终浓度分别为50mg/L和5mg/L。
【数据】一级种子培养基:LBHis(5g/L胰蛋白胨、2.5g/L酵母提取物、5g/L NaCl、18.5g/L脑心浸液、91g/L山梨醇);二级种子培养基:LBG(10g/L胰蛋白胨、5g/L酵母提取物、10g/L NaCl、20g/L葡萄糖);发酵培养基:60g/L葡萄糖、5g/L尿素、8g/L玉米浆粉、0.0004g/L生物素、0.0004g/L维生素B1、1g/L K2HPO4、1g/L KH2PO4、0.0294g/L CaCl2·2H2O、1.2325g/L MgSO4·7H2O、5mL/L微量元素母液;卡那霉素:50mg/L;氯霉素:5mg/L;转接OD600:一级约6、二级约10;培养时间:12–14h
2.3 DXP依赖型PLP生产菌株的构建
CG-PLP0是先前建立的DXP依赖型PLP生产菌株,携带Ptrc-EcEpd-EcPdxB-EcPdxA-SmPdxJ-EcPdxH。将EcDxs和EcZwf添加到CG-PLP0的pEC构建体中以生成CG-PLP1。随后将300bp的anti-Cg-pdxS-ASm序列引入CG-PLP1构建体中以生成CG-PLP2。该模块被设计为对Cg-pdxS相关内源途径的反义干预;本研究中未直接测量CgPdxS转录本或蛋白质丰度来量化衰减程度。以CG-PLP2为亲本菌株进行多因素模块化优化。选定的CG-PLP3构型包含pXMJ19/Ptac-EcEpd-EcPdxB-EcPdxA和pEC-XK99E/Ptrc-SmPdxJ-EcPdxH-EcZwf-Ptrc-EcDxs-ASm。最终构型从探索性酶源、RBS、基因顺序和启动子构型筛选实验中选出(表S6)。在CG-PLP3中完全敲除染色体基因rpe和taldo1以生成CG-PLP4。随后围绕4HTP节点重新组织途径组件以生成CG-PLP5。在CG-PLP5中,pXMJ19携带Ptac-EcEpd-EcPdxB-EcZwf-ASm,而pEC-XK99E含有Ptrc-EcPdxA-SmPdxJ-EcPdxH和第二个Ptrc-EcDxs表达单元。CG-PLP6保留了CG-PLP5的编码基因分布,但使用PH36替代pXMJ的Ptac启动子和两个pEC的Ptrc单元。CG-PLP7保留了CG-PLP6的pEC架构,通过在pXMJ19模块中EcZwf下游添加EcPdxK生成。因此,CG-PLP6到CG-PLP7的主要构建体变化是将EcPdxK添加到保留的含PdxH双质粒架构中。
【数据】菌株:CG-PLP0至CG-PLP7;CG-PLP0基因型:Ptrc-EcEpd-EcPdxB-EcPdxA-SmPdxJ-EcPdxH;CG-PLP1新增:EcDxs、EcZwf;CG-PLP2新增:300bp anti-Cg-pdxS-ASm;CG-PLP3构型:pXMJ19/Ptac-EcEpd-EcPdxB-EcPdxA + pEC-XK99E/Ptrc-SmPdxJ-EcPdxH-EcZwf-Ptrc-EcDxs-ASm;CG-PLP4敲除:rpe、taldo1;CG-PLP5:pXMJ19-Ptac-EcEpd-EcPdxB-EcZwf-ASm + pEC-XK99E-Ptrc-EcPdxA-SmPdxJ-EcPdxH + Ptrc-EcDxs;CG-PLP6启动子替换:PH36替代Ptac和Ptrc;CG-PLP7新增:EcPdxK(pXMJ19模块中EcZwf下游)
2.4 多因素模块化优化
以CG-PLP2为亲本菌株进行多因素模块化优化。优化包括酶源筛选、RBS调谐、启动子构型筛选和基因排列优化。通过摇瓶发酵比较候选构建体,以鉴定与更高PLP产量相关的构型。最终CG-PLP3架构从这些探索性筛选中选出。详细的候选酶源、RBS序列、启动子构型、基因排列和生物学重复数据见表S6。在历史启动子构型筛选中,V1和V2表示两个表达模块。对于每个模块,P1–P4表示四种启动子放置/构型排列,而非四种启动子身份或测量强度类别。V1Px × V2Py的表示法指从每个模块中选择一种构型;历史最佳筛选组合为V1P1 × V2P3。这些数据用于探索性构建体选择。最终CG-PLP3基因型是根据验证的最终构建体记录独立定义的,并非简单组合所有单独最高筛选条件而重建。
【数据】亲本菌株:CG-PLP2;优化维度:酶源、RBS、启动子构型、基因排列;模块标记:V1、V2;启动子构型:P1–P4;历史最佳组合:V1P1 × V2P3;摇瓶发酵筛选;其余参数:原文未详述
2.5 摇瓶发酵
将工程菌株活化后接种到一级种子培养基中。培养至OD600≈6后,将培养物转接到二级种子培养基中,生长至OD600≈10后接种到发酵培养基中。种子培养在含20mL LBG培养基的100mL摇瓶中进行。发酵在50mL体系中进行,种子接种量为2%(v/v)。采用摇瓶发酵评估CG-PLP0至CG-PLP7的PLP产量。培养物在30°C、200rpm下孵育。当OD600达到2.5时添加IPTG。对于50mL发酵体系,添加184μL 50mg/mL IPTG母液,最终IPTG浓度约为0.184mg/mL。在指定时间点收集样品以测定PLP效价、OD600和残留葡萄糖。所有摇瓶发酵实验均至少进行三次独立生物学重复,结果以平均值 ± 标准差表示。
【数据】种子培养基体积:20mL LBG/100mL摇瓶;发酵体系:50mL;接种量:2%(v/v);温度:30°C;转速:200rpm;诱导条件:OD600=2.5时添加IPTG;IPTG用量:184μL(50mg/mL母液),终浓度约0.184mg/mL;生物学重复:≥3次;结果表示:mean ± SD
2.6 5L生物反应器发酵
为评估CG-PLP7的放大性能,在5L生物反应器中使用相同发酵工艺进行了三次独立发酵。初始工作体积为2.5L,初始葡萄糖浓度为60g/L。发酵培养基按2.2节所述制备。温度维持在30°C,pH使用6.5%硫酸和25%氨水控制在7.0。采用分段通气与搅拌策略。在早期生长阶段,通气速率维持在0.8–1.0 vvm,搅拌速度300rpm。在生产阶段,通气速率调整为0.6 vvm,搅拌速度提高至500rpm。通过调节通气和搅拌调控溶解氧。从36h至72h以20mL/h的恒定速率补加800g/L葡萄糖溶液,累计补料体积约720mL。最终培养体积估计约为3.5L,但未直接测量。当OD600达到约20–24时,添加8mL 50mg/mL IPTG母液进行诱导。定期收集样品以监测细胞生长(OD600)、残留葡萄糖浓度、PLP产量和溶解氧。发酵持续96h,三次独立运行的最终PLP浓度通过HPLC定量。代表性Run 1曲线显示溶解氧在约32至76h期间接近0%;因此该区间被描述为限氧培养而非完全受控的好氧培养。
【数据】反应器规模:5L;初始工作体积:2.5L;初始葡萄糖:60g/L;温度:30°C;pH:7.0(6.5%硫酸、25%氨水调控);早期通气:0.8–1.0 vvm,搅拌300rpm;生产期通气:0.6 vvm,搅拌500rpm;补料:800g/L葡萄糖,36–72h,20mL/h,累计约720mL;最终体积:约3.5L(未直接测量);诱导:OD600约20–24时添加8mL 50mg/mL IPTG;发酵时间:96h;溶解氧:约32–76h接近0%;独立运行:3次
2.7 PLP定量
用于最终PLP效价测定的方法为……
【数据】原文未详述
研究结果
3.1 逐步工程策略与基于HPLC的菌株比较
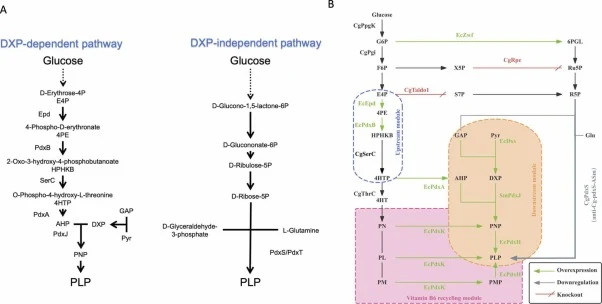
DXP依赖型PLP途径需要多种碳前体和一系列协调的酶促反应(图1A)。因此,我们评估了一系列工程干预措施,涵盖前体相关基因、反义模块、组合表达优化、染色体缺失、途径模块化、启动子架构替换以及EcPdxK的添加。这些干预被视为工程假设;除非特别说明,未直接量化细胞内通量、代谢物池、转录本丰度或酶活性的变化。对最终菌株系列的HPLC定量给出了CG-PLP0至CG-PLP7的PLP效价(表2和表S5)。从CG-PLP0到CG-PLP7的总体增幅为8.6倍。逐步趋势支持对工程模块的持续评估,尽管各工程步骤的效果大小不同,不应被解释为所提出代谢机制的直接证据。菌株构建路线图和代表性遗传架构总结于图1。详细的启动子、RBS、基因顺序和质粒信息见表S1–S3。
【数据】菌株系列:CG-PLP0至CG-PLP7;总增幅:8.6倍;定量方法:HPLC;其余参数:原文未详述
3.2 EcDxs/EcZwf添加与anti-Cg-pdxS-ASm干预
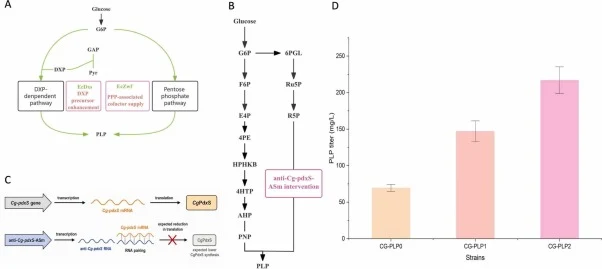
基于EcDxs和EcZwf在DXP形成和PPP相关代谢中的预期作用,将其引入CG-PLP0。CG-PLP1产生147.0 ± 14.3mg/L PLP,而CG-PLP0为69.5 ± 4.9mg/L(图2D和表S5),平均效价增加111.4%。该结果表明EcDxs/EcZwf干预与PLP产量的大幅增加相关;然而,未直接测量细胞内DXP、E4P、NADPH或代谢通量。随后添加300bp的anti-Cg-pdxS-ASm模块以生成CG-PLP2。该构建体被设计为对内源Cg-pdxS相关途径的反义干预(图2B和2C)。由于未直接测量CgPdxS转录本、蛋白质丰度和途径通量,目前的数据确立了构建体水平的干预及其生产表型,而非分子衰减的程度。CG-PLP2产生216.8 ± 18.4mg/L PLP,较CG-PLP1数值增加47.5%,相对CG-PLP0效价为3.1倍(图2D和表S5)。CG-PLP1到CG-PLP2的比较在相邻Tukey比较中未达到显著性,因此反义干预的效果被保守地解释为正向生产趋势,而非竞争通量减少的直接证据。
【数据】CG-PLP0:69.5 ± 4.9mg/L;CG-PLP1:147.0 ± 14.3mg/L(较CG-PLP0增加111.4%);CG-PLP2:216.8 ± 18.4mg/L(较CG-PLP1增加47.5%,为CG-PLP0的3.1倍);反义模块:300bp;统计:CG-PLP1至CG-PLP2未达显著性
3.3 多因素模块化优化与染色体Δrpe Δtaldo1缺失
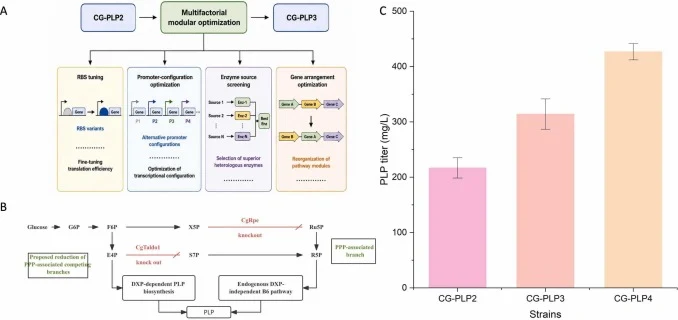
从CG-PLP2出发,探索性优化比较了酶源、RBS变体、基因排列和启动子构型(图3A和表S6)。这些筛选实验用于鉴定更高性能的整合构型,而非建立每个因素的独立机制贡献。所选构型CG-PLP3产生314.1 ± 27.4mg/L PLP,较CG-PLP2增加44.8%(图3C和表S5)。相应的筛选数据显示,替代的酶/RBS/组织选择产生了不同的PLP输出,支持组合途径优化的实用价值。随后完全敲除基因rpe和taldo1以生成CG-PLP4。CG-PLP4产生426.9 ± 14.8mg/L PLP,较CG-PLP3高35.9%(图3C和表S5)。该增加表明rpe/taldo1缺失是该菌株背景中有用的工程干预。由于未测量E4P、GAP、DXP、相关代谢物和13C通量,观察到的产量增加不应被解释为碳通量重分布的直接实验证明。
【数据】CG-PLP3:314.1 ± 27.4mg/L(较CG-PLP2增加44.8%);CG-PLP4:426.9 ± 14.8mg/L(较CG-PLP3增加35.9%);敲除基因:rpe、taldo1;其余参数:原文未详述
3.4 基于4HTP节点的途径模块化与启动子架构替换
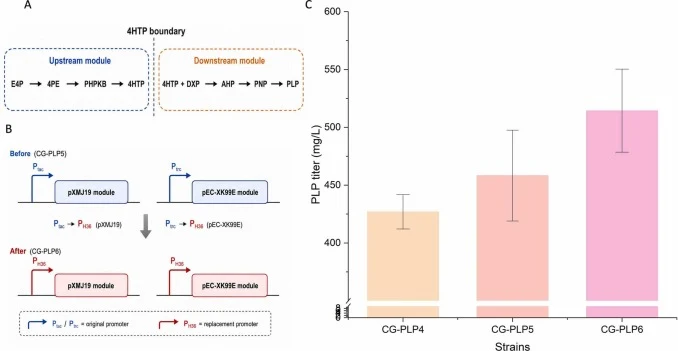
围绕4HTP节点重新分配途径组件以生成CG-PLP5。pXMJ19模块含有Ptac-ecepd-ecpdxb-eczwf-ASm,而pEC-XK99E含有Ptrc-ecpdxa-smpdxj-ecpdxh和第二个Ptrc-ecdxs单元(表S2和S3)。CG-PLP5产生458.3 ± 39.3mg/L PLP,较CG-PLP4数值增加7.3%。该单步未显示统计学显著改善,因此被解释为结构性途径重组步骤,而非细胞内4HTP形成或消耗经实验验证变化的证据。CG-PLP6保留了相同的编码基因分布,但将pXMJ的Ptac启动子和两个pEC的Ptrc启动子替换为PH36。CG-PLP6产生514.4 ± 35.9mg/L PLP,较CG-PLP5数值增加12.3%;该单独比较也未达到统计学显著性。总体而言,CG-PLP4到CG-PLP6序列产生了20.5%更高的平均效价,支持继续使用重组/启动子替换架构,同时避免关于细胞内4HTP水平或通量协调的机制性声明。
【数据】CG-PLP5:458.3 ± 39.3mg/L(较CG-PLP4增加7.3%,未达显著性);CG-PLP6:514.4 ± 35.9mg/L(较CG-PLP5增加12.3%,未达显著性);CG-PLP4至CG-PLP6总增幅:20.5%;启动子替换:PH36替代Ptac和Ptrc;其余参数:原文未详述
3.5 在保留的含PdxH架构中添加EcPdxK
PdxK和PdxH参与维生素B6 vitamer互变,为测试在前述途径修饰后添加EcPdxK是否能进一步影响PLP产量提供了依据。CG-PLP6已在pEC模块上保留了EcPdxH;CG-PLP7通过在pXMJ19模块中EcZwf下游添加EcPdxK而生成,同时保留CG-PLP6的pEC架构(表S2和S3)。CG-PLP7产生595.8 ± 38.9mg/L PLP,较CG-PLP6高15.8%,较CG-PLP0高8.6倍(图5和表S5)。该增加支持将EcPdxK添加作为保留含PdxH背景中有用的后期工程干预。本研究未定量PNP、PMP、其他维生素B6 vitamer、EcPdxK/EcPdxH表达水平或酶活性。因此,数据未直接建立EcPdxK相对于保留的含EcPdxH架构表达状态的明确相对添加,也未证明细胞内vitamer池的重分布。这些机制性可能性在讨论中作为未来验证的假设予以考虑。
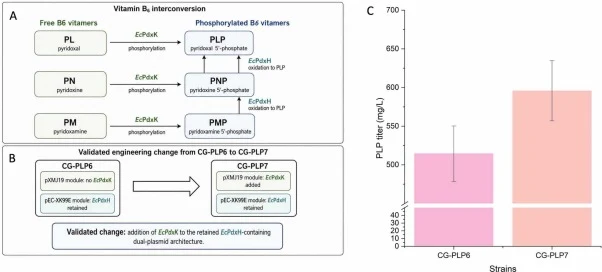
【数据】CG-PLP7:595.8 ± 38.9mg/L(较CG-PLP6增加15.8%,较CG-PLP0增加8.6倍);添加基因:EcPdxK(pXMJ19模块中EcZwf下游);保留:EcPdxH(pEC模块);未测量:PNP、PMP、其他vitamer、酶活
3.6 生物反应器验证
在5L生物反应器中评估CG-PLP7,以在受控培养条件下评估生产性能(图6A)。在表S7报告的代表性时程运行中,PLP在发酵过程中总体增加,96h达到2.1g/L,同时残留葡萄糖降至约0.1g/L。观察到PLP效价的轻微后期波动,因此该曲线被描述为总体增加而非持续累积。在三次独立5L运行中,96h的最终PLP效价分别为2.1、2.0和1.8g/L,平均为2.0 ± 0.2g/L(n = 3)。相应的平均生产率为20.6 ± 1.7mg/L/h。这些独立运行证明了CG-PLP7在测试的生物反应器工艺下可重复地实现克每升级PLP生产。代表性时程还指出了工艺优化的机会。96h时残留葡萄糖接近耗尽以及后期溶解氧的变化表明,补料策略、氧传递、诱导时机和培养时长值得进一步评估。这些工艺观察与基因工程机制分开解释。
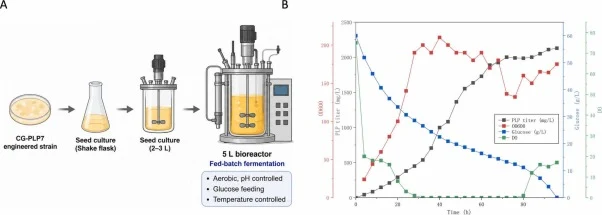
【数据】反应器:5L;96h PLP效价(三次独立运行):2.1、2.0、1.8g/L;平均效价:2.0 ± 0.2g/L(n=3);平均生产率:20.6 ± 1.7mg/L/h;代表性运行96h PLP:2.1g/L;残留葡萄糖:约0.1g/L;发酵时间:96h
讨论与解读
本研究的主要进展不在于首次建立DXP依赖型PLP途径——这已在先前CG-PLP0的工作中实现——而在于对该底盘进行的后续多层次重新设计。本研究结合了前体相关基因添加、反义干预、酶源/RBS/基因组织的探索性组合优化、染色体rpe/taldo1缺失、两个质粒间途径组件的重新分配、启动子架构替换、EcPdxK添加以及独立的5L验证。这一进展将早期的途径构建研究从PLP生物合成的概念验证推向了菌株架构的系统优化。HPLC定量的菌株系列显示从CG-PLP0的69.5 ± 4.9mg/L到CG-PLP7的595.8 ± 38.9mg/L的明显总体增加。然而,各步骤的幅度和统计强度并不一致。特别是CG-PLP5和CG-PLP6相对于其直接亲本显示数值上但单独不显著的增加。这种模式反对将每个设计步骤视为独立验证的代谢机制;相反,数据支持一种累积工程策略,其中若干结构变化共同贡献于最终生产表型。Δrpe Δtaldo1干预产生了较大的逐步增加之一,但本实验未包括E4P、GAP、DXP、4HTP或13C代谢的靶向测量。
编译者解读
该研究展示了一条清晰的逐步代谢工程路线:从途径前体强化、竞争支路抑制到途径模块化和辅因子互变基因补充,最终在5L反应器实现2.0g/L的PLP产量。方法学上,作者对每个工程步骤的统计显著性保持审慎,明确区分了工程假设与机制验证,这种严谨态度值得借鉴。局限在于多数步骤缺乏细胞内代谢物和通量的直接证据,反义模块的衰减效果未经转录/蛋白水平验证,后期步骤的增益未达统计显著。未来可通过13C通量分析和代谢物组学解析限速节点,并结合补料-溶氧联动控制进一步优化工艺。
参考来源
期刊:Biochemical Engineering Journal, 2026
DOI: 10.1016/j.bej.2026.110413
DOI: 10.1016/j.bej.2026.110413