来源:Harnessing Yarrowia lipolytica as a platform for animal-free and secretory production of human lactoferrin(Bioresource Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
人乳铁蛋白(hLF)是一种具有重要营养与治疗功能的铁结合糖蛋白。微生物重组生产有望替代从牛奶中提取,但高效分泌仍是瓶颈。本研究以解脂耶氏酵母为底盘,通过信号肽工程、分泌相关蛋白共表达与启动子工程,系统提升hLF的分泌能力。研究发现单纯提高基因拷贝数会导致细胞生长受损与形态异常,而增强蛋白折叠与分泌机器则可显著缓解这一负担。最优菌株在摇瓶中分泌409.9 mg/L hLF,在5 L补料分批发酵中滴度达3.14 g/L。
研究背景
乳铁蛋白(LF)属于转铁蛋白家族,是一种80 kDa的糖蛋白,广泛分布于乳汁、唾液等外分泌液、循环血清、白细胞颗粒以及上皮黏膜屏障中。LF具有铁结合、广谱抗菌、免疫调节、抗癌和抗炎等多种生物学功能,因而在婴儿配方奶粉、保健品、营养品和化妆品等领域应用广泛。目前LF的天然来源主要是人乳和牛乳。人初乳中乳铁蛋白浓度超过5 g/L,后期乳汁降至约2–3 g/L;牛初乳约含0.8 g/L,成熟牛乳仅0.03–0.49 g/L。从天然来源中提取纯化LF需要复杂的色谱或膜分离工艺,回收率低且生产成本高。人乳铁蛋白(hLF)与牛乳铁蛋白(bLF)氨基酸序列同一性约70%,但细微的结构和翻译后修饰差异可能引发人体免疫反应。因此,开发可扩展、无动物源的重组hLF生产平台具有重要意义。
研究方法
2.1 菌株与培养基
质粒构建、扩增和维持在大肠杆菌DH5α(Sangon,中国)中进行。亮氨酸营养缺陷型解脂耶氏酵母菌株Po1g用作重组hLF的表达宿主。LB培养基(Hopebiol,中国)用于培养大肠杆菌。酵母转化子的筛选在CSM-Leu平板上进行,该平板由20 g/L葡萄糖(Macklin,中国)、5 g/L硫酸铵(Macklin,中国)、1.7 g/L无硫酸铵YNB(Sunrise Science,美国)、0.7 g/L CSM-leu补充剂(Sunrise Science,美国)和20 g/L琼脂(Sangon,中国)配制。种子培养在相应的无琼脂液体培养基中进行。摇瓶中的重组酵母发酵在YPD肉汤中进行,配方为40 g/L葡萄糖(Macklin,中国)、10 g/L酵母提取物(Oxoid,英国)和20 g/L蛋白胨(Sangon,中国)。
【数据】菌株:大肠杆菌DH5α、解脂耶氏酵母Po1g;培养基:LB、CSM-Leu、YPD;葡萄糖:20 g/L(CSM-Leu)、40 g/L(YPD);硫酸铵:5 g/L;YNB:1.7 g/L;CSM-leu:0.7 g/L;琼脂:20 g/L;酵母提取物:10 g/L;蛋白胨:20 g/L
2.2 质粒构建
#### 2.2.1 构建表达不同信号肽的HLF质粒
整合型质粒pYLSC3-XPR2pre携带由杂合启动子hp4d、信号肽XPR2pre和终止子XPR2t组成的分泌表达单元,为本实验室先前保存;质粒pYLSC3′为缺失XPR2pre信号肽的版本(Wu, 2025)。质粒pYLSC3-hLFsp、pYLSC3-Lip2pre、pYLSC3-Lip2pre3xLA、pYLSC3-SP1、pYLSC3-SP3、pYLSC3-SP4和pYLSC3-SP207通过Gibson组装将预退火的引物对(hLFsp-F/hLFsp-R、Lip2pre-F/Lip2pre-R、Lip2pre3xLA-F/Lip2pre3xLA-R、SP1-F/SP1-R、SP3-F/SP3-R、SP4-F/SP4-R和SP207-F/SP207-R)与HindIII/KpnI线性化的pYLSC3′连接构建(Wu, 2025; Gibson, 2009)。在SPs下游添加XbaI和KpnI识别位点以便插入目标基因。Gibson组装使用2×Seamless Cloning Mix(Beyotime,中国)进行。质粒pYLSC3-XPR2prepro通过PCR扩增的XPR2pro片段(使用引物对XPR2pro-F/XPR2pro-R)与SfiI/KpnI线性化的pYLSC3-XPR2pre经Gibson组装连接构建。质粒pYLSC3-Lip2prepro通过预退火引物对Lip2pro-F/Lip2pro-R与XbaI/KpnI线性化的pYLSC3-Lip2pre经Gibson组装构建。在XPR2prepro和Lip2prepro下游添加HindIII和KpnI识别位点。编码成熟hLF(氨基酸20–710)的HLF基因(Uniprot ID: P02788)经解脂耶氏酵母密码子优化后由Genewiz(苏州,中国)化学合成。使用正向引物XPR2pre-hLF-F、hLFsp-hLF-F、Lip2pre-hLF-F、Lip2pre3xLA-hLF-F、SP1-hLF-F、SP3-hLF-F、SP4-hLF-F、SP207-hLF-F、XPR2prepro-hLF-F和Lip2prepro-hLF-F与反向引物hLF-R扩增片段,然后通过Gibson组装插入带有相应SPs的线性化骨架载体,分别得到pYLSC3-XPR2pre_hLF、pYLSC3-hLFsp_hLF、pYLSC3-Lip2pre_hLF、pYLSC3-Lip2pre3xLA_hLF、pYLSC3-SP1_hLF、pYLSC3-SP3_hLF、pYLSC3-SP4_hLF、pYLSC3-SP207_hLF、pYLSC3-XPR2prepro_hLF和pYLSC3-Lip2prepro_hLF。编码C端6xHis标签hLF的质粒pYLSC3-Lip2pre3xLA_hLF6H通过PCR扩增的HLF片段(使用引物对Lip2pre3xLA-hLF-F/hLF6H-R)与XbaI/KpnI线性化的pYLSC3-Lip2pre3xLA经Gibson组装连接构建。对于TurboGFP表达,TurboGFP编码序列从本实验室保存的质粒中扩增(Hong, 2025),通过Gibson组装插入SfiI/KpnI线性化的pYLSC3-XPR2pre,生成pYLSC3-XPR2pre_TurboGFP。
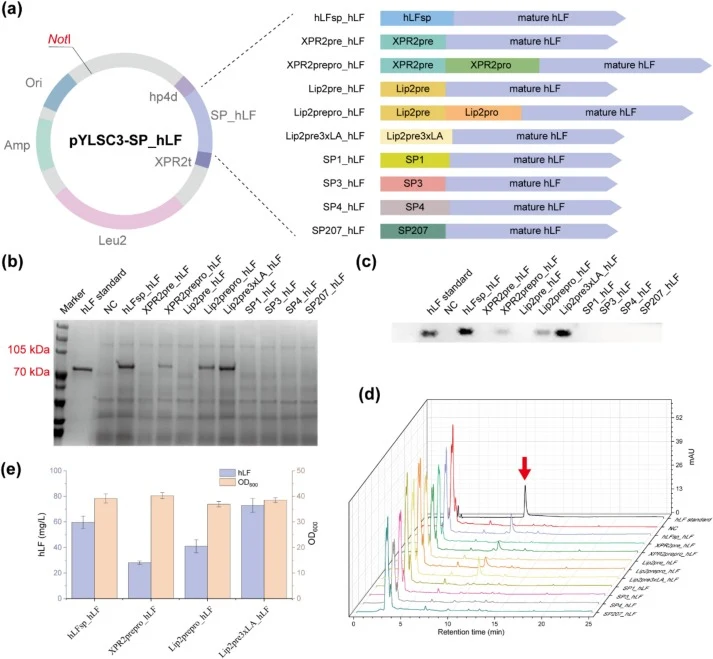
【数据】质粒骨架:pYLSC3-XPR2pre、pYLSC3′;启动子:hp4d;信号肽:XPR2pre、XPR2prepro、Lip2pre、Lip2prepro、Lip2pre3xLA、hLFsp、SP1、SP3、SP4、SP207;终止子:XPR2t;限制性酶:HindIII、KpnI、XbaI、SfiI、NotI、AvrII、SalI、NheI;Gibson组装试剂:2×Seamless Cloning Mix(Beyotime);HLF基因:Uniprot ID P02788,氨基酸20–710;密码子优化与合成:Genewiz(苏州);标签:C端6xHis
#### 2.2.2 构建含不同拷贝数HLF表达盒的质粒
设计有Yalibrick特征的质粒pYLSC3可通过将AvrII/SalI产生的供体插入片段连接到NheI/SalI线性化的受体质粒来构建多基因表达盒(Wu, 2025; Wong, 2017)(见补充材料)。具体而言,hLF表达盒通过AvrII/SalI双酶切从pYLSC3-Lip2pre3xLA_hLF质粒中释放。该片段与NheI/SalI线性化的pYLSC3-Lip2pre3xLA_hLF使用T4连接酶(Vazyme,中国)连接,得到双拷贝构建体pYLSC3-Lip2pre3xLA_hLFx2。以pYLSC3-Lip2pre3xLA_hLFx2为受体载体重复该克隆循环,生成三拷贝和四拷贝衍生物pYLSC3-Lip2pre3xLA_hLFx3和pYLSC3-Lip2pre3xLA_hLFx4。相同方法用于生成携带不同拷贝数TurboGFP表达盒的质粒。
【数据】限制性酶:AvrII、SalI、NheI;连接酶:T4连接酶(Vazyme);拷贝数:1–4拷贝;质粒:pYLSC3-Lip2pre3xLA_hLFx2、x3、x4
#### 2.2.3 构建共表达HLF和分泌相关蛋白的质粒
质粒pYL24携带强启动子pTDH1和终止子MIG1t(Gu, 2024),用作构建分泌相关蛋白表达盒的骨架。例如,质粒pYL24-ylCNE1通过将ylCNE1基因(使用引物yl24-ylCne1-F/yl24-ylCne1-R从Po1g基因组PCR扩增)经Gibson组装插入XbaI/KpnI线性化的pYL24构建。对于HLF与ylCNE1的共表达,ylCNE1表达盒使用引物Sub-F/Sub-R从pYL24-ylCNE1扩增,插入NheI/SalI线性化的pYLSC3-Lip2pre3xLA_hLF,得到双表达质粒pYLSC3-Lip2pre3xLA_hLF-ylCNE1。为构建同时表达HLF和多个分泌相关蛋白的质粒,采用迭代组装策略。例如,质粒pYLSC3-Lip2pre3xLA_hLF-ylHAC1sp-ylCNE1通过将ylCNE1表达盒(使用引物Sub-F2/Sub-R从质粒pYL24-ylCNE1扩增)插入XbaI线性化的pYLSC3-Lip2pre3xLA_hLF-ylHAC1sp生成。其他分泌相关蛋白用相同方法整合到载体中。为提高遗传稳定性,使用替代启动子(pFBA、pGPD1、pEXP1和pTEFin)和终止子(PEX20t、TPI1t)驱动分泌相关基因的表达。使用上述相同策略生成由不同启动子驱动HLF和分泌相关基因同时表达的质粒。本工作中使用的完整质粒和引物列表见支持信息(见补充材料)。
【数据】骨架质粒:pYL24;启动子:pTDH1、pFBA、pGPD1、pEXP1、pTEFin;终止子:MIG1t、PEX20t、TPI1t;分泌相关基因:ylCNE1、ylHAC1sp;限制性酶:XbaI、KpnI、NheI、SalI
2.3 菌株转化
感受态大肠杆菌DH5α细胞用Gibson组装或T4连接反应产物通过常规热激程序转化,阳性筛选在含100 mg/L氨苄青霉素的LB平板上进行。37°C过夜培养后,挑取单菌落通过菌落PCR或酶切验证构建是否成功。对于酵母转化,所有pYLSC衍生质粒首先用NotI线性化,然后通过化学转化法整合到解脂耶氏酵母Po1g菌株的pBR对接平台(Catherine Madzak, 2000)。简要而言,Po1g菌株单菌落在3 mL YPD中30°C培养18 h,取200 μL培养物离心收集(3000 rpm,5 min)。去除上清,细胞沉淀重悬于80 μL 50% PEG4000中,加入5 μL煮沸的鲑鱼精DNA、5 μL 2 M醋酸锂、2.5 μL 2 M DTT和7.5 μL DNA片段。39°C孵育1小时后,转化子涂布于亮氨酸缺陷型CSM-Leu平板,30°C培养至单菌落出现。所有工程酵母菌株编目于支持信息中(见补充材料)。
【数据】大肠杆菌:DH5α;氨苄青霉素:100 mg/L;培养温度:37°C(大肠杆菌)、30°C(酵母);酵母转化:NotI线性化、PEG4000 50%、醋酸锂2 M、DTT 2 M、39°C孵育1 h;酵母培养:3 mL YPD、18 h
2.4 培养条件与样品收集
#### 2.4.1 摇瓶发酵
将选择性平板上的单菌落转移至CSM-Leu液体培养基中进行种子扩增。30°C培养18–24 h后,通过测量600 nm处光密度(OD600)估算细胞密度。随后将种子培养物接种至含30 mL YPD培养基的250 mL摇瓶中,使初始OD600达到0.1。发酵在250 rpm、30°C条件下进行120 h。结束后记录细胞密度(OD600),培养物在4°C、12000 rpm条件下离心
【数据】种子培养:CSM-Leu液体培养基、30°C、18–24 h;发酵容器:250 mL摇瓶;装液量:30 mL YPD;初始OD600:0.1;转速:250 rpm;温度:30°C;时间:120 h;离心:4°C、12000 rpm
研究结果
3.1 通过信号肽工程优化hLF分泌
hLF的高效分泌需要合适的信号肽(SP)——一段短的N端序列,引导新生多肽进入分泌途径(Owji, 2018)。在解脂耶氏酵母中,异源蛋白的分泌主要由来源于XPR2和Lip2基因的SPs引导(Celinska, 2018; Xingyu Zhu, 2023)。除这些经典SPs外,通过分泌组分析(Yu, 2023)、基因组和转录组数据挖掘(Celinska, 2018)以及突变文库筛选(Wu, 2025)已鉴定出替代SPs。由于解脂耶氏酵母与哺乳动物细胞类似,主要依赖共翻译转运进行蛋白分泌(Celinska and Nicaud, 2019),我们推测hLF的天然信号肽(hLFsp)在该酵母宿主中可能仍具有功能。为评估各种SPs的分泌效率,我们构建了十株解脂耶氏酵母菌株,表达密码子优化的HLF基因与不同SPs的框内融合。这些包括hLF的天然SP(hLFsp)和九种解脂耶氏酵母来源的SPs(XPR2pre、XPR2prepro、Lip2pre、Lip2prepro、Lip2pre3xLA、SP1、SP3、SP4和SP207)(表1),得到菌株Yali-hLF-01至Yali-hLF-10。在所有构建体中,SP_hLF表达盒由杂合启动子hp4d驱动,由终止子XPR2t终止(图1a)。摇瓶培养5天后,收集培养上清进行分析。SDS-PAGE分析显示,十个构建体中只有四个在上清中产生约80 kDa的可检测条带,与hLF的预期大小一致(图1b)。这些条带的身份通过western blotting进一步确认(图1c)。值得注意的是,hLFsp产生了与Lip2pre3xLA相当的信号,尽管其来源于哺乳动物系统。虽然宿主适应性SPs通常有效,但九种解脂耶氏酵母来源的SPs中只有三种能够实现可检测的hLF分泌,凸显了SP性能的上下文依赖性。结果还表明,异源SP可能优于宿主适应性SPs,特别是对于大型且结构复杂的人类糖蛋白。为实现乳铁蛋白的检测和定量,采用HPLC分析(Yao, 2012; Tsakali, 2019),预先用乙腈沉淀(见方法2.6)。使用HPLC,在hLFsp_hLF、XPR2prepro_hLF、Lip2prepro_hLF和Lip2pre3xLA_hLF构建体的样品中检测到明显的hLF峰(图1d),而在其余构建体或非表达对照菌株中未观察到相应峰,与SDS-PAGE和western blot结果一致。通过将商业hLF掺入整合空载体(Po1g-pYLSC3′)的非表达对照菌株培养上清中,评估乙腈沉淀后hLF的回收效率。在测试条件下,该方法对低于200 mg/L的hLF浓度实现了66.63%的回收率(见补充材料)。HPLC-based hLF浓度据此校准,超出线性范围的样品在分析前稀释。定量结果显示,Lip2pre3xLA实现了最高的胞外滴度(73.0 mg/L),其次是hLFsp(59.7 mg/L)(图1e)。常规SPs仅由pre序列组成,通常足以引导蛋白进入分泌途径(Wu, 2025; Celinska, 2018)。然而,我们的结果表明,仅pre序列不足以支持解脂耶氏酵母中hLF的高效分泌。例如,携带XPR2pre和Lip2pre的构建体未能分泌hLF,而其相应的prepro变体(XPR2prepro和Lip2prepro)则实现了可测量的分泌。值得注意的是,表现最佳的SPs——Lip2pre3xLA和hLFsp——均包含19个氨基酸,暗示SP长度可能有助于分泌效率。Lip2pre与Lip2pre3xLA之间的比较进一步表明,延长的二肽片段的存在对分泌性能起重要作用。为验证这一假设,在XPR2pre中引入两个额外的LA二肽重复,生成XPR2pre3xLA(见补充材料)。该工程化SP实现了可检测的hLF分泌,但胞外滴度相对较低,为6.85 mg/L(见补充材料)。为进一步剖析二肽片段的贡献,我们在hLFsp和Lip2pre3xLA之间交换了相应基序,生成hLFsp3xLA和Lip2preLGCA变体(见补充材料)。hLFsp3xLA的分泌效率降低了75.7%,而hLFspLGCA相对于亲本变体仅略有下降(9.3%)(见补充材料),这表明Lip2pre3xLA的N区是稳健的,信号肽酶切割位点附近的具体残基也是高效hLF分泌的关键决定因素。基于其优越且稳健的性能,Lip2pre3xLA被选为后续菌株工程的最佳SP。
【数据】菌株:Yali-hLF-01至Yali-hLF-10;SPs数量:10种;培养时间:5天;hLF分子量:约80 kDa;HPLC回收率:66.63%(hLF<200 mg/L);最高胞外滴度:Lip2pre3xLA 73.0 mg/L;hLFsp 59.7 mg/L;XPR2pre3xLA 6.85 mg/L;hLFsp3xLA分泌效率降低:75.7%;hLFspLGCA降低:9.3%;SP长度:Lip2pre3xLA和hLFsp均为19个氨基酸
3.2 信号肽切割位点确认
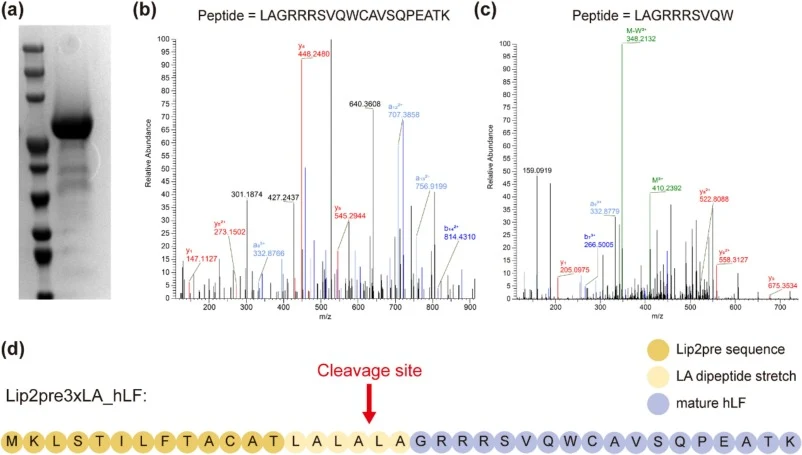
为纯化重组hLF,将C端6xHis标签融合至Lip2pre3xLA_hLF,得到质粒pYLSC3-Lip2pre3xLA_hLF6H(见补充材料)。发酵后,收集携带质粒pYLSC3-Lip2pre3xLA_hLF6H的菌株Yali-hLF6H-06的培养上清,使用Ni-NTA琼脂糖树脂纯化。随后的SDS-PAGE分析确认了纯化产物中hLF的高纯度(图2a)。此外,HPLC分析表明纯化的重组hLF显示与商业hLF相同的保留时间(见补充材料),表明重组hLF成功纯化。为确定Lip2pre3xLA_hLF的信号肽酶(SPase)切割位点,对纯化的重组hLF进行LC-MS/MS分析。蛋白样品分别用Lys-C和Proteinase K消化,所得肽段针对Lip2pre3xLA_hLF6H序列进行分析。Lys-C和Proteinase K消化的序列覆盖率分别达到52.8%和73.7%(见补充材料),进一步确认了分泌的重组hLF的身份。N端片段分别从Lys-C和Proteinase K消化中鉴定为LAGRRRSVQWCAVSQPEATK和LAGRRRSVQWC(图2b-c及见补充材料)。这些结果揭示Lip2pre3xLA信号肽主要在残基17和18之间切割。值得注意的是,来源于信号肽的两个残基Leu-Ala(LA)保留在分泌的重组hLF的N端(图2d)。尽管这两残基延伸很小,但其对hLF结构特性和生物学功能的潜在影响不能排除。需要进一步的生化与功能表征以及安全性评估,以确定重组hLF是否适用于特定的食品或制药应用。
【数据】菌株:Yali-hLF6H-06;质粒:pYLSC3-Lip2pre3xLA_hLF6H;标签:C端6xHis;纯化树脂:Ni-NTA琼脂糖;消化酶:Lys-C、Proteinase K;序列覆盖率:Lys-C 52.8%、Proteinase K 73.7%;N端片段序列:LAGRRRSVQWCAVSQPEATK(Lys-C)、LAGRRRSVQWC(Proteinase K);切割位点:残基17和18之间;N端残留残基:Leu-Ala
3.3 基因拷贝数对hLF产量的影响
调整基因拷贝数是增强基因表达和重组蛋白生产的常用策略(Wang, 2024)。为实现多拷贝基因组整合,使用Yalibricks组装策略(Wong, 2017)构建携带多个HLF表达盒的质粒(见补充材料)。为首先评估多拷贝整合对重组蛋白表达和分泌的影响,我们使用TurboGFP作为报告基因,与XPR2pre信号肽融合用于分泌,并构建含多个表达盒的质粒(图3a)。通过菌落PCR验证了多达四个TurboGFP表达盒的成功整合(见补充材料)。增加TurboGFP表达盒数量导致细胞内和细胞外荧光逐步升高
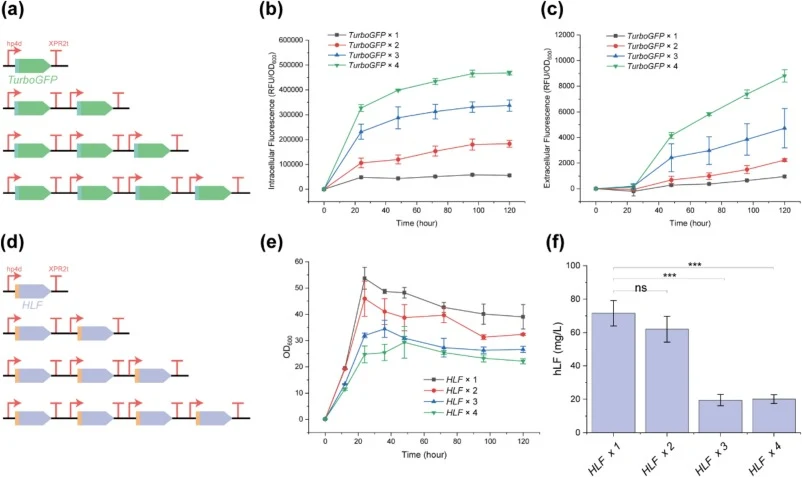
【数据】报告基因:TurboGFP;信号肽:XPR2pre;拷贝数:最多4拷贝;验证方法:菌落PCR;检测指标:细胞内和细胞外荧光
讨论与解读
本研究将解脂耶氏酵母开发为hLF分泌生产的平台底盘。通过信号肽筛选,鉴定出Lip2pre3xLA是hLF分泌的高效SP。值得注意的是,hLF的天然SP在解脂耶氏酵母中也保留了功能,凸显了异源SPs在该酵母宿主中的潜力。基于MS/MS的N端测序分析确认了Lip2pre3xLA的高效切割。然而,两个信号肽来源的残基(LA)保留在分泌的重组hLF的N端,需要进一步的生化与功能表征以及安全性评估,以确定重组hLF是否适用于特定的食品或制药应用。单纯增加HLF基因拷贝数会造成严重的细胞负担,表现为生长缺陷和丝状形态。相比之下,通过共表达分泌相关蛋白——特别是UPR调节因子HAC1p以及分子伴侣Pdi1p和Cne1p——来缓解这一瓶颈,有效增强了hLF的折叠和分泌能力,导致更高的胞外滴度。重要的是,基因拷贝数和分泌机器的协同优化被证明是必不可少的。在改变伴侣基因的调控元件以提高遗传稳定性后,优化菌株Yali-hLF-43在摇瓶中实现了409.9 mg/L的胞外hLF滴度,在5 L补料分批生物反应器中达到3143.6 mg/L。
编译者解读
该研究的方法论价值在于揭示了一个合成生物学中常被忽视的规律:基因拷贝数与分泌能力之间存在非线性关系。简单堆叠表达盒反而触发细胞负担,而共表达折叠与分泌辅助因子才是释放产量的关键。这一"表达-分泌平衡"策略对其他复杂糖蛋白的微生物制造具有借鉴意义。局限在于,信号肽切割后残留的LA二肽对hLF生物活性的影响尚未评估,且5 L发酵罐到工业规模的放大可行性仍需验证。
参考来源
期刊:Bioresource Technology, 2026
DOI: 10.1016/j.biortech.2026.135927
DOI: 10.1016/j.biortech.2026.135927