来源:Assessment of radiotropic behavior in isolates of Aspergillus niger, Aspergillus calidoustus, and Paecilomyces variotii(Fungal Biology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
来自高辐射环境的产黑色素丝状真菌曾被报道具有“趋辐射性”——菌丝会朝向电离辐射源定向生长。然而,实验方法与结果的不一致长期阻碍了人们对这一现象关键影响因素的理解。本研究以四株真菌为对象,在距¹³⁷Cs源等距条件下培养7天,系统评估了菌丝生长速率与方向的变化。结果显示,伽马辐射暴露并未显著改变任何菌株的相对生长速率或生长方向,未检测到可测量的趋辐射行为。
研究背景
产黑色素(如黑色素化)真菌已进化出在电离辐射剂量率超过自然本底的环境中生存和繁殖的能力。这类环境包括1986年切尔诺贝尔核电站(ChNPP)事故后周边区域、北极与南极高海拔生境、核反应堆池水以及国际空间站(ISS)。许多耐辐射真菌的共同特征是产生黑色素——一种组成型合成的深色色素,在细胞壁中组装成约100 nm厚的紧密颗粒层。这些色素层被认为通过淬灭自由基、将β粒子能量转化为旋转与振动活动并以热能耗散,从而提供针对电离辐射的防御机制。诱导性分子响应(如胁迫响应蛋白表达增强和次级代谢产物产生)也被报道可赋予真菌在辐射密集环境中的保护。在此背景下,趋辐射性——即真菌菌丝朝向电离辐射源定向生长的现象——成为理解真菌-辐射相互作用的重要行为学议题。然而,既往研究在实验方法和结果上的不一致性,使得对趋辐射性表达的关键因素仍缺乏清晰认识。本研究选取了四株具有不同辐射抗性背景的真菌分离株,在标准化实验条件下评估其趋辐射行为。
研究方法
2.1 真菌菌株
评估趋辐射行为的四株暗色真菌为:A. niger van Tieghem(ATCC 6275)、A. calidoustus 菌株 JC-1043、P. variotii SNL-1 和 P. variotii IMV-00236。A. niger 是一种普遍存在、产黑色素的真菌,其菌株对高水平辐射表现出抗性;该菌已从 ChNPP 和国际空间站(ISS)中分离获得。本实验使用的 A. calidoustus JC-1043 菌株是在 Mars 2020 装配期间从 NASA 洁净室(KSC-PHSF)分离的,在模拟火星条件(包括高中子暴露)下表现出优异的存活能力。测试的 P. variotii 菌株具有不同的实验背景。SNL-1 菌株此前被报道在紫外和伽马辐照下会改变色素沉着,但生长速率不受这两种辐射源影响;而 P. variotii IMV-00236 是从 ChNPP 4号机组墙面分离的。值得注意的是,IMV-00236(最初鉴定为 C. cladosporioides)曾被报道具有趋辐射性,并在 UV-C 辐照下改变蛋白表达。选择这些真菌是因为它们的属均属于同一目(Eurotiales,散囊菌目),且已报道的辐射抗性和适应性表型谱存在差异。
【数据】菌株:A. niger ATCC 6275、A. calidoustus JC-1043、P. variotii SNL-1、P. variotii IMV-00236;培养基:原文未详述;温度:原文未详述;时间:原文未详述;数值:原文未详述
2.2 ¹³⁷Cs 剂量率表征
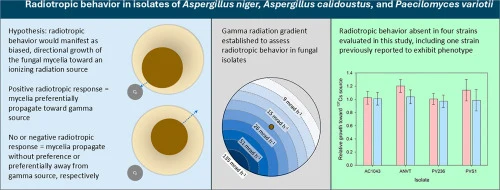
鉴于实验几何构型,真菌样品从¹³⁷Cs源接受的剂量率取决于菌丝从中心菌饼向外朝培养皿边缘的生长情况。选择¹³⁷Cs源是基于我们此前的工作,以及它在 ChNPP 周围环境中的相对丰度和已报道的真菌相互作用。剂量-距离校准通过将九个热释光剂量计(TLD)以2至10 cm的递增距离排列在培养皿中、距¹³⁷Cs源不同位置来完成(图1)。含有 TLD 的培养皿按照与真菌辐照实验完全相同的几何构型排列,确保 TLD 芯片面向辐射源,且剂量计之间无重叠以防止衰减损失。一个独立的背景对照 TLD 被放置在距屏蔽实验装置的铅围挡约40 cm处。经过一周连续暴露后,取出剂量计并进行处理。所得数据按距离作图,以估算真菌在活跃菌丝生长期间经历的动态剂量率。
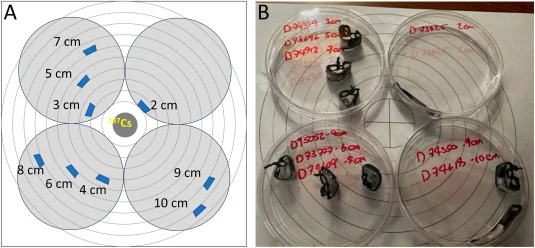
【数据】辐射源:¹³⁷Cs;TLD数量:9个;距离范围:2–10 cm;背景对照距离:约40 cm;暴露时间:1周(7天);温度:原文未详述;数值:原文未详述
2.3 实验设置与数据分析
我们假设趋辐射行为会表现为真菌菌丝朝向电离辐射源的偏向性定向生长。为使各样品接受等效辐射,将四个各含中心菌饼的培养皿排列成正方形,¹³⁷Cs源置于中心(图2)。在每个培养皿边缘添加方向标记,以确保暴露期间方向一致。菌饼按此前描述的方法转移至新鲜马铃薯葡萄糖琼脂(PDA)平板,在辐照前于25°C预培养两天。随后对平板成像并转移至铅砖屏蔽的辐照室。同时,将四个相同真菌的未辐照对照平板以相同排列放置在辐照室旁;这些对照平板经历相似的环境条件,但保持屏蔽,不受¹³⁷Cs源的伽马发射影响。真菌在这些条件下继续培养七天,届时对平板成像并处置。整个实验期间记录湿度和温度,以确保环境条件保持恒定。菌丝生长速率使用前沿边缘测量法测定,所有用于确定生长速率的数字图像处理均使用 ImageJ 进行。为量化潜在的趋辐射响应,通过将朝向¹³⁷Cs源的测量生长速率除以反方向(距源180°)的生长速率来计算定向生长比率。比率值大于1将表明优先朝向更高伽马辐照剂量方向生长。所有数据使用双因素方差分析(Two-Way ANOVA)进行分析,主效应为:(1) 真菌物种,(2) 辐射暴露(辐照/对照),并基于实验的完全区组设计(4种真菌 × 2种处理)加入交互项。
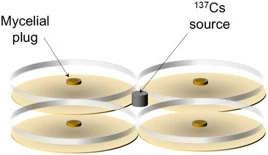
【数据】培养皿数量:4个/组;菌饼位置:中心;预培养温度:25°C;预培养时间:2天;辐照暴露时间:7天;生长速率测定方法:前沿边缘测量法;图像处理软件:ImageJ;统计方法:双因素ANOVA;湿度/温度:全程记录(原文未给出具体数值)
研究结果
3.1 辐射梯度表征
真菌经历的伽马辐照梯度通过将 TLD 放置在距¹³⁷Cs源确定距离的培养皿中来表征(图1)。剂量率基于七天暴露期测量,结果展示于图3A。正如预期,剂量率与距¹³⁷Cs源的距离呈平方反比关系。利用这些经验值,我们构建了真菌所经历伽马剂量率的二维图形表示(图3B)。观测到的剂量率范围为135 mrad h⁻¹(2 cm处)至9 mrad h⁻¹(10 cm处)。在此条件下,中心菌饼初始经历的剂量率约为20 mrad h⁻¹,在七天实验过程中累积的总电离剂量约为3.4 rad(34 mGy)。作为比较,ChNPP 的历史暴露率(主要为¹³⁷Cs伽马辐射)在1997–1998监测期间为1.5至800 mR h⁻¹(对应吸收剂量率1.5至800 mrad h⁻¹)。近十年后,切尔诺贝尔隔离区的吸收剂量率据报道很少超过0.00015 Gy h⁻¹(15 mrad h⁻¹)。因此,本实验建立的伽马辐射梯度与切尔诺贝尔真菌经历的伽马辐照水平大致一致。基于该空间模型,当菌丝从菌饼径向向外生长时,朝向源方向(0°)生长的菌丝经历递增的伽马剂量率,而背离源方向(180°)生长的菌丝经历递减的伽马剂量率。我们假设正向趋辐射响应将表现为朝向¹³⁷Cs源的生长速率增加(基于图3所示的梯度)。需要指出的是,除伽马射线外,¹³⁷Cs还发生β衰变,释放最大端点能量(Eβmax)为1173 keV(5% Iβ)和512 keV(95% Iβ)的β粒子,但这些不是本研究的重点。¹³⁷Cs发射的1173 keV β粒子可穿透约0.51 mm不锈钢和2.79 mm塑料,而512 keV发射的穿透力显著更低。因此,源的双层封装不锈钢外壳加上聚苯乙烯培养皿壁提供了足够的衰减,完全屏蔽了生物靶标免受β辐照。
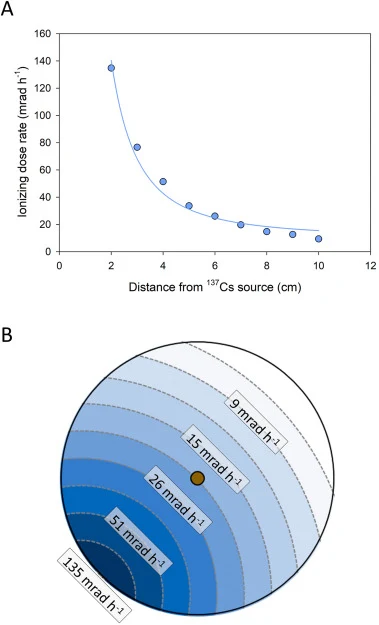
【数据】距离范围:2–10 cm;剂量率范围:135 mrad h⁻¹(2 cm)至9 mrad h⁻¹(10 cm);中心初始剂量率:约20 mrad h⁻¹;七天累积剂量:约3.4 rad(34 mGy);平方反比拟合:y = 10.3 + 520.8 d⁻²(校正R² = 0.978;P < 0.001);ChNPP历史暴露率:1.5–800 mrad h⁻¹;切尔诺贝尔隔离区吸收剂量率:≤0.00015 Gy h⁻¹(15 mrad h⁻¹);β粒子端点能量:1173 keV(5% Iβ)和512 keV(95% Iβ)
3.2 真菌生长速率与方向
四种真菌分离株在存在和不存在¹³⁷Cs源条件下的生长速率(mm d⁻¹)如图4A所示。生长数据的双因素ANOVA揭示真菌分离株因素存在显著主效应(P < 0.001;表1)。A. calidoustus(AC1043)、A. niger(AVNT)、P. variotii SNL-1(PVS1)和 P. variotii IMV-00236(PV236)的基线生长速率分别为3.0 ± 0.2、4.3 ± 0.2、3.3 ± 0.3和3.0 ± 0.2 mm d⁻¹。事后 Holm-Sidak 多重比较分析表明,A. niger(AVNT)的生长速率显著高于其他三个分离株。关键的是,统计分析还表明伽马辐射的存在或缺失并未显著影响不同真菌的生长速率。此外,虽然辐射未增强这些物种中任何一个的生长,但与未辐照对照样品相比同样未引起生长抑制(图4A)。在评估的真菌中,值得注意的是只有 P. variotii IMV-00236(PV236)最初是从高电离辐射环境中分离的,且此前文献报道其显示趋辐射行为。在评估朝向¹³⁷Cs源相对生长的双因素ANOVA中,未观察到显著主效应或交互作用(表2)。基于此前关于 P. variotii IMV-00236 趋辐射响应的文献,我们预期观察到优先的菌丝生长和朝向辐射矢量的加速生长速率。然而,与各自的未辐照对照相比,没有任何伽马辐照分离株表现出优先生长(图4B)。A. niger 和 A. calidoustus 未表现出朝向(正向)或背离(负向)生长的方向性差异,表明在这些实验条件下这些物种缺乏趋辐射效应。同样,P. variotii SNL-1 也未表现出相对于¹³⁷Cs源的优先生长,这与我们此前发现其基线生长不受伽马辐照影响的结果一致。虽然这三个真菌分离株(即 A. niger、A. calidoustus 和 P. variotii SNL-1)此前未被报道具有趋辐射效应,但它们已被证明对高水平紫外辐照具有抗性。与历史报道相比,本研究中 P. variotii IMV-00236 趋辐射行为的差异可能源于实验室驯化。自最初从 ChNPP 分离以来,在缺乏选择性辐射压力的条件下长期连续传代,可能导致驱动趋辐射性的遗传或代谢适应性衰减或丢失。另一种可能是,我们设计中使用的特定剂量率、总注量、暴露时长和/或长度尺度不足以正确表征趋辐射行为。因此,需要使用不同辐射源、几何构型和/或辐照时长的额外研究来确认/反驳 P. variotii IMV-00236 的趋辐射行为。
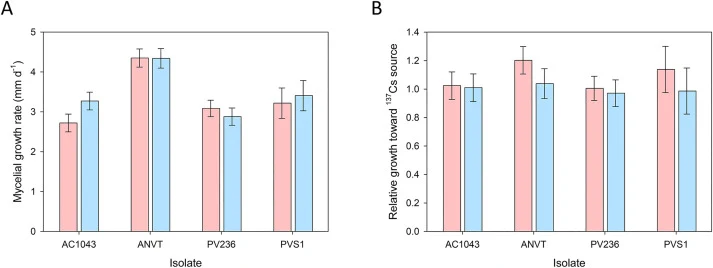
【数据】菌株:AC1043、AVNT、PVS1、PV236;基线生长速率:3.0 ± 0.2、4.3 ± 0.2、3.3 ± 0.3、3.0 ± 0.2 mm d⁻¹;ANOVA真菌分离株主效应:P < 0.001;辐射主效应:不显著;交互作用:不显著;A. niger 生长速率:显著高于其他三株(Holm-Sidak事后检验);相对生长方向比率:无显著差异
讨论与解读
真菌,特别是黑色素化物种,通常对高急性剂量电离辐射具有抗性,这一现象已在实验室条件下得到充分研究。相比之下,对于真菌在复杂放射性污染生态系统中的抗性和适应性,我们缺乏全面认识——在这些环境中,真菌可以在高水平慢性辐照下繁衍多代。过去十年的数据表明,驱动慢性辐射抗性与急性辐射抗性的机制存在根本差异。例如,黑色素被报道对 C. neoformans 的急性伽马辐射几乎不提供保护作用;相反,黑色素化本身通过抑制参与呼吸和细胞生长的基因来改变转录组。反之,在污染环境中慢性辐射水平下存活的多种暗色真菌中,黑色素与辐射抗性及潜在的新生理特征(如辐射刺激和辐射合成)直接相关。例如,来自 ChNPP 的 C. cladosporioides 396菌株中,蛋白质合成、脂质过氧化和谷胱甘肽活性的改变与黑色素产生相关,该菌株曾被报道显示趋辐射行为。
本研究在标准化实验条件下,对四株具有不同辐射抗性背景的真菌进行了趋辐射行为评估。结果明确显示,在所用剂量率梯度(9–135 mrad h⁻¹)、7天暴露时长和实验几何构型下,未检测到任何菌株的可测量趋辐射响应。即便是此前被报道具有趋辐射行为的 P. variotii IMV-00236,在本实验中也未表现出优先朝向辐射源的生长。这一阴性结果与历史报道之间的矛盾,可能反映了实验室驯化导致的适应性衰减,也可能说明趋辐射行为的表达依赖于特定的剂量率、总注量或暴露时长参数,而这些参数在本研究设计中未被满足。
编译者解读:本研究以严格的对照设计和剂量学表征,对真菌趋辐射性这一颇具争议的现象进行了系统检验。从合成生物学视角看,其价值不在于阳性发现,而在于方法学示范——将热释光剂量计校准、标准化几何构型和双因素方差分析引入真菌-辐射行为研究,为领域提供了可复现的实验框架。阴性结果提示:趋辐射性可能并非稳定的表型特征,而是高度依赖环境参数的条件性响应,甚至可能已在实验室传代中丢失。若要将趋辐射行为开发为合成生物学工具(如辐射引导的生物修复或定向生长系统),首先需要明确其遗传基础和触发条件。当前结果提醒我们,对“极端环境适应性”的表型声明应保持审慎,标准化验证不可省略。
参考来源
期刊:Fungal Biology, 2026
DOI:10.1016/j.funbio.2026.101863
DOI: 10.1016/j.funbio.2026.101863