来源:Functional analysis of Sec14-family proteins in the filamentous fungus Aspergillus nidulans(Fungal Genetics and Biology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
丝状真菌的极性菌丝生长依赖囊泡运输,而Sec14家族磷脂转移蛋白在这一过程中扮演关键角色。然而,丝状真菌中Sec14/SFH蛋白的系统功能研究仍十分匮乏。本研究以构巢曲霉(Aspergillus nidulans)为模型,鉴定出8个Sec14家族基因——1个SEC14直系同源基因secN和7个sfh基因(sfhA–sfhG),通过基因敲除、表型分析、脂质组学和亲和纯化等手段,揭示SecN是维持正常生长、无性发育和磷脂稳态的主要成员,而其他Sfh蛋白可能具有冗余或条件特异性功能。
研究背景
丝状真菌以延长菌丝的方式生长,菌丝顶端通过极性延伸实现扩展。顶端生长过程中,囊泡运输将膜组分和细胞壁合成酶等蛋白质输送至顶端,是基础性过程。菌丝亚顶端区域则通过内吞作用回收膜蛋白,维持稳定的极性生长。因此,理解囊泡运输通路的调控机制,不仅有助于揭示丝状真菌形态发育的原理,也对提高酶产量和开发感染防控策略具有参考价值。
SEC14是最早在酿酒酵母分泌通路突变体分析中发现的基因之一,编码磷脂酰肌醇(PI)/磷脂酰胆碱(PC)转移蛋白。酵母中Sec14及其类似物Sfh蛋白参与多种运输和脂质相关过程,但在丝状真菌中,Sec14/SFH家族的系统功能研究仍然稀少。本研究以构巢曲霉为模型,对Sec14家族基因的生理功能进行系统解析。
研究方法
2.1 菌株、培养基与转化
本研究所用构巢曲霉菌株列于表S1。所有构巢曲霉菌株均在最低培养基(MMG)或完全培养基(YG)中培养,方法如前所述。作为固体培养基使用时,向培养基中加入1.5%(w/v)琼脂。MMG培养基补充0.5 mg/mL吡哆醇、1.12 mg/mL尿嘧啶和2.44 mg/mL尿苷。YG培养基补充1.12 mg/mL尿嘧啶和2.44 mg/mL尿苷。分生孢子储液按先前描述的方法制备。大肠杆菌JM109菌株用于质粒扩增。构巢曲霉和大肠杆菌的转化按先前描述的方法进行(Tsuizaki et al., 2013)。除非另有说明,分生孢子以1.0 × 10⁷ conidia/mL的浓度接种,在37 °C、200 rpm条件下,使用100 mL锥形挡板瓶(016310-100 A;Sibata,东京,日本)在BioShaker(BR-43FL;Taitec,埼玉,日本)中培养。对于固体培养基,将1.0 × 10³个分生孢子点种到固体培养基上,在37 °C下孵育。
【数据】培养基:MMG/YG;琼脂浓度:1.5%(w/v);MMG补充:0.5 mg/mL吡哆醇、1.12 mg/mL尿嘧啶、2.44 mg/mL尿苷;YG补充:1.12 mg/mL尿嘧啶、2.44 mg/mL尿苷;接种浓度:1.0 × 10⁷ conidia/mL(液体)、1.0 × 10³ conidia(固体);温度:37 °C;转速:200 rpm;摇瓶:100 mL Erlenmeyer挡板瓶(016310-100 A;Sibata);摇床:BioShaker BR-43FL(Taitec)
2.2 通过BLASTP鉴定Sec14家族同源物
使用makeblastdb(NCBI BLAST+)(Camacho et al., 2009)鉴定酿酒酵母Sec14家族蛋白的同源物。将含有酿酒酵母查询蛋白序列的FASTA文件(RefSeq蛋白登录号:NP_013796.1 (Sec14)、NP_012832.1 (Sfh1)、NP_013484.3 (Sfh2)、NP_014168.1 (Sfh3)、NP_014135.1 (Sfh4)、NP_012390.1 (Sfh5))对目标真菌物种的预测蛋白质组进行搜索。预测蛋白质组的FASTA文件于2025年1月14日从NCBI RefSeq下载(组装登录号:GCF_000011425.1(构巢曲霉)、GCF_000002655.1(烟曲霉)、GCF_000182965.3(白色念珠菌)、GCF_001761485.1(解脂耶氏酵母)、GCF_000002945.2(粟酒裂殖酵母)),用作BLASTP数据库。正向搜索使用blastp进行,E值阈值为1 × 10⁻⁵。对于每个命中,查询覆盖率按比对长度除以查询长度计算,查询覆盖率≥0.5的命中被保留。获得非冗余候选集。反向BLASTP搜索通过将候选蛋白序列对酿酒酵母蛋白质组(RefSeq蛋白登录号:GCF_000146045.2)进行查询来完成。对于每个候选,记录最佳命中的反向结果。
【数据】E值阈值:1 × 10⁻⁵;查询覆盖率阈值:≥0.5;数据库下载日期:2025-01-14;酿酒酵母查询蛋白:Sec14 (NP_013796.1)、Sfh1 (NP_012832.1)、Sfh2 (NP_013484.3)、Sfh3 (NP_014168.1)、Sfh4 (NP_014135.1)、Sfh5 (NP_012390.1);目标物种组装登录号:GCF_000011425.1、GCF_000002655.1、GCF_000182965.3、GCF_001761485.1、GCF_000002945.2
2.3 多序列比对与系统发育推断
对于基因树分析,将酿酒酵母查询序列和候选序列合并,使用MAFFT以自动策略选择进行比对(Katoh and Standley, 2013)。使用IQ-TREE推断最大似然系统发育树,采用自动模型选择和1000次超快自举重复(Hoang et al., 2018; Kalyaanamoorthy et al., 2017; Nguyen et al., 2015)。
【数据】比对工具:MAFFT(自动策略选择);系统发育工具:IQ-TREE;自举重复:1000次超快自举
2.4 结构域注释与结构域架构汇总
使用InterProScan(网络服务器;运行日期:2026年1月14日)(Jones et al., 2014)获得蛋白质结构域注释。对于每个蛋白质,InterProScan返回来自多个成员数据库(包括Pfam、CDD、SMART等)的结构域命中。
【数据】工具:InterProScan网络服务器;运行日期:2026-01-14;数据库:Pfam、CDD、SMART等
2.5 质粒与构巢曲霉菌株的构建
本研究所用质粒和引物分别列于表S2和表S3。本研究中使用的中间质粒pUC18-pyrG、pUC18-EGFP-alcAt-pyrG、pUC18-mNeonGreen-alcAt-pyrG和pUC18-V5-alcAt-pyrG的构建方法见补充方法部分。为构建secN、sfhA、sfhB、sfhC、sfhD、sfhE、sfhF和sfhG缺失菌株,我们按如下方式构建了pBS-AnSecN-pyrG、AnSfhA-pyrG、pBS-AnSfhB-pyrG、pBS-AnSfhC-pyrG、pBS-AnSfhD-pyrG、pBS-AnSfhE-pyrG、pBS-AnSfhF-pyrG和pBS-AnSfhG-pyrG。上下游序列通过PCR从构巢曲霉A1149基因组DNA中扩增:SecN使用AN4997_U1、AN4997_U2、AN4997_U3和AN4997_U4;sfhA使用AN3709_U1、AN3709_U2、AN3709_U3和AN3709_U4;sfhB使用AN0485_U1、AN0485_U2、AN0485_U3和AN0485_U4;sfhC使用AN6785_U1、AN6785_U2、AN6785_U3和AN6785_U4;sfhD使用AN6853_U1、AN6853_U2、AN6853_U3和AN6853_U4;sfhE使用AN8233_U1、AN8233_U2、AN8233_U3和AN8233_U4;sfhF使用AN0243_U1、AN0243_U2、AN0243_U3和AN0243_U4;sfhG使用AN6809_U1、AN6809_U2、AN6809_U3和AN6809_U4。pyrG标记使用引物pUC18-pyrG_Fw和pUC18-pyrG_Rv从pUC18-pyrG中扩增,pBlueScript II SK(+)使用引物pBSIISKp-SmaI-CtL_F和pBSIISKp-SmaI-CtL_R通过PCR线性化。上游序列、pyrG片段、下游序列和线性化pBlueScript II SK(+)按此顺序通过SLiCE连接(Motohashi, 2015; Okegawa and Motohashi, 2015a, 2015b),得到pBS-AnSecN-pyrG、pBS-AnSfhA-pyrG、pBS-AnSfhB-pyrG、pBS-AnSfhC-pyrG、pBS-AnSfhD-pyrG、pBS-AnSfhE-pyrG、pBS-AnSfhF-pyrG和pBS-AnSfhG-pyrG。为构建pBS-AnSecN-mNG-pyrG,分别使用AN4997_U7和AN4997_U8或AN4997_U3和AN4997_U4从A1149菌株总DNA中扩增AN4997的C端ORF区域和AN4997的下游区域。包含mNeonGreen ORF、alcA终止子和pyrG基因的DNA片段使用引物Linker1和pyrG_Rv从pUC18-mNeonGreen-alcAt-pyrG质粒中扩增。将获得的片段和线性化pBlueScript II SK(+)使用SLiCE连接,得到pBS-AnSecN-mNG-pyrG。缺失盒从各质粒中扩增:secN使用AN4997_U1和AN4997_U4;sfhA使用AN3709_U1和AN3709_U4;sfhB使用AN0485_U1和AN0485_U4;sfhC使用AN6785_U1和AN6785_U4;sfhD使用AN6853_U1和AN6853_U4;sfhE使用AN8233_U1和AN8233_U4;sfhF使用AN0243_U1和AN0243_U4;sfhG使用AN6809_U1和AN6809_U4。插入盒从pBS-AnSecN-mNG-pyrG和pBS-AnSecN-V5-pyrG中使用AN4997_U7和AN4997_U4扩增。将获得的片段导入构巢曲霉A1149。转化子通过尿苷/尿嘧啶营养缺陷型的互补进行选择,并通过PCR确认。为生成表达C端mNeonGreen标签融合SecN的菌株,使用引物AN4997_U7和AN4997_U4从pBS-AnSecN-mNG-pyrG中扩增插入盒。将所得盒通过转化导入A1149菌株。转化子通过尿苷/尿嘧啶营养缺陷型的互补进行选择,并通过PCR确认。为生成表达C端V5标签融合SecN的菌株,使用融合PCR构建插入盒。分别使用secN_ORF_Fw和Linker1_secN_Rv或secNt_Fw和secNt_Rv从A1149总DNA中扩增secN ORF或secN下游区域。包含V5标签序列、alcA终止子和pyrG标记的DNA片段使用引物Linker1和secNt_pyrGt_Rv从pUC18-V5-alcAt-pyrG中扩增。这三个片段通过融合PCR使用引物secN_ORF_Fw和secNt_Rv融合,生成携带pyrG的secN-V5标签盒。将所得盒通过转化导入A1149菌株。转化子通过尿苷/尿嘧啶营养缺陷型的互补进行选择,并通过PCR确认。
【数据】菌株:构巢曲霉A1149;连接方法:SLiCE;标记基因:pyrG;标签:mNeonGreen、V5;启动子:天然secN启动子;筛选方式:尿苷/尿嘧啶营养缺陷型互补;验证方法:PCR;质粒:pUC18-pyrG、pUC18-EGFP-alcAt-pyrG、pUC18-mNeonGreen-alcAt-pyrG、pUC18-V5-alcAt-pyrG、pBS-AnSecN-pyrG等
2.6 显微镜观察
使用配备CCD相机DP80(Evident)的BX52显微镜(Evident,东京,日本)观察菌丝。来自DP80的图像使用CellSens软件(Evident)采集和处理。菌落表面形成的分生孢子梗使用数码显微镜(Dino-Lite Edge U,型号DINOAM8917MZT;THANKO,东京,日本)成像。
【数据】显微镜:BX52(Evident);相机:DP80(Evident);软件:CellSens(Evident);数码显微镜:Dino-Lite Edge U(DINOAM8917MZT;THANKO)
2.7 分生孢子形成效率的测定
将约1.0 × 10³个分生孢子点种到MMG平板上,在37 °C下孵育72小时,然后收集新形成的分生孢子并使用血细胞计数板计数。
【数据】接种量:1.0 × 10³ conidia;培养基:MMG;温度:37 °C;时间:72 h;计数方法:血细胞计数板
2.8 萌发效率的测定
将总共1.0 × 10⁷个分生孢子接种到MMG培养基中并孵育。从接种后3至7小时,每小时通过显微镜监测萌发情况,每次观察计数超过200个分生孢子。萌发率按每个时间点萌发分生孢子的百分比计算。
【数据】接种量:1.0 × 10⁷ conidia;培养基:MMG;监测时间:接种后3–7 h;监测间隔:每小时;每次计数:>200个分生孢子;萌发率定义:萌发分生孢子百分比
2.9 扫描电子显微镜(SEM)
原文节选在此处中断,后续方法未详述。
【数据】原文未详述
研究结果
3.1 构巢曲霉基因组中发现8个编码Sec14家族蛋白的基因
以酿酒酵母Sec14和Sfh(Sfh1–Sfh5)的蛋白序列为参考,我们对构巢曲霉的预测蛋白质组进行同源搜索,以鉴定这些Sec14家族蛋白在构巢曲霉中的候选直系同源物(表1)。我们在烟曲霉中进行了类似搜索并鉴定了候选直系同源物,随后构建了系统发育树,其中还包括先前报道的粟酒裂殖酵母和解脂耶氏酵母的Sec14家族蛋白(图1A)。因此,构巢曲霉候选蛋白被归入与已知Sfh亚家族对应的进化枝。基于这些数据,我们对编码各蛋白的基因进行了如下命名:AN4997(蛋白:XP_662601.1)命名为secN,AN3709(蛋白:XP_050467477.1)命名为sfhA,AN0485(蛋白:XP_658089.1)命名为sfhB,AN6785(蛋白:XP_664389.1)命名为sfhC,AN6853(蛋白:XP_664457.1)命名为sfhD,AN8233(蛋白:XP_681502.1)命名为sfhE,AN0243(蛋白:XP_657847.1)命名为sfhF,AN6809(蛋白:XP_664413.1)命名为sfhG。总之,SecN属于Sec14/Sfh1进化枝,SfhA–SfhC属于Sfh2进化枝,SfhD属于Sfh3/Sfh4进化枝,SfhE属于Sfh5进化枝,而未鉴定到明确的Sfh4直系同源物。SfhF和SfhG构成一个丝状真菌特异性进化枝(图1A)。SecN与酿酒酵母Sec14的序列同一性最高,在272个比对氨基酸中同一性为59.6%。SfhA、SfhB和SfhC与酿酒酵母Sfh2的同一性最高,分别为35.1%、34.1%和25.6%。SfhD与Sfh3的同一性为47.2%,SfhE与Sfh5的同一性为29.5%,SfhF与Sfh1的同一性为31.7%,SfhG与Sec14的同一性为23.4%(表1)。使用Pfam/InterPro对这些蛋白氨基酸序列进行结构域结构分析显示,所有候选蛋白均保留SEC14或CRAL/TRIO结构域。然而,在CRAL/TRIO N端结构域的有无、N端和C端区域长度方面存在差异,表明该家族内存在结构多样性(表2和图1B)。
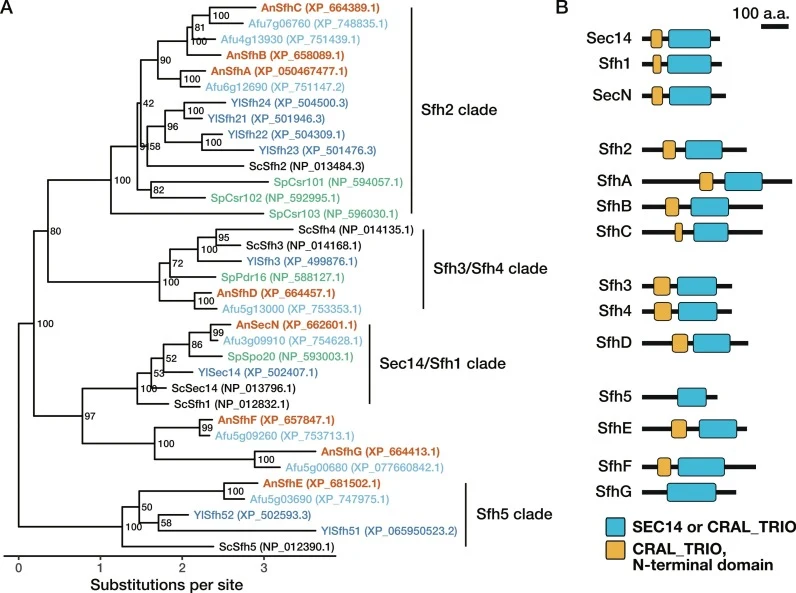
【数据】构巢曲霉Sec14家族基因数:8个;基因命名:secN、sfhA–sfhG;SecN与ScSec14同一性:59.6%(272个比对氨基酸);SfhA与ScSfh2同一性:35.1%;SfhB与ScSfh2同一性:34.1%;SfhC与ScSfh2同一性:25.6%;SfhD与ScSfh3同一性:47.2%;SfhE与ScSfh5同一性:29.5%;SfhF与ScSfh1同一性:31.7%;SfhG与ScSec14同一性:23.4%;结构域:SEC14或CRAL/TRIO
3.2 secN缺失显著损害正常生长
我们为每个基因构建了单缺失菌株,并在完全培养基上分析了这些缺失菌株的生长(图2A、B)。ΔsecN菌株与野生型菌株相比表现出明显的生长延迟,而编码其他Sec14家族蛋白的基因缺失菌株与野生型相比未显示显著生长差异。随后我们观察了这些菌株的分生孢子梗。对于Sfh亚家族基因sfhA–sfhG的缺失菌株,与野生型菌株相比未观察到明显变化(图2C)。相反,ΔsecN菌株不产生正常的分生孢子梗(图2C)。与这些观察一致,ΔsecN菌株的分生孢子数量显著减少(图2D)。ΔsfhG菌株显示分生孢子数量适度但统计学显著的减少。此外,尽管差异未达到统计学显著性,ΔsfhA至ΔsfhF菌株也倾向于显示分生孢子产量略有减少(图2D)。我们还观察了菌丝尖端的形态。ΔsecN菌株表现出分支增加,而其他缺失菌株显示与野生型菌株相似的形态(图2E)。这些结果表明,被认为是SEC14直系同源物的secN参与了真菌生长的多个过程。
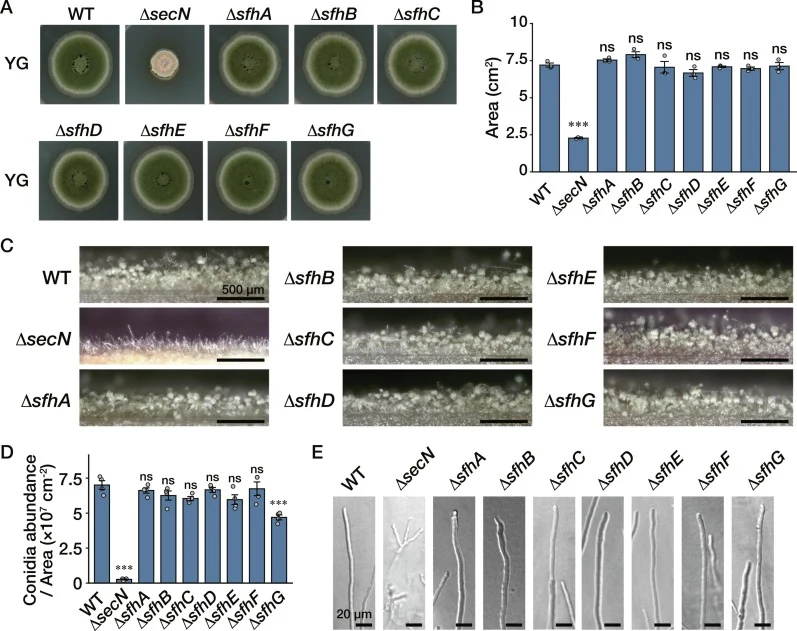
【数据】ΔsecN生长:显著延迟;ΔsfhA–ΔsfhG生长:与WT无显著差异;ΔsecN分生孢子梗:不正常;ΔsfhA–ΔsfhG分生孢子梗:无明显变化;ΔsecN分生孢子数:显著减少;ΔsfhG分生孢子数:适度但统计学显著减少;ΔsfhA–ΔsfhF分生孢子数:倾向减少(未达统计显著);ΔsecN菌丝分支:增加;其他缺失菌株菌丝形态:与WT相似
3.3 SecN缺失损害分生孢子梗发育并改变菌丝体磷脂组成
由于ΔsecN菌株在Sec14家族单缺失菌株中表现出最突出的缺陷,我们接下来聚焦于该突变体。我们使用SEM详细观察了分生孢子梗结构(图3A)。ΔsecN菌株显示分生孢子梗囊泡(柄顶端膨大的顶端结构)扩展缺陷(图3A,箭头),表明分生孢子梗发育过程中从极性生长向各向同性生长的转变存在缺陷。虽然一些梗基和瓶梗正常形成,但也观察到这些结构的异常形态。相反,根据SEM图像,ΔsecN菌株中分生孢子似乎正常形成(图3A),尽管其数量较少(图2D)。为评估这些分生孢子的活力,我们分析了其萌发率,发现极低(图3B)。接种后6小时,大多数野生型分生孢子已膨胀,而许多ΔsecN分生孢子显示很少或没有膨胀(图3C)。此外,确实膨胀的ΔsecN分生孢子启动了萌发。这些结果表明,形成的分生孢子存在缺陷,或者SecN是分生孢子形成后萌发过程(尤其是膨胀)所必需的。由于酿酒酵母中的Sec14和Sfh蛋白作为PI/PC转移蛋白参与细胞膜脂质动态,我们分析了ΔsecN菌株菌丝体的脂质组成(图4)。尽管许多PC种类相对于野生型菌株未发生变化,但若干种类,包括C32:2-PC、C34:2-PC、C34:4-PC、C36:5-PC和C38:4-PC,在ΔsecN菌株中显著减少或倾向于减少。相反,磷脂酰乙醇胺(PE)受到更广泛的影响,大多数PE种类在突变体中显示显著减少或倾向于显示较低丰度。PI谱整体上受影响相对较小;然而,高度不饱和种类,如C34:3-PI和C36:5-PI,在ΔsecN菌株中倾向于减少。PS种类显示很少的统计学显著变化,尽管其丰度倾向于略低于野生型菌株。总之,这些结果表明SecN有助于维持菌丝体中磷脂稳态,对PE和选定的不饱和PC及PI种类影响尤为强烈。
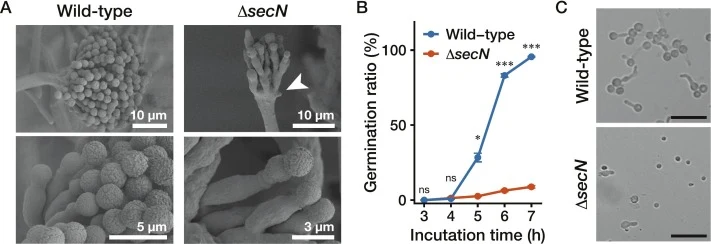
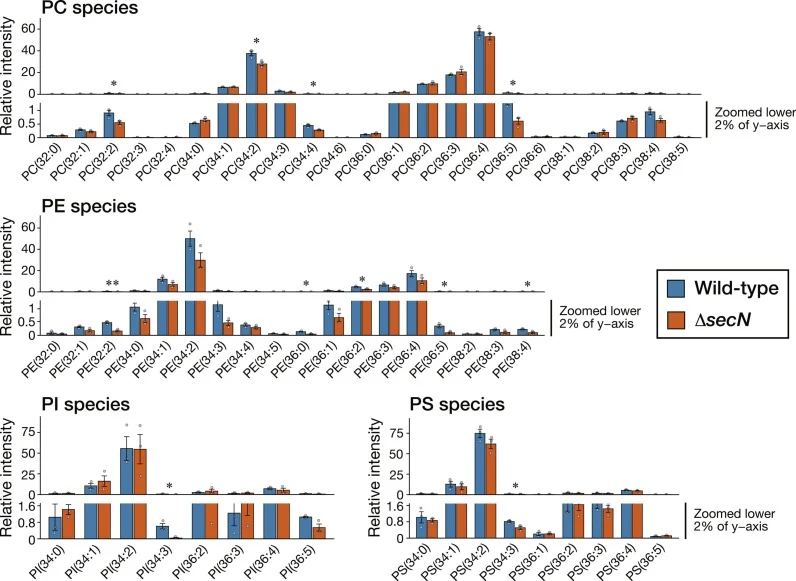
【数据】SEM观察:ΔsecN分生孢子梗囊泡扩展缺陷;ΔsecN分生孢子萌发率:极低;接种后6 h:WT多数分生孢子膨胀,ΔsecN多数很少或不膨胀;PC显著减少种类:C32:2-PC、C34:2-PC、C34:4-PC、C36:5-PC、C38:4-PC;PE:大多数种类显著减少或倾向减少;PI:C34:3-PI和C36:5-PI倾向减少;PS:无统计学显著变化,倾向略低
3.4 SecN–V5优先回收于S100组分
为研究SecN的定位,我们首先构建了在天然secN启动子控制下表达C端mNeonGreen标签融合SecN的菌株(SecN–mNG菌株)。然而,SecN–mNG菌株在完全培养基上表现出显著生长延迟(图5A),尽管该延迟不如ΔsecN菌株明显。荧光显微镜显示SecN–mNG信号主要观察到大点状或液泡样区室(图S1)。这些观察表明,相对较大的mNeonGreen标签的融合部分损害了SecN功能和/或定位。我们接下来构建了在天然secN启动子控制下表达C端V5标签融合SecN的菌株(SecN–V5菌株)。SecN–V5菌株表现出与野生型菌株相当的生长(图5A),表明小的C端V5标签未可检测地损害SecN功能。因此,我们使用SecN–V5菌株研究SecN的亚细胞定位。我们制备了SecN–V5菌株的细胞裂解液,并通过分级分离获得P13、P100和S100组分。然后我们通过免疫印迹分析含有SecN–V5的组分。SecN–V5主要回收于S100组分(主要含可溶性胞质蛋白),较少回收于P13组分(含较大细胞器和膜),而在P100组分(被认为含较小区室)中仅检测到痕量(图5B)。这些结果表明SecN–V5主要作为可溶性蛋白定位于胞质。尽管回收于P13和P100组分的SecN–V5是否与膜结合、形成聚集体或来源于污染未破碎细胞仍不清楚,但这些群体代表次要组分。
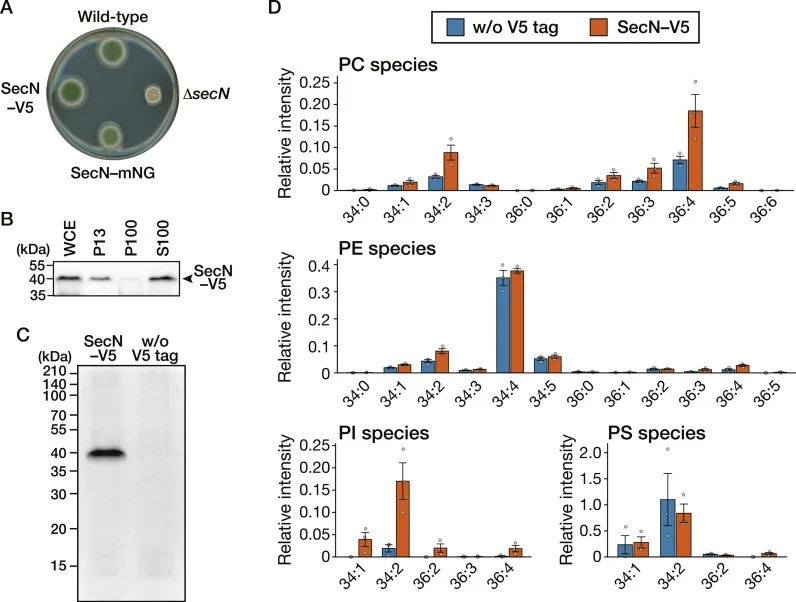
【数据】SecN–mNG菌株:完全培养基上显著生长延迟(不如ΔsecN严重);SecN–mNG信号:大点状或液泡样区室;SecN–V5菌株:生长与WT相当;分级分离组分:P13、P100、S100;SecN–V5主要定位:S100组分(可溶性胞质蛋白);P13:较少;P100:痕量
3.5 SecN优先与特定PI种类和选定PC种类结合
原文节选在此处中断,后续结果未详述。
【数据】原文未详述
讨论与解读
本研究系统解析了构巢曲霉Sec14家族蛋白的功能。secN缺失导致显著生长延迟(图2A、B),并引发多种细胞过程缺陷,包括正常菌丝形成(图2E)和分生孢子梗形态发生(图3A),同时导致分生孢子萌发率显著下降(图3B)。相比之下,其他Sfh直系同源基因的缺失未显著影响正常生长,但这些基因缺失菌株对CFW的敏感性略有降低。因此,某些Sec14家族蛋白对丝状真菌的菌丝生长和无性分化具有显著影响。
Sec14样蛋白的系统发育分析表明,其在子囊菌门中广泛分布(图S4)。这种广泛的保守性,加上ΔsecN菌株的严重表型,提示SecN代表一个保守的Sec14型模块,为真菌生长和发育过程中的膜相关过程所必需,而其他Sfh蛋白可能具有更专门化或条件特异性的功能。SEC14在酿酒酵母中是必需基因,而secN缺失并非致死,尽管观察到ΔsecN菌株的显著生长迟缓(图2)。Sec14的非致死性在解脂耶氏酵母中也有报道(Lopez et al., 1994)。
编译者解读:该研究以构巢曲霉为模型,首次系统鉴定了丝状真菌中8个Sec14家族成员,并明确SecN在生长、产孢和磷脂稳态中的核心地位。方法上,作者巧妙利用V5小标签替代mNeonGreen大标签,避免了融合标签对SecN功能的干扰,这一策略对膜相关蛋白的定位研究具有借鉴意义。然而,SecN主要定位于胞质可溶性组分,其如何参与膜脂质转运仍需进一步机制解析。此外,ΔsecN菌株中PE种类普遍下降而PC仅部分受影响,暗示SecN的脂质转移偏好可能不同于酵母Sec14,这为后续蛋白结构-功能研究提供了切入点。
参考来源
期刊:Fungal Genetics and Biology, 2026
DOI: 10.1016/j.fgb.2026.104115
DOI: 10.1016/j.fgb.2026.104115