来源:Multi-omics analyses of evolved Corynebacterium glutamicum mutants reveal the molecular responses to formaldehyde stress(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
甲醛是C1生物转化过程中的关键中间代谢物,但其高反应性和细胞毒性严重制约了微生物细胞工厂的效率。本研究以敲除甲醛异化途径的谷氨酸棒杆菌FM-1为出发菌株,通过适应性实验室进化(ALE)获得了可耐受2.6 mM甲醛的进化株FM-3。整合转录组与蛋白质组分析揭示了细胞壁合成和DNA修复机制的上调是耐受性提升的关键。研究进一步鉴定了Cgl1199和Cgl1590等关键突变,发现Cgl1590参与细胞形态调控。该工作为理解谷氨酸棒杆菌甲醛耐受机制提供了系统性视角。
研究背景
全球气候变化背景下,以CO₂和甲醇等C1原料进行化学品和燃料的生物制造备受关注。代表性C1生物转化过程包括基于CO₂的化学酶法合成淀粉和聚羟基脂肪酸酯,以及利用工程化天然或合成甲基营养菌进行甲醇发酵。在这些过程中,甲醛作为关键代谢中间体产生。甲醛也是细胞代谢中普遍存在的代谢物,可通过脱甲基反应内源性产生。然而,甲醛是一种高反应性和细胞毒性的化合物,能与蛋白质和DNA中的生物亲核试剂相互作用,促进DNA-蛋白质交联的形成。甲醛的毒性严重阻碍线粒体呼吸酶活性,特别是NADH脱氢酶(复合体I)和细胞色素c氧化酶(复合体IV),以及细胞代谢和产物合成。例如,Chen等人报道甲醛引起的DNA-蛋白质交联导致甲基营养型大肠杆菌的延滞期异常延长至20天。尽管已在不同微生物中发现了若干赋予甲醛耐受性的机制,但细胞如何全局性响应甲醛胁迫仍缺乏全面理解。
研究方法
2.1 菌株与培养条件
本研究所用菌株列于补充表1。大肠杆菌Trans1-T1(TransGen Biotech,中国)用于常规克隆。细胞在Luria–Bertani(LB)肉汤中于37 °C、220 rpm振荡培养。根据需求添加卡那霉素(Km 50 μg/mL)或氯霉素(Cm 20 μg/mL)。菌株FM-1(C. glutamicum ATCC 13032 ΔadhEΔald)及其衍生物在30 °C下于TSB培养基[28]或CGXII基本培养基[29]中培养,补充10 g/L葡萄糖作为碳源,并根据需要添加甲醛(0.8–2.6 mM)以提供胁迫条件。液体培养的初始OD₆₀₀ₙₘ设为0.1。同时,摇瓶用封口膜覆盖以避免甲醛蒸发。含1.5%琼脂的CGXII基本培养基平板用于测试突变体的甲醛耐受性。过夜培养物稀释至OD₆₀₀ₙₘ = 5,并用CGXII基本培养基进行梯度稀释(10⁻¹至10⁻⁷)。然后,将每个稀释度的2.5 μL点样到含10 g/L葡萄糖作为碳源的CGXII平板上,含或不含1 mM甲醛。在30 °C培养期间定期观察菌落生长。
【数据】菌株:大肠杆菌Trans1-T1、谷氨酸棒杆菌FM-1及其衍生物;培养基:LB、TSB、CGXII基本培养基;碳源:10 g/L葡萄糖;温度:37 °C(大肠杆菌)、30 °C(谷氨酸棒杆菌);转速:220 rpm;抗生素:Km 50 μg/mL、Cm 20 μg/mL;甲醛浓度:0.8–2.6 mM;初始OD₆₀₀ₙₘ:0.1;琼脂浓度:1.5%;点样体积:2.5 μL;稀释梯度:10⁻¹至10⁻⁷
2.2 增强甲醛耐受性的ALE
C. glutamicum菌株FM-1的ALE使用补充10 g/L葡萄糖作为碳源和甲醛作为胁迫条件的CGXII基本培养基进行。菌株FM-1首先在含50 mL TSB培养基的250 mL摇瓶中于30 °C培养12 h,然后以初始OD₆₀₀ₙₘ为0.1转接到含0.8 mM甲醛的CGXII培养基中。当菌株的OD₆₀₀ₙₘ保持相对恒定时,将培养物作为种子以初始OD₆₀₀ₙₘ为0.1接种到新鲜培养基中。一旦培养物在给定甲醛浓度下连续传代表现出稳定生长,甲醛浓度逐渐增加0.2 mM。将耐受2.6 mM甲醛的细胞稀释并涂布在补充2.0 mM甲醛和10 g/L葡萄糖的CGXII平板上。选择较大菌落进行后续测试。甲醛消耗定期通过Nash试剂检测。Nash试剂由2 M乙酸铵、50 mM乙酸和20 mM乙酰丙酮(pH 7.2)配制。细胞在含50 mL CGXII培养基(补充10 g/L葡萄糖和0.8 mM甲醛)的250 mL摇瓶中于30 °C培养。定期测量OD₆₀₀ₙₘ和甲醛消耗。Nash assay通过混合20 μL细胞培养上清液和180 μL Nash试剂启动。混合物在65 °C孵育20 min,然后测量OD₄₁₂ₙₘ。
【数据】起始甲醛浓度:0.8 mM;甲醛浓度增幅:0.2 mM;最终甲醛浓度:2.6 mM;培养温度:30 °C;种子培养时间:12 h;种子培养基:TSB(50 mL/250 mL摇瓶);初始OD₆₀₀ₙₘ:0.1;Nash试剂组成:2 M乙酸铵、50 mM乙酸、20 mM乙酰丙酮,pH 7.2;Nash assay:20 μL上清液+180 μL Nash试剂,65 °C,20 min,OD₄₁₂ₙₘ
2.3 转录组分析
出发菌株FM-1和表现出显著增强甲醛耐受性的进化突变株FM-3在补充或不补充0.8 mM甲醛的CGXII基本培养基中于30 °C、220 rpm振荡培养,补充10 g/L葡萄糖作为碳源。为了捕获基因调控最活跃、mRNA水平快速波动时的动态转录响应,细胞在中间指数期收获用于RNA分离。FM-1和FM-3的样本量(N,生物学重复数)为3。RNA制备、文库构建、转录组测序和分析按照先前描述的程序进行[25]。使用0.1 mm氧化锆珠在高通量低温研磨仪中破碎细胞,随后用磁珠组织/细胞/血液总RNA试剂盒(天根)提取总RNA。使用Qubit 2.0荧光计定量RNA浓度,通过琼脂糖凝胶电泳评估RNA完整性。对于转录组文库构建,首先使用QIAseq FastSelect-5S/16S/23S试剂盒(Qiagen)从500 ng总RNA中去除核糖体RNA,按照制造商方案操作。然后使用NEBNext® Ultra II Directional RNA Library Prep Kit for Illumina(NEB)制备RNA-seq文库。使用Qubit 2.0荧光计测定文库浓度,用2100 Bioanalyzer分析其片段分布。合格的文库由诺禾致源(北京,中国)测序。为确保下游转录组分析的高质量数据,使用FastP(版本0.23.1)对原始reads进行质量控制和过滤,包括去除接头序列和低质量碱基。过滤后的数据进一步用DeSeq2包(版本1.18.1)的DESeq函数处理以分析差异表达基因。之后,错误发现率(FDR)≤0.05且log₂(倍数变化)≥1或≤−1的基因被认为是差异表达基因。后续功能注释使用KEGG自动注释服务器(KAAS)(https://www.genome.jp/kegg/kaas/)[30]进行。变量间的Pearson线性相关系数使用R包"stats"计算,使用"corrplot"绘制。主成分分析使用"stats"包进行,使用"ggord"包绘制。本研究中使用的所有R脚本和输入数据可在https://github.com/YuWangLab/formaldehyde-tolerance获取。
【数据】甲醛浓度:0.8 mM;培养温度:30 °C;转速:220 rpm;碳源:10 g/L葡萄糖;收获时期:中间指数期;生物学重复数:N=3;氧化锆珠直径:0.1 mm;总RNA用量:500 ng;FDR阈值:≤0.05;log₂倍数变化阈值:≥1或≤−1;FastP版本:0.23.1;DeSeq2版本:1.18.1
2.4 蛋白质组分析
出发菌株FM-1和进化突变株FM-3在补充或不补充0.8 mM甲醛的CGXII基本培养基中于30 °C、220 rpm振荡培养,补充10 g/L葡萄糖作为碳源。考虑到转录本和蛋白质丰度之间的时间滞后,细胞在晚期指数期收获,并用50 mM磷酸钠缓冲液(pH 7.4)洗涤两次。FM-1和FM-3的样本量(N,生物学重复数)为3。对于总蛋白提取,使用FastPrep®-24 Classic Instrument(MP Biomedicals,CA,USA)通过珠磨法裂解细胞。裂解缓冲液含8 M尿素、50 mM Tris-HCl和1×蛋白酶抑制剂混合物(pH 8)。细胞裂解液在4 °C下以15,000×g离心5 min,收集上清液。蛋白质浓度通过Pierce™ Rapid Gold BCA Protein Assay Kit(Thermo Fisher Scientific,USA)测定。取一份蛋白质样品进行SDS-PAGE分析,从SDS-PAGE凝胶中切下蛋白质条带并切成小块。凝胶内消化按照先前描述进行[31]。简言之,凝胶块用100 mM碳酸氢铵/乙腈(1:1,v/v)脱色,随后用二硫苏糖醇(DTT)还原并用碘乙酰胺(IAM)烷基化。凝胶块用乙腈脱水,在胰蛋白酶溶液中再水化,并在37 °C孵育过夜进行消化。所得肽段用乙腈提取,真空干燥,溶于0.1%甲酸,进行LC–MS/MS分析。其他样品按照过滤辅助样品制备(FASP)程序进行硫醇还原、烷基化和胰蛋白酶消化,稍作修改[32]。在MS分析前,将iRT肽段[33]掺入C. glutamicum肽段样品中。nanoLC-MS/MS分析在连接TripleTOF 5600质谱仪(AB SCIEX,Concord,Ontario)的Eksigent NanoLC上进行,配备纳电喷雾离子源。采用SWATH-MS技术[34]进行高通量定量分析。来自质谱的Wiff文件通过ProteoWizard MSconvert[35](版本2.6.0)转换为mzXML格式。靶向XIC提取通过OpenSWATH[36,37](版本2.7.0)软件针对先前生成的光谱库进行。统计验证和多运行对齐通过PyProphet[38]和TRIC软件[39]使用默认设置进行[37]。
【数据】甲醛浓度:0.8 mM;培养温度:30 °C;转速:220 rpm;碳源:10 g/L葡萄糖;收获时期:晚期指数期;洗涤缓冲液:50 mM磷酸钠缓冲液,pH 7.4;生物学重复数:N=3;裂解缓冲液:8 M尿素、50 mM Tris-HCl、1×蛋白酶抑制剂,pH 8;离心条件:15,000×g,5 min,4 °C;胰蛋白酶消化:37 °C,过夜;甲酸浓度:0.1%;质谱仪:TripleTOF 5600;SWATH-MS定量
研究结果
3.1 进化谷氨酸棒杆菌以提高甲醛耐受性
C. glutamicum ATCC 13032具有内源性甲醛异化途径。先前研究表明,甲醛氧化为甲酸依赖于两种酶:乙醛脱氢酶(Ald)和霉菌硫醇依赖性甲醛脱氢酶(AdhE)[18,46]。Ald直接催化甲醛氧化为甲酸。相比之下,AdhE通过两步机制发挥作用。首先,甲醛自发与霉菌硫醇(MSH)结合产生S-(羟甲基)霉菌硫醇。该中间体随后被AdhE氧化为S-甲酰霉菌硫醇,随后水解为甲酸和MSH。为了评估缺乏甲醛异化途径的C. glutamicum ATCC 13032中甲醛的毒性,我们在补充不同浓度甲醛的CGXII培养基中培养了先前开发的C. glutamicum FM-1菌株(C. glutamicum ATCC 13032 ΔadhEΔald),在我们先前的研究中称为MX-1[27](图1A)。所有摇瓶均配备封口膜以防止甲醛蒸发(补充图1)。FM-1的生长主要受甲醛浓度增加影响的延滞期。当添加0.5 mM或更高浓度的甲醛时,观察到延长的延滞期。FM-1菌株在1.0 mM甲醛下培养36 h后未检测到生长。这些结果与先前报道一致,即具有固有甲醛解毒途径的野生型C. glutamicum在1 mM甲醛下生长受到严重抑制[18]。
ALE是改善与细胞生长相关的表型的有效策略,包括细胞对环境胁迫的耐受性[47]。在本研究中,选择甲醛异化途径失活的菌株FM-1作为ALE的出发菌株,以增强对更高浓度甲醛的耐受性。基于初步耐受性测定,选择0.8 mM甲醛作为初始胁迫物,在培养适应后以0.2 mM递增。进行了两个平行的ALE实验。一个实验持续207天和56次传代(约296代)(命名为ALE culture-1),达到最终甲醛浓度2.6 mM(比初始水平高3倍以上)。在此浓度下,培养物达到最终OD₆₀₀值约为2.0–3.0(图1B)。平行实验持续203天和57次传代(约299代)(命名为ALE culture-2)。然而,ALE培养物的最终OD₆₀₀ₙₘ值在2.6 mM甲醛下约为1.0(补充图2A),可能是由于甲醛的高毒性和平行ALE谱系获得的异质性突变轨迹。最终ALE培养物稀释并涂布在含甲醛的CGXII平板上。从ALE culture-1平板上分离出两个最大的菌落(命名为FM-2和FM-3)。以出发菌株FM-1为对照,评估了它们在不同浓度甲醛下的生长性能。在0.8 mM甲醛存在下,进化菌株FM-2和FM-3在指数期表现出更快的生长,与FM-1相比延滞期显著缩短。FM-2和FM-3指数期的比生长速率分别达到0.22 h⁻¹和0.23 h⁻¹,分别是FM-1(0.16 h⁻¹)的1.37倍和1.44倍(图1C)。当暴露于更高浓度甲醛(1.6 mM)时,进化菌株FM-2和FM-3在约10 h延滞期后恢复生长,而亲本菌株FM-1未检测到生长(图1D)。这证实了通过适应性进化成功获得了增强的甲醛抗性。有趣的是,在非胁迫条件下,进化菌株的指数生长比FM-1慢(图1E),表明赋予甲醛抗性的突变在无胁迫时带来适合度代价。从平行ALE culture-2中分离出另外六个进化突变体(命名为FM-4至FM-9)。虽然其中五个可在1.6 mM甲醛下生长,与不生长的FM-1不同,但它们在甲醛耐受性方面均未超过FM-2和FM-3(补充图2B和图1D)。尽管FM-1中甲醛异化途径被阻断,但进化突变体增强的耐受性可能来自其他进化出的甲醛降解机制。为排除这种可能性,测定了进化菌株FM-3、出发菌株FM-1和野生型C. glutamicum的甲醛降解。细胞在含0.8 mM甲醛和10 g/L葡萄糖的CGXII基本培养基中培养,使用Nash试剂监测甲醛浓度(图1F)。这些结果证实FM-3改善的耐受性(图1D)不依赖于甲醛降解。因此,在后续实验中研究了FM-3甲醛耐受性的潜在机制。野生型C. glutamicum由于其天然甲醛异化途径显示出快速的甲醛降解速率,而FM-3显示出显著较低的降解速率,与FM-1相当。这些结果最终证明FM-3(图1D)获得的耐受性源于细胞适应而非甲醛解毒,促使后续研究其抗性机制。
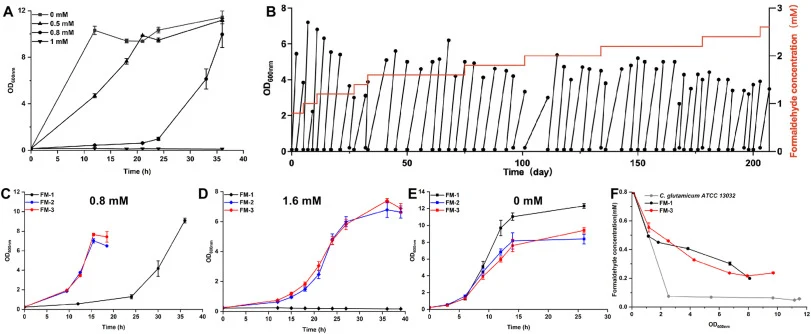
【数据】出发菌株:FM-1(ATCC 13032 ΔadhEΔald);甲醛浓度:0.5、0.8、1.0、1.6、2.0、2.6 mM;初始胁迫浓度:0.8 mM;浓度递增:0.2 mM;ALE culture-1:207天,56次传代,约296代;ALE culture-2:203天,57次传代,约299代;最终OD₆₀₀:2.0–3.0(culture-1)、约1.0(culture-2);FM-2比生长速率:0.22 h⁻¹;FM-3比生长速率:0.23 h⁻¹;FM-1比生长速率:0.16 h⁻¹;倍数:1.37倍(FM-2)、1.44倍(FM-3);1.6 mM甲醛下延滞期:约10 h;Nash试剂检测甲醛浓度;培养温度:30 °C
3.2 鉴定赋予细胞甲醛耐受性的关键突变
为鉴定在ALE过程中积累的赋予增强甲醛耐受性的突变,对四个进化突变体FM-2、FM-3、FM-4和FM-5的基因组进行了测序。每个进化菌株拥有超过100个突变,包括单核苷酸多态性(SNPs)、插入和缺失,与C. glutamicum ATCC 13032参考基因组(GenBank登录号GCA_000011325.1)比对。高数量的累积突变可能归因于甲醛毒性引起的严重DNA损伤,因为易错修复机制可导致高频突变[48]。在SNPs中,鸟嘌呤(G)和胞嘧啶(C)的碱基转换占51–66%(FM-3见图2A,FM-2、FM-4、FM-5分别见补充图3A、3B和3C)。移码突变主要发生在连续的G或C核苷酸处。先前研究表明,G最可能与甲醛反应,N²-羟甲基-dG是甲醛暴露后细胞中形成的主要DNA加合物[49]。鉴于进化菌株中观察到的广泛遗传变异,选择了在四个进化菌株中至少三个共同突变的16个基因进行进一步研究。在这些基因中共鉴定出29个突变,其中26个突变被单独引入出发菌株FM-1(表1、补充图4和补充表3)。尽管经过多轮尝试,仍有三个突变未能成功引入,包括cgl0752 C929A、cgl0754 391−411del(核苷酸391–411缺失)和cgl0754 574−579del(核苷酸574–579缺失)。基因cgl0752编码S-腺苷-l-高半胱氨酸水解酶,催化S-腺苷-l-高半胱氨酸转化为l-高半胱氨酸,后者是l-甲硫氨酸生物合成的前体[50]。尽管cgl0752 C929A的引入失败,但另一个突变cgl0752 G761T成功引入菌株FM-1。cgl0754编码双组分信号转导系统MtrAB的响应调节因子(MtrA),参与细胞壁代谢和渗透胁迫响应[51,52]。携带单个突变的26个重组体通过评估其甲醛耐受性进一步评价。
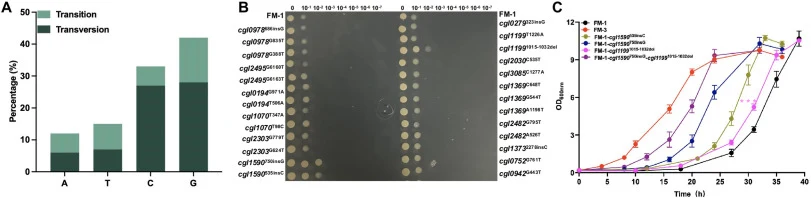
【数据】测序菌株:FM-2、FM-3、FM-4、FM-5;参考基因组:GCA_000011325.1;每个进化菌株突变数:>100;G/C碱基转换占比:51–66%;共同突变基因数:16个(至少在4个菌株中的3个中突变);鉴定突变总数:29个;引入FM-1的突变数:26个;未能引入的突变:cgl0752 C929A、cgl0754 391−411del、cgl0754 574−579del;成功引入的额外突变:cgl0752 G761T
3.3 转录组分析揭示甲醛胁迫下的全局响应
为揭示FM-3甲醛耐受性增强的分子机制,对FM-1和FM-3在有无0.8 mM甲醛胁迫下的转录组进行了比较分析。主成分分析(PCA)显示,四个样本组(1N:FM-1无甲醛;1F:FM-1+甲醛;3N:FM-3无甲醛;3F:FM-3+甲醛)在转录水平上明显分离(补充图5A)。Pearson相关系数分析表明,生物学重复之间高度相关(R² > 0.98)(补充图5B)。以FDR ≤0.05和|log₂FC| ≥ 1为标准,在1F vs. 1N中鉴定出1,247个差异表达基因(DEGs),在3F vs. 3N中鉴定出1,053个DEGs,在3N vs. 1N中鉴定出892个DEGs,在3F vs. 1F中鉴定出1,368个DEGs(图3A)。这些结果表明甲醛胁迫引起了广泛的转录重编程。
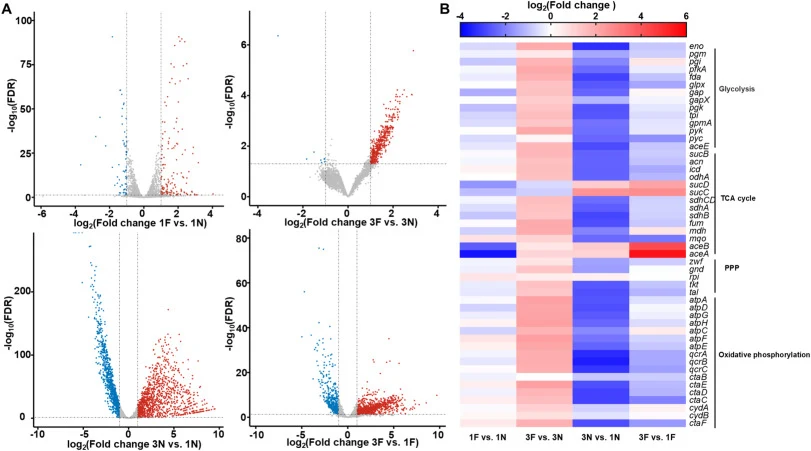
【数据】甲醛浓度:0.8 mM;样本组:1N、1F、3N、3F;生物学重复:N=3;DEGs筛选标准:FDR ≤0.05,|log₂FC| ≥ 1;1F vs. 1N DEGs数:1,247;3F vs. 3N DEGs数:1,053;3N vs. 1N DEGs数:892;3F vs. 1F DEGs数:1,368;Pearson R² > 0.98
3.4 蛋白质组分析揭示甲醛耐受相关蛋白
为在蛋白质水平验证转录组发现,对相同条件下的FM-1和FM-3进行了SWATH-MS定量蛋白质组分析。在1F vs. 1N中鉴定出差异表达蛋白,在3F vs. 3N中同样鉴定出差异表达蛋白。KEGG小类注释将转录组差异按功能分类(图4A、4B)。蛋白质组分析显示,在FM-3中,细胞壁生物合成相关蛋白和DNA修复机制相关蛋白在甲醛胁迫下显著上调(图4C、4D)。这些结果与转录组数据一致,表明细胞壁完整性和DNA修复能力的增强是FM-3甲醛耐受性提升的重要基础。
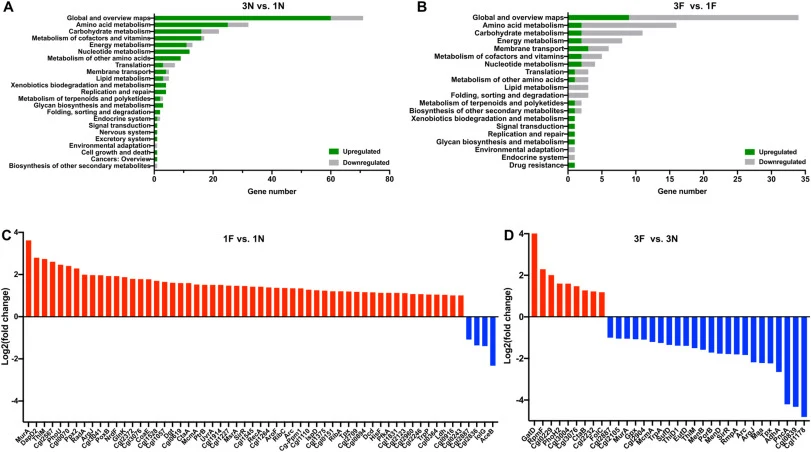
【数据】定量方法:SWATH-MS;比较组:1F vs. 1N、3F vs. 3N;功能分类:KEGG_small_class;关键上调通路:细胞壁生物合成、DNA修复;样本量:N=3;甲醛浓度:0.8 mM
3.5 Cgl1590突变对甲醛耐受性的影响
基于基因组测序和转录组/蛋白质组分析结果,进一步研究了Cgl1590(推定的糖异生因子)突变对甲醛耐受性的影响。氨基酸序列比对显示Cgl1590及其衍生物之间存在序列差异(图5A)。cgl1590截短对甲醛耐受性的影响如图5B所示。cgl1590敲除对甲醛耐受性的影响如图5C所示。cgl1590过表达对甲醛耐受性的影响如图5D所示。进一步研究表明Cgl1590参与细胞形态调控。这些结果为Cgl1590在甲醛耐受性中的关键作用提供了遗传学证据。
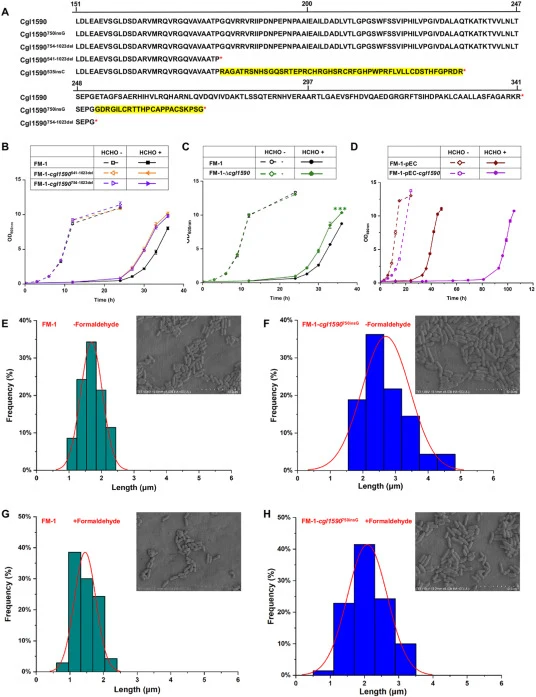
【数据】目标基因:cgl1590(推定的糖异生因子);突变类型:截短、敲除、过表达;表型:甲醛耐受性、细胞形态;甲醛浓度:原文未详述具体数值
讨论与解读
C1基生物制造近年来受到广泛关注。甲醛是C1生物转化过程中的关键中间体。然而,作为一种高毒性物质,甲醛可限制细胞生长和酶反应速率。尽管已在不同微生物中发现了若干赋予甲醛耐受性的机制[18,21–23],但细胞如何全局性响应甲醛胁迫的全面理解仍然有限。特别是,甲醛暴露对细胞代谢、基因调控和胁迫适应的更广泛影响仍知之甚少。因此,整合多组学方法的系统性研究对于揭示甲醛耐受性的分子基础至关重要。先前在其他微生物中的研究已鉴定了有助于甲醛耐受性的基因。例如,大肠杆菌中的脯氨酸氨肽酶PepP能够切割含硫代脯氨酸的肽段,减轻甲醛诱导的异常肽段[23]。Zhu等人证明,将秀丽隐杆线虫的DNA-蛋白质交联蛋白酶(GCNA1)与大肠杆菌的PepP结合,可有效减少甲醛诱导的DNA和蛋白质损伤,显著增强菌株对1.2 mM甲醛的耐受性[65]。此外,其他研究表明,增强大肠杆菌中的活性氧(ROS)清除系统或引入非天然的、真核生物特征的膜磷脂组成可……
本研究通过ALE成功获得了耐受2.6 mM甲醛的C. glutamicum进化菌株FM-3。整合转录组和蛋白质组分析揭示了细胞壁生物合成和DNA修复机制的上调是耐受性提升的关键因素。基因组测序鉴定了Cgl1199(转录终止因子Rho)和Cgl1590(推定的糖异生因子)等关键突变,其中Cgl1590参与细胞形态调控。该研究丰富了我们对C. glutamicum甲醛耐受机制的理解,为增强菌株对甲醛的耐受性提供了指导。
编译者解读:该研究采用ALE与多组学整合的策略,系统解析了谷氨酸棒杆菌甲醛耐受的分子机制,方法选择合理且数据层次丰富。Cgl1590作为推定的糖异生因子被鉴定为参与细胞形态调控和甲醛耐受,这一发现为合成生物学中底盘细胞的胁迫工程改造提供了新靶点。然而,研究尚未对关键突变进行组合验证,且多组学数据的因果验证仍以单基因操作为主,未来需通过全基因组尺度代谢模型或组合突变策略进一步验证耐受性提升的协同效应。该工作为C1生物制造中甲醛胁迫的理性设计提供了重要参考。
参考来源
期刊:Synthetic and Systems Biotechnology, 2026
DOI: 10.1016/j.synbio.2026.01.020
DOI: 10.1016/j.synbio.2026.01.020