来源:Molecular modification and heterologous expression of a β-galactosidase from Penicillium sp. in Aspergillusniger for the production of lactose-free and low-lactose dairy products(Food Research International)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
全球超过70%的人口受乳糖不耐受困扰,无乳糖及低乳糖乳制品市场需求快速增长。本研究以从土壤中分离的Penicillium sp.来源β-半乳糖苷酶PnβGal35A为起点,通过重塑催化口袋降低半乳糖产物抑制,获得水解能力提升24.2%的突变体Y347F/W791F;进一步对蛋白表面不稳定氨基酸进行脯氨酸替换,获得比活力提升23.7%的突变体Y347F/S619P/W791F。该突变体在A. niger中异源表达,经表达盒工程改造使产量提升1.60倍,5 L发酵罐高密度发酵酶活达1,555.1 U/mL。该酶在室温(25 °C)及低温(10 °C和4 °C)下均可高效水解乳糖(>90%,w/w),并在酸奶发酵中实现乳糖同步完全水解。
研究背景
乳制品是钙和维生素D的重要膳食来源,但全球超过70%的人口存在乳糖不耐受,东亚、非洲和南美洲尤为突出。乳糖不耐受者摄入乳制品后常出现腹胀、恶心、腹泻等胃肠道症状,限制了其从乳制品中获取必需营养素。无乳糖和低乳糖乳制品因此成为营养可及的替代品,该市场已成为乳制品行业中增长最快的板块之一。
工业上生产低乳糖乳制品的常见策略是在包装前添加β-半乳糖苷酶,使乳糖在储存和运输过程中完成水解。该策略简化了加工流程、降低了生产成本,并保留了乳制品的原始营养。然而,该策略的高效实施要求β-半乳糖苷酶在相对较低温度下仍保持高水解能力。目前报道的大多数用于乳糖水解的β-半乳糖苷酶的最适温度较高(50 °C–65 °C),包括来自Pediococcus acidilactici、Bacillus licheniformis等来源的酶。本研究旨在通过分子改造获得在温和及低温条件下高效水解乳糖的β-半乳糖苷酶,并在食品级宿主A. niger中实现高效表达。
研究方法
2.1 菌株、质粒与试剂
E. coli DH5α用作构建重组质粒的克隆宿主。K. phaffii GS115用于突变体的验证。本实验室保存的A. niger FBL-B(ΔglaA)用作表达宿主。β-半乳糖苷酶基因(PnβGal35A,GenBank: EPS25349.1)从Penicillium sp.中扩增,该菌株从土壤样品中分离并保存于本实验室。真菌基因组DNA提取试剂盒、pEASY-Blunt质粒、ClonExpress II一步克隆试剂盒、QuikChange Lightning Multi Site-Directed Mutagenesis Kit和葡萄糖检测试剂盒分别购自Macklin(上海,中国)、TransGen Biotech(北京,中国)、Vazyme(南京,中国)、Agilent Technologies(美国)和Sigma-Aldrich Biotechnology(上海,中国)。BP-800Pb++色谱柱由Benson Polymeric Company(Reno,美国)提供。其他试剂均为分析纯,购自商业渠道。
【数据】菌株:E. coli DH5α(克隆宿主)、K. phaffii GS115(突变体验证)、A. niger FBL-B(ΔglaA,表达宿主);基因:PnβGal35A,GenBank: EPS25349.1;试剂来源:Macklin、TransGen Biotech、Vazyme、Agilent Technologies、Sigma-Aldrich;色谱柱:BP-800Pb++;原文未详述其他试剂具体货号
2.2 通过重塑催化口袋提高水解能力
通过SWISS-MODEL(https://swissmodel.expasy.org)同源建模获得PnβGal35A的结构。使用POCASA(Predicting of Catalytic Active Site Architecture)(https://g6altair.sci.hokudai.ac.jp/g6/service/pocasa/)预测潜在催化口袋。根据预测的催化口袋位置调整Grid Box坐标,使用AutoDock 4.26进行酶与半乳糖的分子对接。使用PyMOL Molecular Graphics System对对接结果和催化口袋进行可视化分析,随后设计突变体。选择PnβGal35A催化口袋中距半乳糖6 Å范围内的氨基酸进行突变。为保持芳香环结构,芳香族残基替换为苯丙氨酸以增强与吡喃环的堆叠相互作用。非芳香族残基突变为两种小氨基酸,即丙氨酸和丝氨酸。丙氨酸用于消除侧链功能,丝氨酸用于增强该位点的氢键或极性相互作用。甘氨酸被排除在突变策略之外,因其倾向于增加主链柔性并破坏局部结构稳定性。以重组质粒pPIC9K-PnβGal35A为模板,使用QuikChange Lightning Multi Site-Directed Mutagenesis Kit构建突变体。经Dpn I消化后,PCR产物转化至E. coli DH5α以验证质粒正确性。验证后的质粒电穿孔至K. phaffii GS115以评估突变体的水解能力。所用引物列于表S1。
【数据】同源建模:SWISS-MODEL;催化口袋预测:POCASA;分子对接:AutoDock 4.26;突变范围:距半乳糖6 Å内的氨基酸;芳香族残基替换为:苯丙氨酸;非芳香族残基突变为:丙氨酸和丝氨酸;排除氨基酸:甘氨酸;模板质粒:pPIC9K-PnβGal35A;突变试剂盒:QuikChange Lightning Multi Site-Directed Mutagenesis Kit;消化酶:Dpn I;克隆宿主:E. coli DH5α;表达验证宿主:K. phaffii GS115;原文未详述PCR具体条件
2.3 通过蛋白表面修饰提高比活力
为提高突变体Y347F/W791F的比活力,对蛋白表面的不稳定氨基酸进行修饰。首先,使用美国国家生物技术信息中心(NCBI)的BLAST工具鉴定了一个与突变体Y347F/W791F具有高同一性且在蛋白质数据库(PDB)中有解析三维结构的β-半乳糖苷酶PsβGal(来自Penicillium sp.,PDB: 1TG7)。基于PsβGal的结构信息,使用YASARA和PyMOL Molecular Graphics Systems鉴定表面具有高B因子值(反映局部柔性增加)的不稳定氨基酸。随后通过序列比对将这些残基映射到突变体Y347F/W791F上,并替换为脯氨酸。定点突变按照2.2节所述方法进行。
【数据】同源结构:PsβGal(Penicillium sp.,PDB: 1TG7);比对工具:NCBI BLAST;B因子分析工具:YASARA和PyMOL;替换氨基酸:脯氨酸;定点突变方法:同2.2节;原文未详述B因子具体阈值
2.4 突变体在A. niger中的表达
使用引物PglaA-PnβGal35A-F和PglaA-PnβGal35A-R(表S1)扩增目标基因片段。为实现胞外表达,将目标基因与来自A. niger高表达内源葡糖淀粉酶基因(XM_001390493.3)的启动子(PglaA,−1至−1000 bp)和信号肽(SPglaA,1–18 aa)融合,形成基因表达盒。随后使用ClonExpress II One Step Cloning Kit将该表达盒与潮霉素B表达盒(作为筛选标记)连接,构建重组质粒PglaA-Y347F/S619P/W791F。重组质粒用Kpn I和Xba I线性化,然后通过PEG介导的原生质体转化导入A. niger。A. niger在100 mL糊精-蛋白胨-酵母提取物培养基中于30 °C培养2 d。使用布氏漏斗收集菌丝体,在10 mL裂解缓冲液中孵育以获得原生质体,随后离心并重悬于STC缓冲液(1.2 M D-山梨醇,50 mM Tris-HCl,50 mM CaCl₂,pH 8.0)中。随后,将120 μL原生质体悬液与100 μL线性化重组质粒和60 μL PEG溶液(50% PEG4000,50 mM CaCl₂,10 mM Tris-HCl,pH 8.0)混合,冰上孵育30 min。转化混合物与3 mL STC缓冲液和6 mL软琼脂混合,然后铺于Czapek-Dox培养基上。在30 °C孵育5–7 d后筛选阳性转化子。
【数据】启动子:PglaA(−1至−1000 bp);信号肽:SPglaA(1–18 aa);来源基因:A. niger葡糖淀粉酶基因(XM_001390493.3);筛选标记:潮霉素B;连接试剂盒:ClonExpress II One Step Cloning Kit;线性化酶:Kpn I和Xba I;转化方法:PEG介导的原生质体转化;培养基:100 mL糊精-蛋白胨-酵母提取物培养基;培养温度:30 °C;培养时间:2 d;裂解缓冲液体积:10 mL;STC缓冲液:1.2 M D-山梨醇,50 mM Tris-HCl,50 mM CaCl₂,pH 8.0;原生质体悬液:120 μL;质粒:100 μL;PEG溶液:60 μL(50% PEG4000,50 mM CaCl₂,10 mM Tris-HCl,pH 8.0);冰上孵育:30 min;STC缓冲液:3 mL;软琼脂:6 mL;筛选培养基:Czapek-Dox;筛选温度:30 °C;筛选时间:5–7 d
2.5 通过表达盒工程提高蛋白产量
为提高突变体Y347F/S619P/W791F在A. niger中的蛋白产量,对表达盒进行修饰,包括融合自组装两亲性肽(SAPs)、优化启动子和信号肽。这些修饰通过基于大引物的聚合酶链反应引入。首先,在目标基因N端插入PT连接肽(PTPPTTPTPPTTPTPT),然后与SAPs融合。SAPs包括S1(AEAEAKAKAEAEAKAK)、S2(AEAEAHAHAEAEAHAH)和S3(LELELKLKLELELKLK),分别对应重组质粒PglaA-S1-Y347F/S619P/W791F、PglaA-S2-Y347F/S619P/W791F和PglaA-S3-Y347F/S619P/W791F。接下来,将原始启动子PglaA替换为组成型启动子PgpdA,构建重组质粒PgpdA-S2-Y347F/S619P/W791F。随后,研究不同信号肽对突变体Y347F/S619P/W791F在A. niger中分泌的影响。使用PnβGal35A的天然信号肽(SPpn)替换原始信号肽(SPglaA)。然后将SPpn和SPglaA串联融合,分别构建重组质粒PglaA-SPpn-S2-Y347F/S619P/W791F和PglaA-SP(glaA-pn)-S2-Y347F/S619P/W791F。主要大引物序列列于表S1。
【数据】连接肽:PT(PTPPTTPTPPTTPTPT);SAPs序列:S1(AEAEAKAKAEAEAKAK)、S2(AEAEAHAHAEAEAHAH)、S3(LELELKLKLELELKLK);启动子:PglaA(原始,诱导型)、PgpdA(组成型);信号肽:SPglaA(原始)、SPpn(天然)、SP(glaA-pn)(串联融合);修饰方法:大引物PCR;原文未详述PCR具体条件
2.6 高密度发酵
突变体Y347F/S619P/W791F的高密度发酵在5 L发酵罐中进行。将350 mL种子培养液接种到3.15 L发酵基础培养基中,培养基含有10%(w/w)玉米淀粉水解物、3%(w/w)玉米浆、4%(w/w)脱脂大豆粉、1%(w/w)(NH4)2SO4、0.3%(w/w)KH2PO4和0.5%(w/w)MgCl2(pH 5.5)。初始淀粉水解物耗尽后,进行补料分批策略。每12 h添加补料培养基(50%玉米淀粉水解物)。在补料分批阶段,通过调节搅拌速率和空气流量将溶解氧水平维持在约5%。整个发酵过程中,监测湿细胞重量、蛋白浓度和β-半乳糖苷酶活性。发酵结束后,培养液在4 °C下以10,000 g离心20 min,收集上清液作为粗酶液。在20 mM Tris-HCl缓冲液(pH 7.5)中透析过夜后,将粗酶液加载到Q-Sepharose Fast Flow柱上,使用50 mM Tris-HCl缓冲液(pH 7.5)中的线性NaCl梯度(0–500 mM)洗脱。随后,含目标蛋白的组分通过超滤浓缩,并进一步进行凝胶过滤色谱(Sephacryl S-200),使用20 mM Tris-HCl缓冲液(pH 7.5),流速为0.5 mL/min。
【数据】发酵罐:5 L;种子培养液:350 mL;发酵基础培养基:3.15 L;培养基成分:10%(w/w)玉米淀粉水解物、3%(w/w)玉米浆、4%(w/w)脱脂大豆粉、1%(w/w)(NH4)2SO4、0.3%(w/w)KH2PO4、0.5%(w/w)MgCl2;pH:5.5;补料培养基:50%玉米淀粉水解物;补料间隔:每12 h;溶解氧:约5%;离心条件:10,000 g,4 °C,20 min;透析缓冲液:20 mM Tris-HCl,pH 7.5;离子交换柱:Q-Sepharose Fast Flow;洗脱梯度:0–500 mM NaCl;凝胶过滤柱:Sephacryl S-200;流速:0.5 mL/min;原文未详述发酵温度及发酵时间
2.7 酶活力和蛋白测定
原文未详述。
【数据】原文未详述
研究结果
3.1 通过重塑PnβGal35A催化口袋提高水解能力
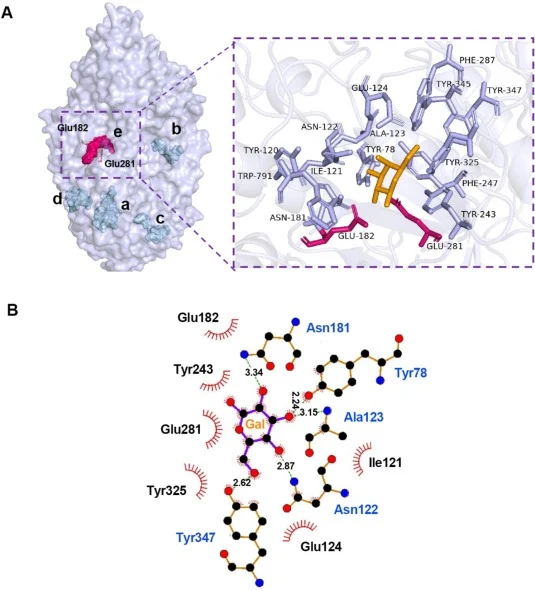
多序列比对显示,酸/碱催化剂和亲核试剂分别为Glu182和Glu281(图S1)。基于此,在POCASA预测的五个催化口袋中鉴定了PnβGal35A的催化口袋(图1A)。结构分析显示,催化口袋含有大量芳香族残基,可能与底物发生堆叠相互作用(图1A)。在半乳糖6 Å范围内,Ile121、Glu124、Tyr243和Tyr325与半乳糖形成疏水相互作用,而Tyr78、Asn122、Ala123、Asn181和Tyr347参与氢键相互作用(图1B)。共构建了16个突变体,除N181A外均保留了β-半乳糖苷酶活性(图S2)。在单突变体中,Y120F、Y347F和W791F的水解率分别为78.4 ± 1.0%、78.8 ± 0.2%和82.3 ± 0.2%,显著高于PnβGal35A(70.7 ± 0.8%)。突变体Y78F、I121S和N181S的水解能力与PnβGal35A相当。相比之下,其他突变体的水解能力严重受损(图2A)。为进一步研究上述正向突变的协同效应,构建了三个组合突变体。突变体Y120F/Y347F和Y120F/W791F的水解能力分别低于其各自的单突变体。突变体Y347F/W791F表现出显著提高的水解能力,水解率为87.8 ± 0.3%,与PnβGal35A相比提高了24.2%(图2B)。
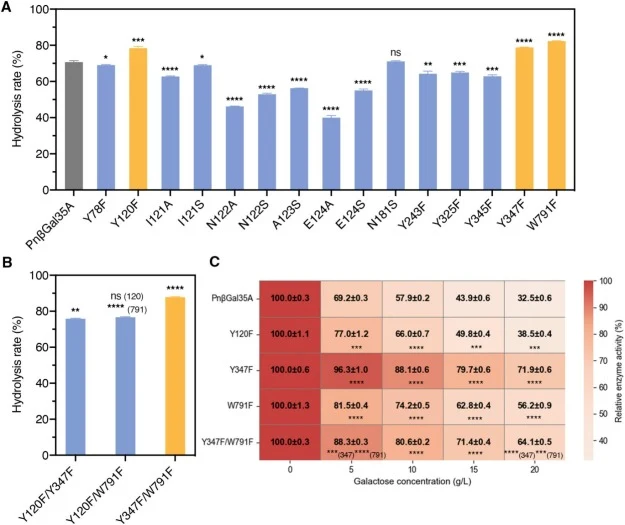
随后分析了半乳糖对PnβGal35A及其正向突变体的抑制效果。在5 g/L半乳糖存在下,PnβGal35A的相对酶活力为69.2 ± 0.3%,而当半乳糖浓度增至20 g/L时,该值降至32.5 ± 0.6%。相比之下,正向突变体Y120F、Y347F和W791F对半乳糖抑制的敏感性降低,在20 g/L半乳糖存在下,其相对酶活力分别为38.5 ± 0.4%、71.9 ± 0.6%和56.2 ± 0.9%。正向组合突变体Y347F/W791F也表现出对半乳糖抑制的敏感性降低,在5 g/L和20 g/L半乳糖浓度下,相对酶活力分别为88.3 ± 0.3%和64.1 ± 0.5%(图2C)。此外,还评估了葡萄糖对酶活力的影响。PnβGal35A和突变体Y347F/W791F均未观察到显著抑制作用(图S3)。
【数据】突变体:Y120F水解率78.4 ± 1.0%;Y347F水解率78.8 ± 0.2%;W791F水解率82.3 ± 0.2%;PnβGal35A水解率70.7 ± 0.8%;Y347F/W791F水解率87.8 ± 0.3%,提升24.2%;半乳糖抑制:5 g/L下PnβGal35A相对酶活力69.2 ± 0.3%,20 g/L下32.5 ± 0.6%;Y120F在20 g/L下38.5 ± 0.4%;Y347F在20 g/L下71.9 ± 0.6%;W791F在20 g/L下56.2 ± 0.9%;Y347F/W791F在5 g/L下88.3 ± 0.3%,20 g/L下64.1 ± 0.5%
3.2 通过蛋白表面修饰提高突变体比活力
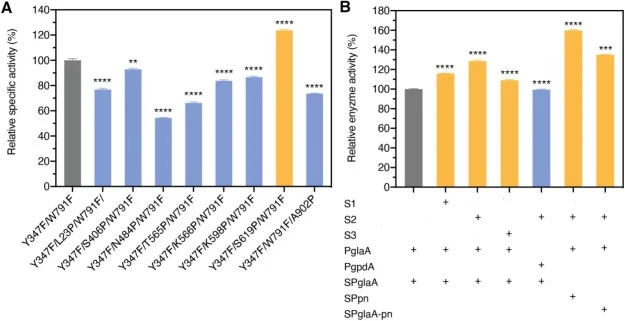
突变体Y347F/W791F的结构与来自Penicillium sp.的β-半乳糖苷酶(1TG7)高度相似(图S1),均方根偏差(RMSD)值为0.413 Å(5937个原子)。在1TG7的环区中鉴定出八个高B因子值的残基:Thr583、Leu41、Ser920、Ser637、Asn424、Asn502、Lys584和Asn616(按从高到低排序)。这些残基分别对应于突变体Y347F/W791F中的Thr565、Leu23、Ala902、Ser619、Ser406、Asn484、Lys566和Lys598(表S2)。将每个残基单独替换为脯氨酸,获得八个突变体。其中,突变体Y347F/S619P/W791F的比活力提高至434.5 ± 3.3 U/mg,比突变体Y347F/W791F(351.2 ± 4.5 U/mg)高23.7%。突变Y347F/L23P/W791F、Y347F/N484P/W791F、Y347F/T565P/W791F和Y347F/A902P/W791F导致比活力下降,而其他突变无显著影响(图3A)。
【数据】RMSD:0.413 Å(5937个原子);高B因子残基(1TG7):Thr583、Leu41、Ser920、Ser637、Asn424、Asn502、Lys584、Asn616;对应突变体残基:Thr565、Leu23、Ala902、Ser619、Ser406、Asn484、Lys566、Lys598;Y347F/S619P/W791F比活力:434.5 ± 3.3 U/mg;Y347F/W791F比活力:351.2 ± 4.5 U/mg;提升:23.7%
3.3 突变体在A. niger中的表达及产量提高
突变体Y347F/S619P/W791F使用诱导型启动子PglaA和信号肽SPglaA在A. niger中成功表达,摇瓶发酵酶活力为374.1 ± 1.4 U/mL。将三种不同的SAPs融合到目标基因N端,均成功增强了突变体Y347F/S619P/W791F的胞外产量。与S1和S3融合分别导致酶活力为433.6 ± 1.1 U/mL和407.8 ± 2.2 U/mL。值得注意的是,S2融合效果最显著,酶活力提高至481.0 ± 4.0 U/mL(图3B)。为进一步研究启动子对酶产量的影响,将原始诱导型启动子PglaA替换为组成型启动子PgpdA,导致酶活力下降(372.0 ± 1.8 U/mL)。进一步优化信号肽发现,突变体Y347F/S619P/W791F的天然信号肽(SPpn)对酶产量表现出正向效应,酶活力为598.1 ± 2.9 U/mL。然而,当SPpn和SPglaA串联融合时,突变体Y347F/S619P/W791F的酶活力下降至504.9 ± 1.4 U/mL(图3B)。因此,最终表达盒通过将S2(AEAEAHAHAEAEAHAH)融合在目标基因N端,使用诱导型启动子PglaA和天然信号肽SPpn构建。与表达盒工程改造前的重组菌株相比,该策略使突变体Y347F/S619P/W791F的胞外蛋白分泌水平提高了1.60倍。
【数据】初始表达:PglaA + SPglaA,酶活力374.1 ± 1.4 U/mL;S1融合:433.6 ± 1.1 U/mL;S3融合:407.8 ± 2.2 U/mL;S2融合:481.0 ± 4.0 U/mL;PgpdA替换:372.0 ± 1.8 U/mL;SPpn替换:598.1 ± 2.9 U/mL;SP(glaA-pn)串联:504.9 ± 1.4 U/mL;最终表达盒:PglaA + SPpn + S2;胞外蛋白分泌提升:1.60倍
3.4 高密度发酵
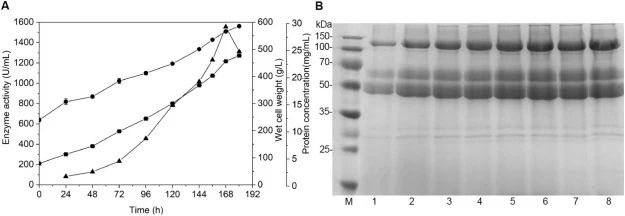
突变体Y347F/S619P/W791F的酶活力在发酵过程中逐渐增加,在补料分批发酵168 h后达到最大值1,555.1 ± 5.6 U/mL,蛋白浓度为23.1 ± 0.1 mg/mL(图4)。目标酶主要以可溶形式分泌到发酵上清液中。经离子交换色谱和凝胶过滤(Sephacryl S-200)后,来自A. niger的内源性淀粉酶(对应约40和约60 kDa条带)被去除。目标酶纯化至均一,显示约110 kDa的单一条带,与其预测分子量109 kDa一致(图S4)。
【数据】最大酶活力:1,555.1 ± 5.6 U/mL;发酵时间:168 h;蛋白浓度:23.1 ± 0.1 mg/mL;内源淀粉酶分子量:约40和约60 kDa;目标酶分子量:约110 kDa;预测分子量:109 kDa
3.5 突变体Y347F/S619P/W791F的酶学性质
突变体Y347F/S619P/W791F的最适pH在50 mM柠檬酸缓冲液中测定为5.5,比PnβGal35A(pH 4.5)高一个单位(图5A)。与PnβGal35A相当,突变体Y347F/S619P/W791F在4.0–7.5的宽pH范围内保留了超过80%的原始酶活力(图5C)。突变体Y347F/S619P/W791F的最适温度为55 °C,比PnβGal35A(60 °C)低5 °C,在25 °C下保留了超过40%的原始酶活力(图5B)。此外,突变体Y347F/S619P/W791F和PnβGal35A在55 °C以下均保持了超过80%的原始酶活力(图5D)。突变体Y347F/S619P/W791F对乳糖表现出更高的催化效率,k cat和k cat/K m值分别为286.4 s−1和11.0 s−1 mM−1,均高于PnβGal35A(266.1 s−1;9.7 s−1 mM−1)(表S3)。
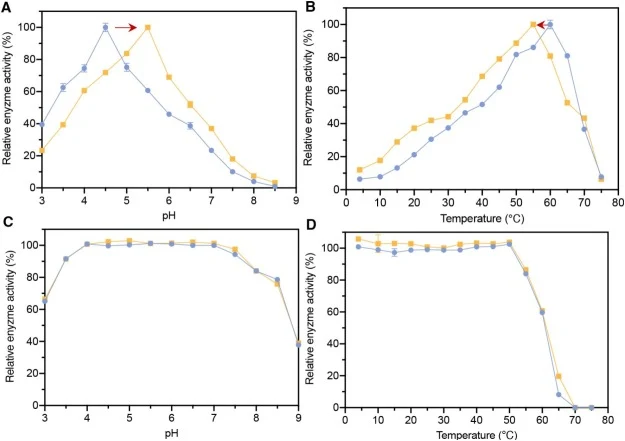
【数据】最适pH:突变体5.5,PnβGal35A 4.5;pH稳定性范围:4.0–7.5,保留>80%;最适温度:突变体55 °C,PnβGal35A 60 °C;25 °C下保留>40%酶活力;55 °C以下保留>80%酶活力;k cat:突变体286.4 s−1,PnβGal35A 266.1 s−1;k cat/K m:突变体11.0 s−1 mM−1,PnβGal35A 9.7 s−1 mM−1
3.6 突变体Y347F/S619P/W791F在无乳糖或低乳糖乳制品生产中的应用
突变体Y347F/S619P/W791F用于在室温(25 °C)下水解UHT牛奶中的乳糖。反应18 h后,乳糖水解率达到90.8 ± 0.3%,剩余乳糖含量为0.43 ± 0.01 g/100 g。根据中国标准,该产品符合"无乳糖"牛奶(≤0.5 g/100 g)。根据欧盟标准,被归类为"低乳糖"类别(≤1 g/100 g)。相比之下,在相同条件下,野生型酶(PnβGal35A)在24 h后乳糖水解率为75.9 ± 0.4%,剩余乳糖含量为1.13 ± 0.02 g/100 g,未能达标。此外,与来自A. oryzae的商业β-半乳糖苷酶(AoβGal)相比,突变体Y347F/S619P/W791F在室温下牛奶中的乳糖水解表现出适度增强。
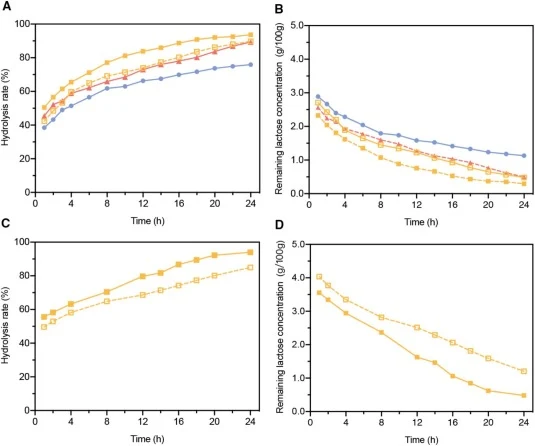
【数据】UHT牛奶:25 °C,18 h,水解率90.8 ± 0.3%,剩余乳糖0.43 ± 0.01 g/100 g;PnβGal35A:24 h,水解率75.9 ± 0.4%,剩余乳糖1.13 ± 0.02 g/100 g;中国标准:无乳糖≤0.5 g/100 g;欧盟标准:低乳糖≤1 g/100 g
讨论与解读
乳制品是重要的膳食来源,但乳糖不耐受限制了全球相当比例人口的乳制品消费。利用β-半乳糖苷酶酶法生产无乳糖和低乳糖乳制品是解决该问题的有效且广泛接受的策略。本研究中,来自Penicillium sp.的β-半乳糖苷酶经过分子改造增强了其水解能力和比活力,随后在A. niger中异源表达并进行高密度发酵,最后评估了其在无乳糖和低乳糖乳制品中的适用性。
半乳糖的产物抑制是β-半乳糖苷酶高效水解乳糖的主要限制因素,因为半乳糖可形成中间复合物,与乳糖竞争进入催化中心。降低半乳糖与催化位点的相互作用是提高β-半乳糖苷酶水解能力的有效策略。本研究中,通过重塑PnβGal35A的催化口袋降低了半乳糖的产物抑制。突变体Y347F/W791F相对于PnβGal35A水解能力提高了24.2%。分子对接分析结果显示,突变体Y347F/W791F的酶-半乳糖结合能(−5.0024 kcal/mol)高于PnβGal35A(−8.3002 kcal/mol),表明结合减弱。
编译者解读
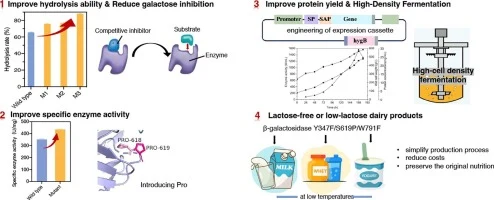
该研究展示了一条从理性设计到工业表达的完整链路:先以结构生物学手段解除产物抑制,再以脯氨酸替换稳定蛋白表面,最后在食品级黑曲霉中完成高效分泌。方法选择上,催化口袋重塑与表面稳定性改造分步进行,逻辑清晰;但突变位点仍依赖同源结构映射,对Penicillium来源酶自身晶体结构的缺失可能限制精度。应用层面,该酶在25 °C乃至4 °C的低温活性使其适合"包装前加酶"的工业场景,1,555.1 U/mL的发酵水平也具备放大潜力。局限在于,研究未展示胃蛋白酶/胰蛋白酶耐受性及长期储存稳定性数据,这两项对乳制品终端应用同样关键。
参考来源
期刊:Food Research International, 2026
DOI: 10.1016/j.foodres.2026.119890
DOI: 10.1016/j.foodres.2026.119890