来源:Deep Learning-Guided Engineering of Phospholipase A2 for Enhanced Catalytic Properties and Efficient Heterologous Expression in Bacillus subtilis(Food Bioscience)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
磷脂酶A2(PLA2)在食品加工、油脂精炼和生物技术领域应用广泛,但天然来源的PLA2往往活性不足、热稳定性差,限制了其工业化应用。本研究将深度学习模型MutCompute引入PLA2的理性设计,通过筛选与局部化学微环境不匹配的残基位点,构建单点及组合突变体,获得了比活提升225%、50°C半衰期从26.69分钟延长至33.85分钟的三重突变体N21E/I84L/Q116M。随后在枯草芽孢杆菌中优化启动子与信号肽,使表达量提升69.6%、分泌量提升18.4%,并构建全细胞催化剂用于大豆卵磷脂转化,产物量较野生型提高48.8%。
研究背景
磷脂酶A2(PLA2,EC 3.1.1.4)水解磷脂sn-2位酯键,释放游离脂肪酸和对应的溶血磷脂,广泛用于磷脂改性、油脂精炼、饲料添加剂、科学研究和医学治疗。天然卵磷脂经PLA2生物转化后生成的溶血磷脂酰胆碱乳化性能更强,能在多种工艺条件下形成稳定乳液,因此在食品、化妆品和制药等工业领域应用广泛。作为首个被发现的微生物来源PLA2,紫色链霉菌PLA2(SvPLA2)凭借优异的催化性能、热稳定性和底物适应性被视为极具潜力的工业生物催化剂。与传统的动植物来源PLA2相比,它在温和温度和pH条件下表现出显著活性和稳定性,在植物油精炼的酶法脱胶中表现突出,可将油脂磷含量降至工业标准以下,简化后续精炼工艺。在蛋制品加工、烘焙和乳制品生产等多个食品制造领域,其安全性已获EFSA食品专家组评估。
研究方法
2.1 菌株、质粒、试剂与培养条件
质粒和菌株见表S1,引物见表S2。枯草芽孢杆菌168和解淀粉芽孢杆菌LB1ba02用作启动子扩增模板。SvPLA2基因经密码子优化后由生工生物工程(上海)股份有限公司合成。枯草芽孢杆菌SCK6M用于载体构建,SCK6M和WB800均用于相关发酵测试。PrimeSTAR Max DNA聚合酶和In-Fusion® Snap Assembly Master Mix购自宝日医生物技术(大连)有限公司。KOD One™ PCR Master Mix购自东洋纺(上海)生物科技有限公司。HEPC购自上海麦克林生化科技有限公司。磷脂酶A2(PLA2,14.5 kDa,猪胰腺来源)购自上海源叶生物科技有限公司。其他化学试剂购自上海阿拉丁生化科技股份有限公司。
【数据】菌株:枯草芽孢杆菌168、解淀粉芽孢杆菌LB1ba02、枯草芽孢杆菌SCK6M、枯草芽孢杆菌WB800;质粒:见表S1;试剂:PrimeSTAR Max DNA Polymerase、In-Fusion® Snap Assembly Master Mix、KOD One™ PCR Master Mix、HEPC、猪胰腺PLA2(14.5 kDa);温度:原文未详述;时间:原文未详述
2.2 培养基与培养条件
质粒构建时,枯草芽孢杆菌SCK6M在LB培养基(10 g/L胰蛋白胨、5 g/L酵母提取物、5 g/L NaCl)中于37°C、220 rpm培养。蛋白表达时,枯草芽孢杆菌在TB培养基(12 g/L胰蛋白胨、24 g/L酵母提取物、2.31 g/L KH2PO4、12.54 g/L K2HPO4·3H2O、5 g/L甘油)中于37°C、220 rpm振荡培养24小时。必要时向培养基中添加50 μg/mL卡那霉素。
【数据】培养基:LB(10 g/L胰蛋白胨、5 g/L酵母提取物、5 g/L NaCl)、TB(12 g/L胰蛋白胨、24 g/L酵母提取物、2.31 g/L KH2PO4、12.54 g/L K2HPO4·3H2O、5 g/L甘油);温度:37°C;转速:220 rpm;时间:24 h;抗生素:50 μg/mL卡那霉素
2.3 启动子文库构建
以引物对SvPLA2-F/R从pUC57-SvPLA2扩增SvPLA2基因,以VT-P43F/VT-TerR从pBE-P43-SPaprE扩增载体骨架。两片段用In-Fusion® Snap Assembly Master Mix组装并转化感受态细胞。转化子在含50 μg/mL卡那霉素的LB平板上筛选,经PCR验证获得pBE-P43-SPaprE-SvPLA2WT。启动子文库基于pBE-P43-SPaprE-SvPLA2WT按相同策略构建。骨架用VT-SaprE-F/VT-SaprE-R扩增,启动子以枯草芽孢杆菌168和解淀粉芽孢杆菌LB1ba02为模板扩增。所有引物见表S2。
【数据】质粒:pUC57-SvPLA2、pBE-P43-SPaprE;抗生素:50 μg/mL卡那霉素;模板菌株:枯草芽孢杆菌168、解淀粉芽孢杆菌LB1ba02;方法:In-Fusion组装、PCR验证
2.4 基于MutCompute预测的单点突变
以pBE-P43-SPaprE-SvPLA2WT为模板引入MutCompute分析建议的突变。所用引物见表S2,使用KOD One™ PCR Master Mix扩增并引入突变。MutCompute预测结果见表S3。为确保所选变体的高置信度,建立了严格的截断阈值log2(P pred/P wt) > 2.0。应用该数学标准最终获得11个候选突变用于后续实验验证。
【数据】模板:pBE-P43-SPaprE-SvPLA2WT;阈值:log2(P pred/P wt) > 2.0;候选突变数:11个;试剂:KOD One™ PCR Master Mix;预测工具:MutCompute
2.5 分子建模与分子对接
SvPLA2晶体结构1FAZ已在PDB平台公开。变体结构通过PyMOL的"mutate"功能生成,并经Ramachandran图验证。配体1-十六烷基-3-三氟乙基-sn-甘油-2-磷酸甲醇(MJI)从PubChem获取。使用AutoDock tools处理蛋白和配体文件并进行分子对接。SvPLA2蛋白作为刚性体,采用半柔性结合方法。结合区域定义为以SvPLA2催化活性中心为中心的40×40×40 ų盒子。经20轮对接后,根据结合能选择最优对接结构并进一步用于MD模拟。分子动力学(MD)模拟使用GROMACS 2022.3软件进行。这些体系在310 K下使用Amber14sb力场和Tip3p水模型模拟100 ns。环区柔性量化为残基70–80在完整100 ns轨迹上的平均每残基RMSF(所有蛋白原子)。相关运动通过Cα位移的动态交叉相关分析表征,两个替换的非加和性通过比较双突变体观察到的变化与两个单突变体变化之和来评估。自由能景观和残基相互作用网络从相同轨迹计算,方法分别见补充方法S1和S2。
【数据】PDB编号:1FAZ;配体:MJI;对接盒子:40×40×40 ų;对接轮数:20轮;软件:GROMACS 2022.3;力场:Amber14sb;水模型:Tip3p;温度:310 K;模拟时长:100 ns;环区残基:70–80
2.6 蛋白表达与纯化
挑取单菌落置于10 mL LB培养基中,37°C、220 rpm振荡培养12小时。随后将种子培养液以2%(v/v)浓度接种到50 mL新鲜TB培养基中,在相同条件下37°C、220 rpm培养。发酵24小时后,离心收集上清液(粗酶液),测定PLA2酶活。每个样品进行三次平行测试。收集的粗酶液使用HisTrapTM HP蛋白层析镍柱纯化,分别用50、150和250 mM咪唑洗脱。纯化蛋白通过SDS-PAGE评估。随后使用Amicon Ultra 10,000 MWCO(Millipore)去除盐和咪唑,并用BCA蛋白检测试剂盒分析其浓度。
【数据】种子培养:10 mL LB、37°C、220 rpm、12 h;接种量:2%(v/v);发酵体积:50 mL TB;发酵条件:37°C、220 rpm、24 h;平行次数:3次;纯化柱:HisTrapTM HP镍柱;咪唑浓度:50、150、250 mM;超滤膜:Amicon Ultra 10,000 MWCO;浓度检测:BCA试剂盒
2.7 PLA2活性测定
PLA2活性采用微板比色法测定。以磷脂类似物2-十六烷酰硫代-l-乙基磷酸胆碱(HEPC)为底物。该底物的sn-2位被硫酯键取代,仍可被磷脂酶A2水解,释放游离巯基。使用5,5'-二硫代双(2-硝基苯甲酸)(DTNB)在410 nm波长处测定吸光度,通过换算巯基量计算酶活。猪胰腺磷脂酶A2用于校准检测方法。商业标准品用上述相同比色法测定,其测定活性与供应商指定活性比较,得到转换因子123.7。因此所有活性均以等效酶活报告,即测定活性乘以该因子(Aequivalent = Ameasured × 123.7)。比较酶变体或遗传元件时使用相对活性(%)。最终生产菌株和全细胞催化剂使用等效活性。50°C处理10分钟后的残余活性用作变体排序的快速筛选指标,而热稳定性仅以完整失活动力学确定的半衰期(t1/2)报告。实验数据拟合非线性回归方程,PLA2半衰期(t1/2)用Origin计算。pH稳定性实验中,PLA2在不同pH(6.0–9.0)缓冲液中于4°C保存12小时。pH 6.0–6.5使用磷酸缓冲液,pH 7.0–9.0使用Tris-HCl缓冲液。以孵育前溶液活性为100%,孵育后酶液用相同方法测定。所有测定均设三次重复。
【数据】方法:微板比色法;底物:HEPC;检测波长:410 nm;显色剂:DTNB;校准酶:猪胰腺PLA2;转换因子:123.7;筛选条件:50°C、10 min;pH范围:6.0–9.0;缓冲液:磷酸缓冲液(pH 6.0–6.5)、Tris-HCl缓冲液(pH 7.0–9.0);保存温度:4°C;保存时间:12 h;重复次数:3次
2.8 5-L生物反应器放大发酵生产PLA2
种子培养液以10%(v/v)接种到5-L生物反应器中。温度控制在37°C,pH通过自动添加磷酸和氨水维持在7.0。通气量保持1.0 vvm,溶解氧(DO)通过级联控制回路维持在空气饱和度的30%,其中DO信号自动调节搅拌速度在200至800 rpm之间。补料在12小时启动,24小时结束,期间以10 mL/h恒定速率供应10×浓缩TB培养基。
【数据】接种量:10%(v/v);反应器体积:5 L;温度:37°C;pH:7.0(磷酸和氨水自动调节);通气量:1.0 vvm;溶解氧:30%空气饱和度;搅拌速度:200–800 rpm;补料时间:12–24 h;补料速率:10 mL/h;补料培养基:10×浓缩TB
2.9 大豆卵磷脂的生物转化
PLA2水解大豆卵磷脂生成溶血磷脂……(原文此处中断)
【数据】原文未详述
研究结果
3.1 通过深度学习神经网络改进PLA2功能
为鉴定SvPLA2工程改造的候选替换位点,使用3D自监督CNN模型MutCompute筛选与其局部化学微环境不匹配的突变位点。MutCompute以残基原子坐标、部分电荷和溶剂可及表面积为结构特征,输入3D自监督卷积神经网络(3D-CNN网络)。该模型基于超过19,000个序列平衡的蛋白结构训练,能够针对残基的局部化学微环境优化野生型氨基酸残基。以SvPLA2晶体结构(PDB: 1FAZ)为输入信息,使用MutCompute获得SvPLA2每个位置20种典型氨基酸结构拟合的离散概率分布。概率分布展示在SvPLA2晶体结构上(图1A),每个氨基酸残基被赋予一个概率分布,反映其与邻近化学微环境的化学一致性。通过比较残基在现有突变体上的预测概率值与其在野生型(WT)中的概率差异,衡量该残基在WT结构中的"不匹配程度"。选取野生型氨基酸残基预测结果最不利的11个位点作为初始突变文库(图1B),突变位点在PLA2结构中的分布见图1C。基于突变文库构建单点突变株。在11个单点突变中,N21E、Q47K、D50S、F53H、Y68H、I84L和Q116M的相对酶活高于WT,分别提高32%、20%、103%、27%、20%、69%和60%(图1D)。50°C孵育10分钟后测定突变体残余活性。结果显示所有突变体残余活性均下降。在测试的变体中,D50S和I84L酶活提升最为显著,其残余活性分别为62%和70%,而WT为77%(图1E)。
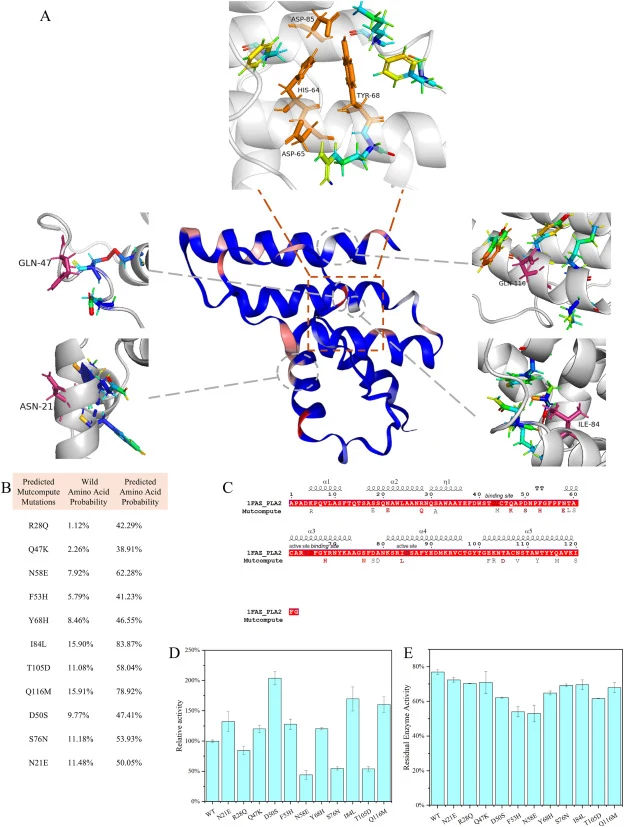
【数据】模型:MutCompute(3D-CNN);训练结构数:>19,000;PDB编号:1FAZ;候选突变数:11个;相对酶活提升:N21E +32%、Q47K +20%、D50S +103%、F53H +27%、Y68H +20%、I84L +69%、Q116M +60%;残余活性(50°C、10 min):D50S 62%、I84L 70%、WT 77%
3.2 组合突变克服单点变体的活性-稳定性权衡
将7个酶活提高的单点突变(N21E、Q47K、D50S、F53H、Y68H、I84L和Q116M)进行组合以进一步提升PLA2性能。综合考虑酶活和残余活性,选择I84L突变体作为组合突变的起点,添加其他位点构建突变体。其中,I84L/Q116M突变体酶活显著提高,较WT提升213%(图2A),残余活性为86%,WT为77%(图2B)。为尽可能获得最优突变株,在I84L/Q116M突变体基础上进一步组合突变。最终获得两个三重突变体N21E/I84L/Q116M和Q47K/I84L/Q116M,以及一个四重突变体N21E/Q47K/I84L/Q116M。N21E/I84L/Q116M突变体酶活最高(图2A),较WT(培养上清中)提升407%,残余活性为84%(图2B)。Q47K/I84L/Q116M突变体残余活性最高(95%)(图2B),酶活提升304%(图2A)。四重突变体N21E/Q47K/I84L/Q116M酶活较WT提升206%(图2A),残余活性为86%(图2B)。选择酶活最高的N21E/I84L/Q116M突变体进行表征验证。粗酶液经镍柱纯化后获得高纯度酶液(图2C)。通过50°C孵育评估SvPLA2-WT和N21E/I84L/Q116M突变体的热稳定性(图2D)。N21E/I84L/Q116M突变体热稳定性较SvPLA2-WT提高。半衰期显著延长至33.85分钟,较SvPLA2-WT提高27%(表1和图2D)。一致地,50°C孵育60分钟后,SvPLA2-WT几乎无酶活,而N21E/I84L/Q116M突变体保留约14%的初始活性。三重突变体N21E/I84L/Q116M的比活和动力学参数总结于表1。突变体比酶活提高225%,达到367030 U/mg(表1)。三重突变体米氏常数(Km)降低约50%,从WT的49.75 μM降至24.82 μM,表明对底物结合亲和力更强。催化常数(kcat)提高5.2倍,从WT的30265 s⁻¹增至突变体的157007 s⁻¹。N21E/I84L/Q116M突变体的催化效率(kcat/Km)达到6326 μM⁻¹·s⁻¹,较WT(608 μM⁻¹·s⁻¹)提高10.4倍。最适pH和pH稳定性测试结果如下(图2E–F)。SvPLA2-WT仅在pH 7.0–7.5之间保持高活性,pH 8.0时活性降至最适值的58.7%。相比之下,N21E/I84L/Q116M在更宽的pH范围(6.0–9.0)内有活性,活性≥71.5%;pH 8.0时活性最高,pH 7.5–9.0之间超过该最大值的95%。N21E/I84L/Q116M突变体酶活和稳定性的提升展示了更高的应用潜力。
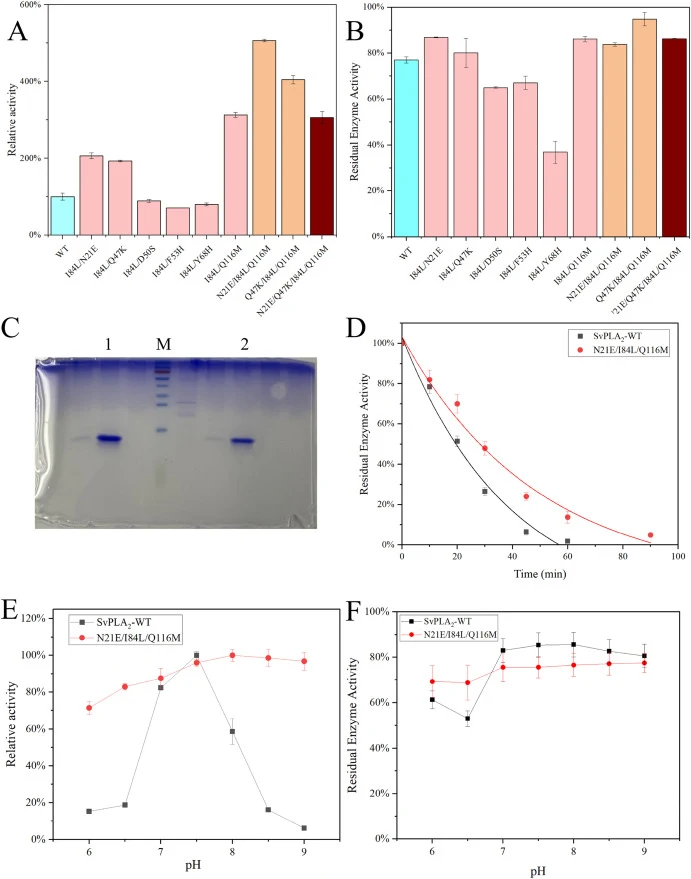
【数据】I84L/Q116M:酶活+213%、残余活性86%;N21E/I84L/Q116M:酶活+407%、残余活性84%、半衰期33.85 min(+27%)、50°C 60 min残余活性~14%、比酶活367030 U/mg(+225%)、Km 24.82 μM(WT 49.75 μM,降低~50%)、kcat 157007 s⁻¹(WT 30265 s⁻¹,提高5.2倍)、kcat/Km 6326 μM⁻¹·s⁻¹(WT 608 μM⁻¹·s⁻¹,提高10.4倍);Q47K/I84L/Q116M:残余活性95%、酶活+304%;N21E/Q47K/I84L/Q116M:酶活+206%、残余活性86%;WT:残余活性77%、pH 7.0–7.5高活性、pH 8.0活性58.7%;突变体pH 6.0–9.0活性≥71.5%、pH 8.0最高
3.3 PLA2突变体性能提升机制的分子动力学分析
为阐明N21E/I84L/Q116M突变体生物催化性能增强的分子基础,进行了100 ns分子动力学(MD)模拟。与WT SvPLA2相比,突变体表现出更低且更稳定的RMSD轨迹,而WT显示出明显的阶梯式增加,表明突变体在催化过程中保持构象稳定性(图3A)。同时,RMSF分析显示突变体环区(残基73–77)柔性降低(图3B)。此外,突变体平均溶剂可及表面积(SASA)略有但统计学显著的降低,标准差减小(71.04 ± 0.19 vs. 71.74 ± 0.42 nm²)(图3C)。这些指标共同表明突变体采用更紧凑和刚性的整体构象,为活性中心提供了理想、稳固的支架。这种结构刚性化直接影响催化口袋。通过追踪MD模拟中活性中心质心与底物(MJI)之间的距离,观察到SvPLA2-WT中底物严重偏离(后期增至约1.2 nm)(图3D)。相比之下,突变体将底物稳定锚定在约0.85 nm,显著缩短了反应物空间距离。这种空间邻近效应与生化性能改善一致,表明催化反应的熵罚降低。此外,尽管分子对接显示整体结合能相当(表S4),ProteinsPlus计算揭示突变体催化口袋显著增大(体积:763.46至878.91 ų;表面积:1035.49至1290.15 Ų)(图S1)。为进一步揭示这种整体刚性的原子层面基础,进行了结构叠加(图4D)和局部结构分析(图4A-C)。局部相互作用映射表明,I84L的引入显著改变了与邻近残基的相互作用,从而重建了区域氢键和疏水网络。此外,N21E突变引入了一个额外氢键,进一步锚定局部结构。对于Q116M突变,除了维持与L118的原始疏水接触外,甲硫氨酸残基还建立了……
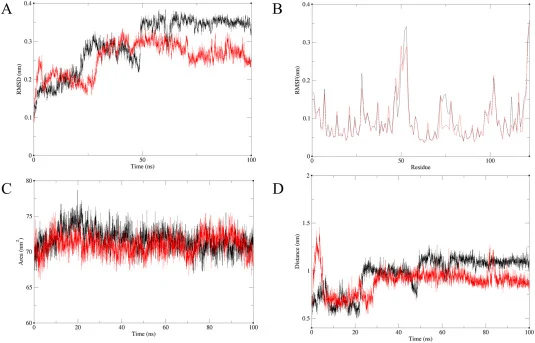
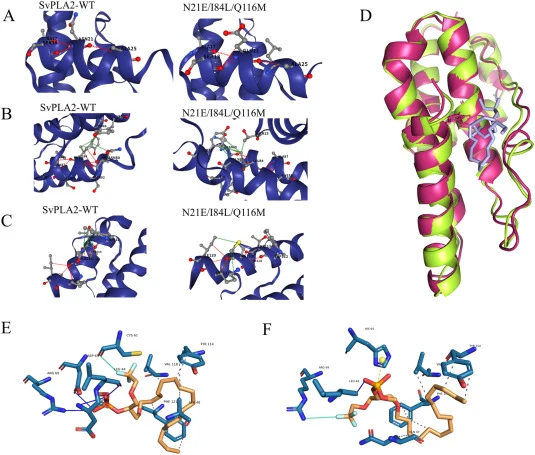
【数据】模拟时长:100 ns;RMSF降低区域:残基73–77;SASA:突变体71.04 ± 0.19 nm² vs. WT 71.74 ± 0.42 nm²;底物距离:WT增至~1.2 nm、突变体~0.85 nm;催化口袋体积:763.46→878.91 ų;表面积:1035.49→1290.15 Ų
3.4 表面电荷分析
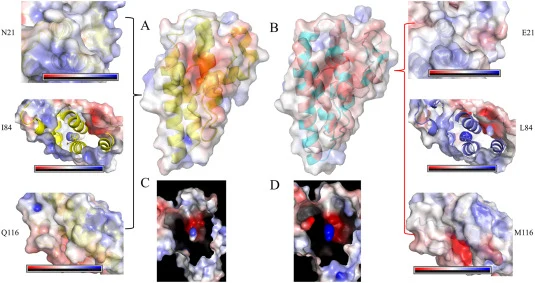
【数据】原文未详述
3.5 重组枯草芽孢杆菌高效分泌生产SvPLA2
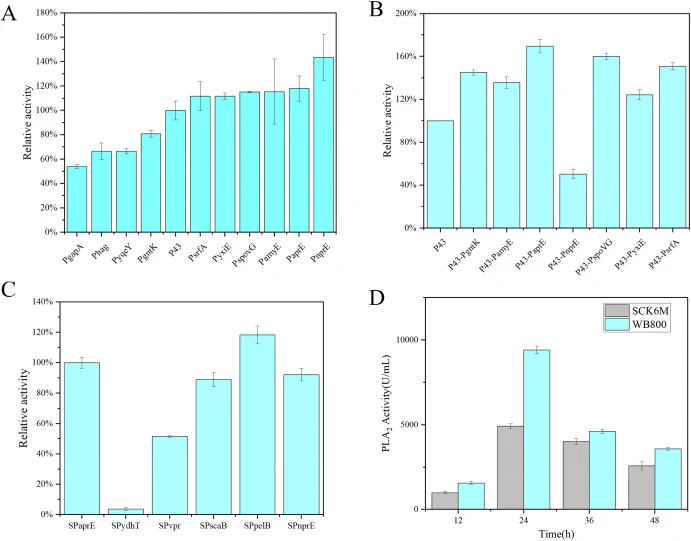
【数据】原文未详述
3.6 全细胞催化剂的制备及其在大豆卵磷脂转化为溶血磷脂酰胆碱中的应用
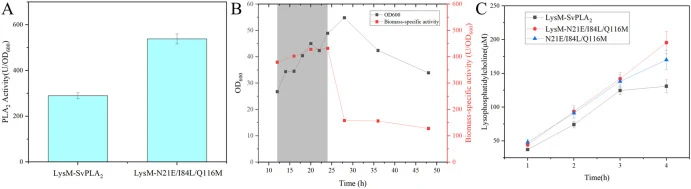
【数据】原文未详述
讨论与解读
PLA2的工业应用长期受限于其催化效率不足和极端条件下热稳定性差。本研究采用深度学习引导的理性设计成功改造了来自紫色链霉菌的野生型PLA2(SvPLA2),并在GRAS认证的枯草芽孢杆菌宿主中实现了高水平分泌表达和表面展示。基于微环境的MutCompute筛选已成功应用于PET水解酶和Bst DNA聚合酶的变体改良,类似的结构引导工作流也被用于糖基转移酶。本研究将该方法拓展至磷脂酶A2家族。性能提升可通过催化环境变化来解释:I84L和Q116M在催化通道中引入了更疏水的侧链,应能增加对脂质底物的亲和力并降低空间位阻(与MD模拟中更大的口袋一致);N21E是强负电斑块,调节局部构象并可能引导底物趋向活性位点。内部通道扩张结合表面静电优化(图5)解释了组合变体观察到的增益。与此一致,底物被保留在……
编译者解读:本研究的方法论价值在于将深度学习预测与经典定向进化策略衔接——MutCompute以局部化学微环境匹配度为标尺,将突变搜索空间从随机文库压缩至11个高置信候选,显著降低了筛选成本。值得注意的是,单点突变中活性提升最显著的D50S(+103%)在组合突变中并未保留,而中等提升的I84L(+69%)反而成为组合核心,说明活性-稳定性的非加和效应难以从单点数据线性外推。该研究在宿主工程层面同样完整:启动子与信号肽的双重优化使分泌量进一步提升,全细胞催化剂的设计则绕开了纯化成本瓶颈。局限在于,讨论部分对突变体在有机溶剂或高温工业场景下的长期稳定性着墨有限,从实验室50°C半衰期到实际油脂脱胶工艺之间仍有验证距离。
参考来源
期刊:Food Bioscience, 2026
DOI: 10.1016/j.fbio.2026.110077
DOI: 10.1016/j.fbio.2026.110077