来源:Integrated transcriptomic and metabolomic analyses reveal TPS1 as a key regulator linking cell wall integrity to aflatoxin production in Aspergillus flavus(International Journal of Food Microbiology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
黄曲霉(Aspergillus flavus)污染玉米、花生等主粮作物并产生I类致癌物黄曲霉毒素B1(AFB1),是全球食品安全领域的重大威胁。海藻糖-6-磷酸合成酶(TPS1)是碳代谢的关键闸门,但其在黄曲霉形态建成与次级代谢中的多重功能尚不清楚。本研究通过基因敲除、表型分析、转录组与代谢组整合分析,证明TPS1是菌核发育、胁迫适应和黄曲霉毒素生物合成不可或缺的调控因子,并揭示其通过碳代谢重编程连接细胞壁完整性与毒素产生的分子机制。
研究背景
黄曲霉属于子囊菌门曲霉科,是一种丝状真菌,广泛分布于各种环境中,在采收前和采收后均可污染玉米、花生和树坚果等粮食作物。在适宜的环境条件下,黄曲霉通常产生多种次级代谢产物,其中黄曲霉毒素因其对人类健康、食品安全和农业经济的破坏性影响而最具全球意义。AFB1被国际癌症研究机构列为I类致癌物,是最严重的致肝癌化合物。因此,如何减少甚至消除黄曲霉和黃曲霉毒素引起的污染已成为关键研究课题。为解决菌株本身感染和黄曲霉毒素问题,大量研究致力于揭示黄曲霉的调控机制。历史上,真菌生存的必需组分已被成功开发为抗真菌靶点,例如靶向麦角固醇生物合成的唑类药物和靶向细胞壁的棘白菌素类药物。在黄曲霉毒素生物合成方面,除参与毒素合成基因簇的基因外,若干调控因子也已被鉴定。海藻糖-6-磷酸合成酶(TPS1)作为代谢闸门,在酿酒酵母、格特隐球菌、禾谷镰刀菌和稻瘟病菌等真菌中已被证实不同程度地调控初级和/或次级代谢。然而,TPS1在黄曲霉形态建成和次级代谢中的多效性作用尚未明确。
研究方法
2.1 菌株与培养条件
黄曲霉(NRRL3357)在PDA培养基上培养。ΔpyrG菌株由中山大学何祖梅教授惠赠,在YG培养基上培养。YED培养基用于制备预萌发孢子。Czapek培养基用于突变体菌株筛选。PDA和YES培养基用于测定菌株生长速率,WKM培养基用于评估菌核产量。
【数据】菌株:黄曲霉NRRL3357、ΔpyrG;培养基:PDA、YG、YED、Czapek、YES、WKM;温度:原文未详述;时间:原文未详述
2.2 系统发育树构建与蛋白功能结构域分析
从美国国家生物技术信息中心(NCBI,https://www.ncbi.nlm.nih.gov/)获取黄曲霉TPS1(XP_002374913.1)以及白色念珠菌(KAL1579851.1)、棒曲霉(EAW06921.1)、稻瘟病菌(KAN0672291.1)、构巢曲霉(XP_663127.1)、禾谷镰刀菌(WXC66307.1)、黑曲霉(AAA21861.1)、粟酒裂殖酵母(CAB95998.1)、轮枝镰刀菌(AHC70672.1)、米曲霉(EIT79757.1)、烟曲霉(KAM0101565.1)和指状青霉(QQK46198.1)的蛋白序列。使用MEGA12(Mega Limited,奥克兰,新西兰)构建系统发育树。通过SMART(https://smart.embl.de/)分析蛋白功能结构域,并使用IBS2.0(IBS 2.0: Illustrator for Biological Sequences)进行可视化。使用AlphaFold3(https://alphafold3.org/)构建蛋白的三维结构模拟模型。
【数据】软件:MEGA12、SMART、IBS2.0、AlphaFold3;序列号:XP_002374913.1等;数据库:NCBI
2.3 TPS1基因缺失与回补菌株的构建
采用同源重组策略构建TPS1敲除突变体菌株ΔTPS1。将包含TPS1基因上下游同源臂和pyrG筛选标记的重组片段克隆到pUC57载体中(图S1A)。经Hind III单酶切线性化后,制备ΔpyrG萌发孢子,通过电穿孔将线性化重组载体导入受体细胞(Weidner et al., 1998)。采用同源重组策略构建TPS1敲除突变体菌株ΔTPS1。将包含TPS1基因上下游同源臂和pyrG筛选标记的重组片段克隆到pUC57载体中(图S1A)。经Hind III单酶切线性化后,制备ΔpyrG萌发孢子,通过电穿孔将线性化重组载体导入受体细胞(Weidner et al., 1998)。使用融合PCR组装包含全长TPS1序列、上下游同源侧翼以及pyrG和ptrA标记的回补构建体(图S1B)。电穿孔导入ΔTPS1孢子后,再次筛选回补菌株(TPS1C)。使用表S1中列出的特异性引物进行PCR扩增(图S1C&D)和测序,以验证构建成功。使用融合PCR组装包含全长TPS1序列、上下游同源侧翼以及pyrG和ptrA标记的回补构建体(图S1B)。电穿孔导入ΔTPS1孢子后,再次筛选回补菌株(TPS1C)。使用表S1中列出的特异性引物进行PCR扩增(图S1C&D)和测序,以验证构建成功。
【数据】载体:pUC57;限制性内切酶:Hind III;筛选标记:pyrG、ptrA;方法:同源重组、电穿孔、融合PCR;菌株:ΔTPS1、TPS1C
2.4 菌丝生长、分生孢子产生与菌核形成
将野生型(WT)、ΔTPS1和TPS1C的孢子悬液(每株系总数:10⁵)接种到含PDA和YES培养基的培养皿中心,在28 ± 2 °C下培养。第5天,打取5个菌饼(直径:9 mm)并计数产生的孢子。同时,将相同数量的孢子接种到WKM琼脂上,孵育7天。打取1 cm²的WKM琼脂块,人工计数菌核数量。
【数据】孢子数:10⁵;温度:28 ± 2 °C;时间:5天(PDA/YES)、7天(WKM);菌饼直径:9 mm;WKM琼脂块:1 cm²
2.5 孢子大小、孢子萌发和菌丝干重测定
通过光学显微镜(Leica Microsystems GmbH,德国)和ImageJ(v1.54,美国国立卫生研究院)定量孢子面积。孢子萌发(每孔20 μL 5 × 10⁵孢子/mL于150 μL PDB中)每2小时监测一次,持续12小时;当芽管长度等于孢子直径时,认为孢子已萌发。为评估菌丝干重,将250 μL孢子接种到50 mL PDB中培养(150 rpm,3天),然后收获、干燥(80 °C,24小时)并称重。
【数据】孢子浓度:5 × 10⁵孢子/mL;体积:20 μL孢子悬液 + 150 μL PDB;转速:150 rpm;时间:3天(培养)、12小时(萌发监测,每2小时一次)、24小时(干燥);温度:80 °C(干燥)
2.6 扫描电子显微镜(SEM)
SEM样品制备和表征方法基于本课题组先前的研究(Li et al., 2021a)。最终,使用Zeiss Sigma300显微镜(德国)观察孢子和菌丝。
【数据】仪器:Zeiss Sigma300;方法来源:Li et al., 2021a
2.7 胁迫实验
将孢子悬液(10⁵)接种到含有胁迫响应试剂的PDA培养基上,孵育3天。胁迫试剂包括渗透压胁迫试剂(1 M NaCl、1 M KCl)、氧化胁迫试剂(5 mM H₂O₂)和细胞壁胁迫试剂(80 μg/mL 卡尔科弗卢尔白(CFW)、200 μg/mL CR)。相对抑制率计算如下:相对抑制率 % = (d1 − d2)/d1,其中d1和d2分别为对照和处理菌落的直径。
【数据】孢子数:10⁵;时间:3天;试剂及浓度:1 M NaCl、1 M KCl、5 mM H₂O₂、80 μg/mL CFW、200 μg/mL CR;公式:相对抑制率 % = (d1 − d2)/d1
2.8 T6P和海藻糖含量测定
使用商业试剂盒(RF-W12976,Ruifan Biotechnology)测定T6P含量。海藻糖含量测定方法参照先前建立的方法并稍作修改(Dong et al., 2016)。冻干菌丝粉末用0.4 mol/L三氯乙酸提取,4000 rpm离心。稀释后的上清液与蒽酮-硫酸试剂反应,煮沸5分钟,冷却至室温。使用UV-6100S分光光度计在624 nm处检测吸光度。
【数据】试剂盒:RF-W12976;提取剂:0.4 mol/L三氯乙酸;离心:4000 rpm;煮沸:5分钟;检测波长:624 nm;仪器:UV-6100S分光光度计
2.9 CFW染色实验
使用CFW染料和10% KOH溶液对菌丝进行染色(Li et al., 2021a)。在抗淬灭封片剂的保护下,使用荧光显微镜(Leica Microsystems GmbH,德国)观察菌丝。
【数据】染色剂:CFW、10% KOH;仪器:荧光显微镜(Leica)
2.10 FT-IR和XPS分析
FT-IR和XPS分析按照已报道的方法进行(Li et al., 2021b)。将冻干菌丝粉末与KBr(1:100)混合并压片。以纯KBr为空白,使用Bruker ALPHA红外光谱仪分析样品。XPS分析在冻干菌丝粉末上进行。使用K-Alpha+光谱仪进行表面元素表征,并使用Avantage软件完成峰拟合。多糖、蛋白质和脂质含量根据先前方法计算(Dague et al., 2008)。
【数据】KBr比例:1:100;仪器:Bruker ALPHA红外光谱仪、K-Alpha+光谱仪;软件:Avantage;方法来源:Li et al., 2021b、Dague et al., 2008
2.11 β-1,3-葡聚糖和几丁质含量测定
β-1,3-葡聚糖测定参照Ko和Lin(2004)的方法,取15 μg菌丝用NaOH(1 M和6 M,80 °C,30分钟)提取并离心。上清液与亚甲蓝混合(52 °C 30分钟,然后避光30分钟),测定荧光强度(Ex: 398 nm,Em: 502 nm)。参照OuYang et al.(2019)的方法,将20 mg菌丝(W1)在饱和KOH中加热(180 °C,5小时),水洗、乙醇脱水并称重(W2)。几丁质(%)按(W2/W1) × 1.26 × 100计算(1.26 = GlcNAc/氨基葡萄糖转化因子)。
【数据】菌丝量:15 μg(β-1,3-葡聚糖)、20 mg(几丁质);NaOH浓度:1 M和6 M;温度:80 °C(提取)、52 °C(染色)、180 °C(几丁质);时间:30分钟(提取)、30分钟+30分钟(染色)、5小时(几丁质);荧光:Ex 398 nm/Em 502 nm;转化因子:1.26
2.12 AFB1含量测定
将250 μL孢子悬液(5 × 10⁵孢子/mL)接种到50 mL PDB培养基中,在150 rpm下培养1、3、5和7天。培养上清液与二氯甲烷按1:3体积比混合,涡旋,5000 rpm离心5分钟。收集下层有机相,氮气吹干,重新溶于1 mL流动相中。经0.22 μm膜过滤后,使用Agilent 1260 Infinity II系统通过HPLC分析样品。
【数据】孢子浓度:5 × 10⁵孢子/mL;体积:250 μL;培养基:50 mL PDB;转速:150 rpm;时间:1、3、5、7天;二氯甲烷比例:1:3;离心:5000 rpm,5分钟;滤膜:0.22 μm;仪器:Agilent 1260 Infinity II HPLC
2.13 致病性分析
将WT、ΔTPS1和TPS1C的孢子悬液(5 × 10⁵孢子/mL,10 μL)滴加到洋葱内表皮上。每12小时观察一次黄曲霉孢子萌发,持续48小时。花生和玉米在75%乙醇中浸泡5分钟,然后用无菌水洗涤三次。
【数据】孢子浓度:5 × 10⁵孢子/mL;体积:10 μL;乙醇浓度:75%;浸泡时间:5分钟;观察间隔:每12小时,持续48小时
研究结果
3.1 TPS1的生物信息学表征与分子对接分析
基于TPS1蛋白序列的最大似然系统发育树以粟酒裂殖酵母和白色念珠菌为根(图1A)。真菌分为两个主要分支(bootstrap = 94):一个由曲霉属和指状青霉组成,另一个由镰刀菌属和稻瘟病菌组成。米曲霉和烟曲霉形成一个完全支持的亚分支(bootstrap = 100)。尽管黄曲霉与黑曲霉和棒曲霉聚在一起,但该分支的bootstrap值仅为64,表明这些近缘种之间的分辨率较低。如图1B所示,其N端(1–440 aa)含有在多种真菌中高度保守的糖基转移酶结构域(Glyco_transf_20),该结构域对启动海藻糖生物合成至关重要。此外,分子对接表明TPS1在共享的催化口袋内结合其底物UDP-葡萄糖(UDPG)和6-磷酸葡萄糖(G6P)(图1C1、1C2)。这种相互作用主要由几个关键残基稳定:ARG-251和LYS-256通过盐桥为底物的磷酸基团提供关键的静电稳定,而ASP-350和HIS-143通过氢键促进底物的精确定位。
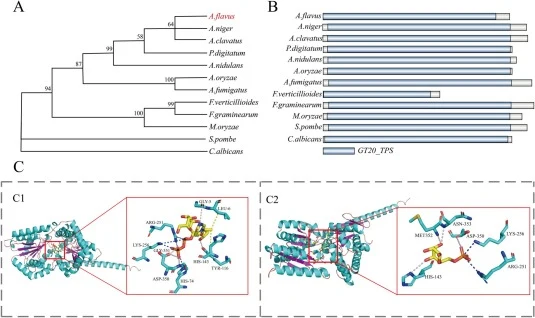
【数据】bootstrap值:94(主要分支)、100(米曲霉-烟曲霉亚分支)、64(黄曲霉-黑曲霉-棒曲霉分支);保守结构域:Glyco_transf_20;N端范围:1–440 aa;关键残基:ARG-251、LYS-256、ASP-350、HIS-143;底物:UDPG、G6P
3.2 TPS1缺失减小菌丝球直径但不影响黄曲霉整体生长
为研究TPS1对黄曲霉生长和发育的影响,记录了WT、ΔTPS1和TPS1C在PDA和YES培养基上的生长情况。5天内WT、ΔTPS1和TPS1C之间的菌落形态差异很小(图2A、C)。定量结果显示,ΔTPS1在两种培养基上的菌落直径与野生型和TPS1C相当(P > 0.05,图2B、D)。菌丝球的外观和形态如图2E所示。定量结果显示,尽管ΔTPS1菌丝球的平均直径远小于WT和TPS1C,但干重保持不变(P > 0.05)(图2F)。
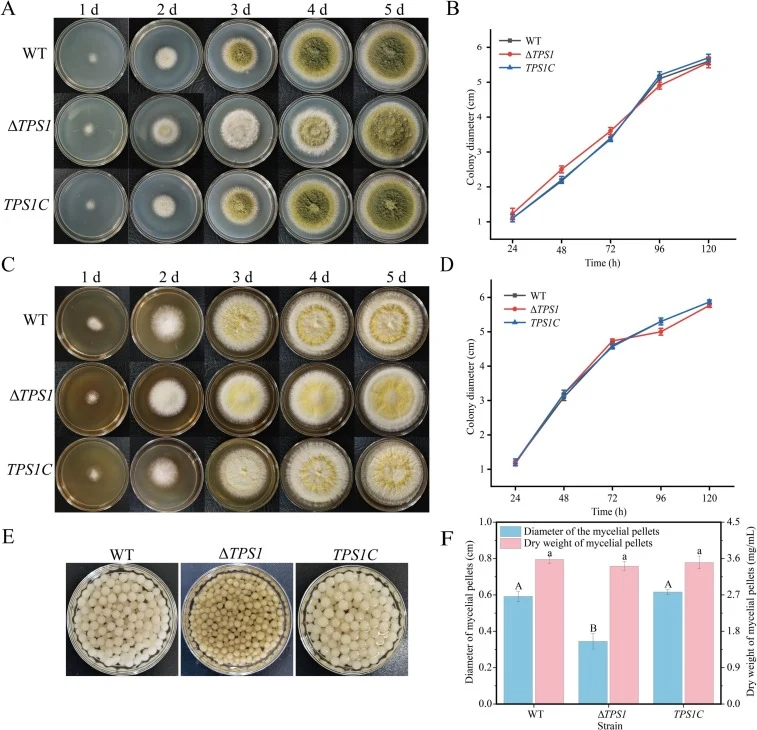
【数据】培养时间:5天;菌落直径:ΔTPS1与WT、TPS1C无显著差异(P > 0.05);菌丝球干重:无显著差异(P > 0.05);菌丝球直径:ΔTPS1显著小于WT和TPS1C
3.3 TPS1缺失不影响孢子超微结构和孢子萌发
为评估TPS1基因对黄曲霉孢子表面超微结构的影响,进行了SEM观察。如图3所示,WT孢子呈现正常典型的球形,表面有装饰。TPS1基因缺失并未显著改变孢子的完整性,仅表面粗糙度略有降低;TPS1C孢子与WT孢子无法区分。就孢子数量和面积而言,WT、ΔTPS1和TPS1C的孢子数量分别为(2.31 ± 0.02) × 10⁷、(2.23 ± 0.01) × 10⁷和(2.25 ± 2.54) × 10⁷(表S3)。WT、ΔTPS1和TPS1C的孢子面积分别为24.01 ± 0.63 μm²、23.01 ± 0.41 μm²和23.57 ± 0.89 μm²,三个菌株之间无显著差异(P > 0.05)(图S2)。为确定TPS1基因对孢子活力的影响,记录了萌发时间。如表1所示,6小时后,WT、ΔTPS1和TPS1C菌株的孢子均开始萌发,三个菌株之间未观察到显著差异(P > 0.05)。因此,结合孢子形态(图S3光学观察)、大小和萌发时间,TPS1基因的缺失不影响黄曲霉孢子的结构和活力。为评估TPS1基因对黄曲霉孢子表面超微结构的影响,进行了SEM观察。如图3所示,WT孢子呈现正常典型的球形,表面有装饰。TPS1基因缺失并未显著改变孢子的完整性,仅表面粗糙度略有降低;TPS1C孢子与WT孢子无法区分。就孢子数量和面积而言,WT、ΔTPS1和TPS1C的孢子数量分别为(2.31 ± 0.02) × 10⁷、(2.23 ± 0.01) × 10⁷和(2.25 ± 2.54) × 10⁷(表S3)。WT、ΔTPS1和TPS1C的孢子面积分别为24.01 ± 0.63 μm²、23.01 ± 0.41 μm²和23.57 ± 0.89 μm²,三个菌株之间无显著差异(P > 0.05)(图S2)。为确定TPS1基因对孢子活力的影响,记录了萌发时间。如表1所示,6小时后,WT、ΔTPS1和TPS1C菌株的孢子均开始萌发,三个菌株之间未观察到显著差异(P > 0.05)。因此,结合孢子形态(图S3光学观察)、大小和萌发时间,TPS1基因的缺失不影响黄曲霉孢子的结构和活力。
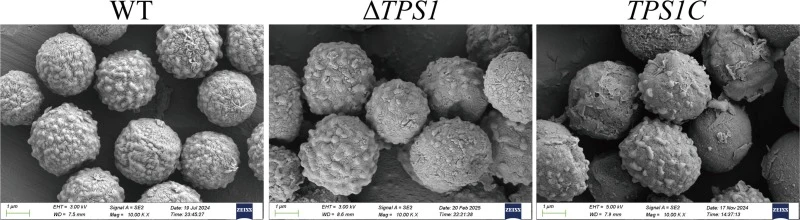
【数据】孢子数量:WT (2.31 ± 0.02) × 10⁷,ΔTPS1 (2.23 ± 0.01) × 10⁷,TPS1C (2.25 ± 2.54) × 10⁷;孢子面积:WT 24.01 ± 0.63 μm²,ΔTPS1 23.01 ± 0.41 μm²,TPS1C 23.57 ± 0.89 μm²;萌发时间:6小时;显著性:P > 0.05
3.4 TPS1缺失降低T6P和海藻糖含量
为研究TPS1基因对海藻糖合成的影响,测定了T6P和海藻糖的含量。如图4A所示,WT、ΔTPS1和TPS1C菌株中T6P含量分别为8.24 ± 0.22、3.24 ± 0.59和8.28 ± 0.23 nmol/g。如图4B所示,WT、ΔTPS1和TPS1C菌株中海藻糖含量分别为37.11 ± 1.80、6.17 ± 1.09和37.04 ± 0.73 nmol/g。与野生型相比,ΔTPS1菌株中T6P含量和海藻糖含量分别显著降低约61%和83%(P < 0.05)。
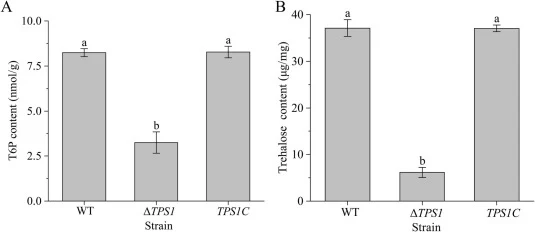
【数据】T6P含量:WT 8.24 ± 0.22 nmol/g,ΔTPS1 3.24 ± 0.59 nmol/g,TPS1C 8.28 ± 0.23 nmol/g;海藻糖含量:WT 37.11 ± 1.80 nmol/g,ΔTPS1 6.17 ± 1.09 nmol/g,TPS1C 37.04 ± 0.73 nmol/g;降低幅度:T6P约61%,海藻糖约83%;显著性:P < 0.05
3.5 ΔTPS1对CFW和热胁迫敏感
为研究TPS1基因对环境胁迫的影响,施加了多种胁迫因子并评估了菌株生长。如图5A所示,在添加1 M NaCl、1 M KCl、5 mM H₂O₂或200 μg/mL CR的PDA培养基上,WT、ΔTPS1和TPS1C菌株之间形态差异很小。然而,ΔTPS1对CFW和热休克敏感,表现为菌落较小。具体而言,ΔTPS1在CFW和热休克下的抑制率分别为45.24 ± 2.38%和80.16 ± 1.37%(图5B)。
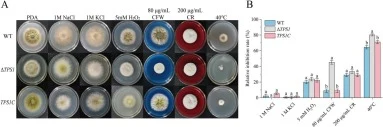
【数据】胁迫试剂:1 M NaCl、1 M KCl、5 mM H₂O₂、200 μg/mL CR、CFW;抑制率:CFW 45.24 ± 2.38%,热休克80.16 ± 1.37%
3.6 TPS1缺失改变细胞壁完整性和组成
由于ΔTPS1对CFW敏感,我们推测该突变体的细胞壁完整性受损。有趣的是,SEM图像(图6A)显示WT菌丝呈现有序、均匀粗壮的丝状体,表面装饰一致。ΔTPS1和TPS1C菌丝外观与WT相似。表面功能基团及其组成也是展示外细胞壁的有趣方面。在FT-IR表征中(图6B),3570至3200 cm⁻¹范围内的峰代表羟基伸缩振动,2925 cm⁻¹处出现CH₃的伸缩振动信号,1700–1500 cm⁻¹波段对应酰胺I和酰胺II带。1480–1180 cm⁻¹范围内的峰对应脂肪酸中甲基和亚甲基的振动,1077 cm⁻¹处的峰代表C-O/C-C基团的伸缩振动。结果表明,ΔTPS1在-OH带和酰胺带有轻微振动,振动幅度在10至20之间,而其他波段无显著变化,表明TPS1基因可能改变了黄曲霉菌丝表面的羟基和酰胺基团。为进一步分析外细胞壁的主要成分,采用了XPS(图6C,图S5)。与WT相比,ΔTPS1光谱显示C1s强度降低,但N1s和O1s强度增加。相应地,定量结果(表2)显示,ΔTPS1中蛋白质和多糖含量分别增加21.96%和23.43%,而脂质含量降低11.59%。由于ΔTPS1对CFW敏感,我们推测该突变体的细胞壁完整性受损。有趣的是,SEM图像(图6A)显示WT菌丝呈现有序、均匀粗壮的丝状体,表面装饰一致。ΔTPS1和TPS1C菌丝外观与WT相似。表面功能基团及其组成也是展示外细胞壁的有趣方面。
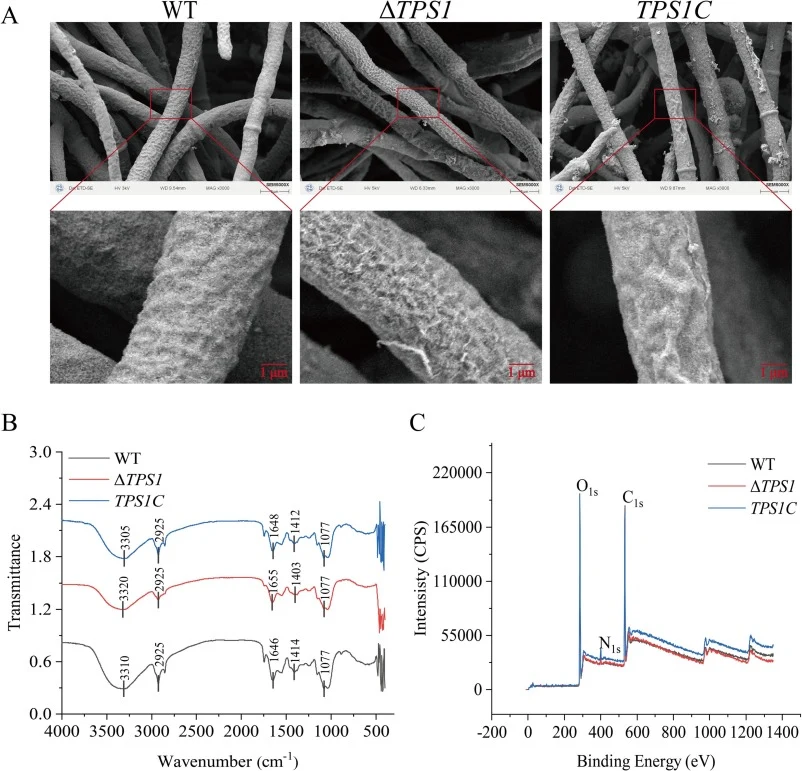
【数据】FT-IR峰:3570–3200 cm⁻¹(-OH)、2925 cm⁻¹(CH₃)、1700–1500 cm⁻¹(酰胺I/II)、1480–1180 cm⁻¹(甲基/亚甲基)、1077 cm⁻¹(C-O/C-C);振动幅度:10–20;XPS变化:C1s降低,N1s和O1s增加;蛋白质增加:21.96%;多糖增加:23.43%;脂质降低:11.59%
3.7 细胞壁完整性与组成评估
CFW染色显示,WT菌丝隔膜分布正常。ΔTPS1菌丝显示异常隔膜分布(图7A箭头)。定量分析显示,ΔTPS1中β-1,3-葡聚糖和几丁质含量均显著降低(P < 0.05)(图7B、C)。
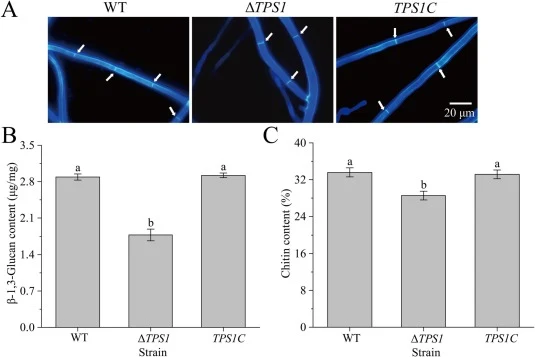
【数据】β-1,3-葡聚糖含量:ΔTPS1显著降低(P < 0.05);几丁质含量:ΔTPS1显著降低(P < 0.05);染色:CFW;隔膜分布:ΔTPS1异常
3.8 菌核产量
如图8所示,WT和TPS1C在WKM培养基上产生大量菌核,而ΔTPS1完全丧失产生菌核的能力。
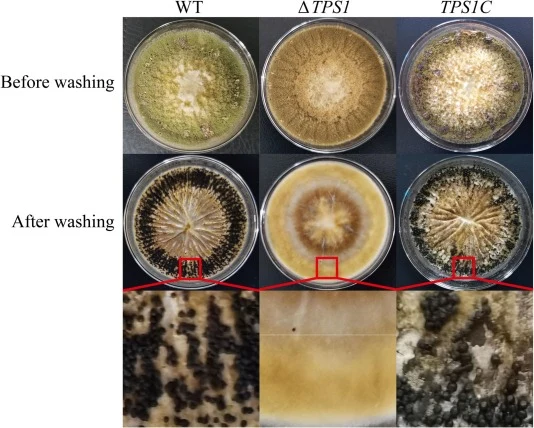
【数据】培养基:WKM;菌核产量:WT和TPS1C大量产生,ΔTPS1完全丧失
3.9 AFB1产量
如图9A所示,在PDB培养基中,WT和TPS1C的AFB1产量在24、48、72和96小时逐渐增加,而ΔTPS1的AFB1产量显著降低(P < 0.05)。在米饭培养基上培养3天后,ΔTPS1的菌落形态与WT和TPS1C相似(图9B),但AFB1产量显著降低(图9C)。
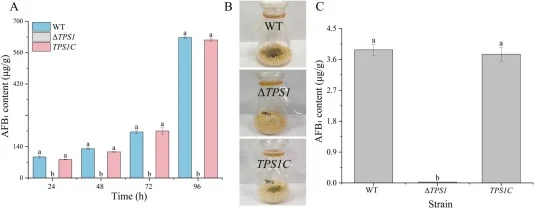
【数据】时间点:24、48、72、96小时(PDB)、3天(米饭);AFB1产量:ΔTPS1显著低于WT和TPS1C(P < 0.05)
3.10 宿主基质上的致病性
如图10所示,在洋葱表皮(图10A)、花生种子(图10B)和玉米粒(图10C)上,ΔTPS1的感染能力显著减弱。ΔTPS1在花生种子和玉米粒上的孢子数量(图10D、F)以及AFB1含量(图10E、G)均显著低于WT和TPS1C。
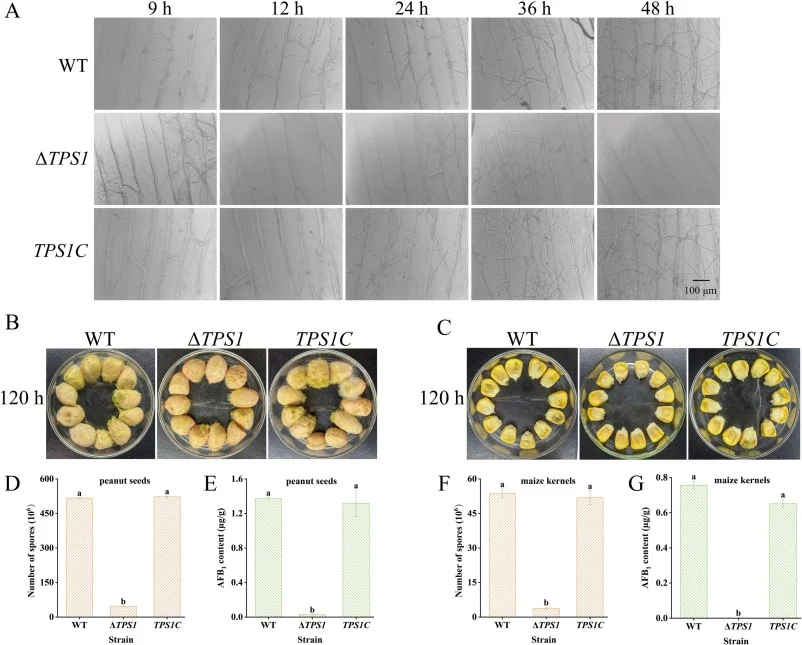
【数据】宿主:洋葱表皮、花生种子、玉米粒;孢子数量:ΔTPS1显著低于WT和TPS1C;AFB1含量:ΔTPS1显著低于WT和TPS1C
3.11 转录组分析
ΔTPS1中差异表达基因(DEGs)的火山图如图11A所示,红点代表上调DEGs,绿点代表下调DEGs,灰点代表表达无显著变化的基因。前20个差异表达基因的KEGG通路分类如图11B和11C所示。功能分类如图11D所示。
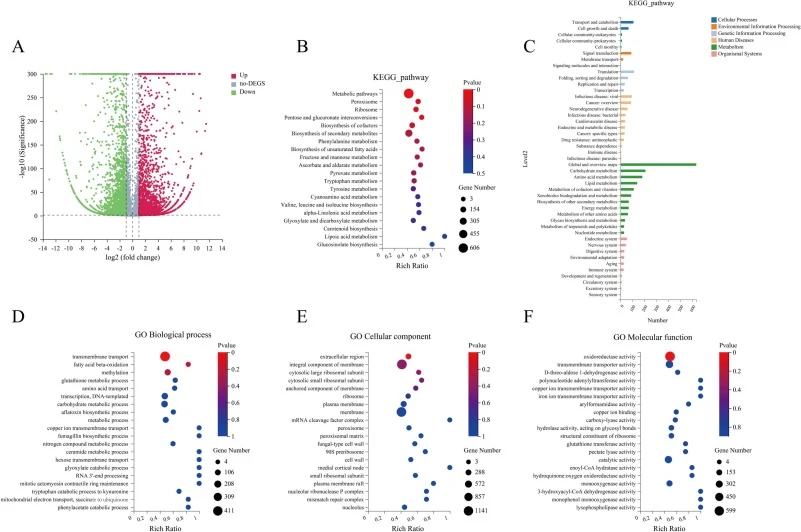
【数据】DEGs:红点(上调)、绿点(下调)、灰点(无显著变化);KEGG:前20个DEGs分类;功能分类:图11D
3.12 黄曲霉毒素生物合成基因簇基因表达谱
如图12所示,ΔTPS1突变体中黄曲霉毒素生物合成基因簇基因的相对表达谱显示,23个基因的转录水平下调。Break: -12。P < 0.05,P < 0.01,P < 0.001。
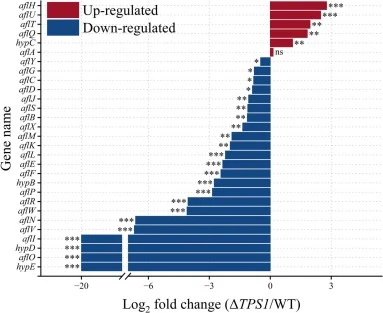
【数据】下调基因数:23个;Break值:-12;显著性:P < 0.05,P < 0.01,P < 0.001
讨论与解读
对于黄曲霉等重要食源性真菌病原体,控制生长、发育、毒力和黄曲霉毒素生物合成的基因的分子表征是食品和饲料安全研究的重点。已知酿酒酵母、格特隐球菌、禾谷镰刀菌和稻瘟病菌等真菌中的TPS基因不同程度地调控初级和/或次级代谢。因此,阐明TPS1基因及其信号网络在黄曲霉中的功能作用,对于理解抗真菌和抗黄曲霉毒素机制至关重要,可能促进新型抗真菌药物的开发。除系统发育树分析外,蛋白序列比对分析揭示了不同物种间高度保守的结构域(图1),证实了黄曲霉TPS1在转移糖基中的催化作用。黄曲霉TPS1蛋白与其烟曲霉同源物之间观察到的高序列一致性,尤其是在催化核心结构域内(图S6),表明这两种致病性曲霉物种间具有高度保守的催化机制。在烟曲霉同源物已解析晶体结构的指导下,分子对接分析(图1C)得出假设:黄曲霉TPS1采用与烟曲霉相同的催化机制。
编译者解读:本研究以TPS1为切入点,通过基因敲除与多组学整合,清晰勾勒出"T6P/海藻糖代谢→细胞壁完整性→黄曲霉毒素合成"的调控链条。方法上,同源重组敲除结合回补验证严谨可靠,转录组与代谢组的联合分析为碳代谢重编程提供了系统证据。局限在于,TPS1下游信号传导的具体分子机制尚未完全解析,且未在田间条件下验证突变体的控毒效果。未来可探索TPS1作为抗真菌靶点的可行性,或通过调控碳代谢流实现毒素减排。
参考来源
期刊:International Journal of Food Microbiology, 2026
DOI: 10.1016/j.ijfoodmicro.2026.111956
DOI: 10.1016/j.ijfoodmicro.2026.111956