来源:Transporters govern weak acid adaptation, ochratoxin a biosynthesis, and host colonization in aspergillus westerdijkiae(Food Research International)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
赭曲霉毒素A(OTA)是2B类致癌物,而弱酸类防腐剂对其产生菌——西曲霉(Aspergillus westerdijkiae)的抑菌机制长期不明。本研究通过苯甲酸胁迫下的转录组分析,锁定三个膜转运蛋白AwPat1、AwMfs1和AwAap1,逐一敲除后发现:AwPat1与AwAap1同时控制菌丝形态、产孢、菌核发育与胁迫耐受,而AwMfs1仅在酸性条件下暴露功能缺陷。三种转运蛋白缺失均大幅削减OTA产量并削弱宿主定殖能力,为提升防腐剂效力提供了可操作的分子靶点。
研究背景
真菌性腐败与霉菌毒素污染每年造成全球超过100亿美元损失。传统杀菌剂因环境毒性和真菌抗性而效力持续下降。在众多霉菌毒素中,OTA作为2B类人类致癌物,因肾毒性成为咖啡和谷物等商品的主要危害。分子系统发育学分析校正了历史认知——通过钙调蛋白和β-微管蛋白位点分析,研究人员厘清了隐存种复合体,证实西曲霉是Circumdati组中OTA的主要产生菌,而非此前认为的赭曲霉。这一分类学修正使西曲霉成为控制食品安全中霉菌毒素威胁的核心靶标。西曲霉耐受广泛的环境条件,能定殖多种基质,其强弱酸耐受性使其成为研究真菌酸抗性的理想对象。在咖啡和谷物等富碳水化合物商品中,OTA最大产量出现在约30°C和0.95水活度条件下。然而,真菌耐受弱酸防腐剂的机制,尤其是膜转运蛋白的作用,至今了解甚少。
研究方法
2.1 菌株与生长条件
本研究所用全部真菌菌株列于表1。西曲霉ΔKu70因具有高同源重组效率而被用作野生型(WT)菌株。所有菌株保存于含33%(v/v)甘油的马铃薯葡萄糖肉汤(PDB)冻存管中,置于−80°C。菌株接种至马铃薯葡萄糖琼脂(PDA)平板,28°C培养7天进行活化。通过加入0.05%(v/v)Tween 80水溶液并轻刮培养物表面收获孢子。所得孢子悬液经无菌滤布过滤以去除菌丝。使用血细胞计数板测定孢子浓度,并调整至10⁷孢子/mL用于保存和后续使用。
【数据】菌株:西曲霉ΔKu70(WT);保存温度:−80°C;甘油浓度:33%(v/v);培养基:PDB、PDA;活化温度:28°C;活化时间:7天;Tween 80浓度:0.05%(v/v);孢子浓度:10⁷孢子/mL
2.2 弱酸胁迫实验
制备含苯甲酸和丙酸的YES(酵母提取物蔗糖)固体培养基,浓度分别为1 mM和2 mM。将3 μL WT及各基因缺失突变体的孢子悬液接种至相应平板中心。接种平板于28°C黑暗条件下静置培养9天。培养结束后,测量菌落直径并观察表型。
【数据】弱酸种类:苯甲酸、丙酸;浓度:1 mM、2 mM;接种量:3 μL;培养基:YES固体;温度:28°C;时间:9天;光照:黑暗;检测指标:菌落直径、表型
2.3 转录组分析
从WT菌株的三个独立生物学重复(n = 3)中提取总RNA,该菌株分别在标准YES固体培养基或添加2 mM苯甲酸的YES培养基上培养9天。使用RNAsimple总RNA试剂盒(天根生化,北京,中国)按制造商方案提取总RNA。RNA样品先经凝胶电泳检查,再使用NanoDrop 2000分光光度计(Thermo Fisher Scientific,Waltham,MA,美国)测定浓度和纯度(OD260/OD280)。此外,使用Agilent 2100 Bioanalyzer(Agilent Technologies,Santa Clara,CA,美国)评估RNA完整性。转录组测序分析流程如下:使用Oligo(dT)磁珠从总RNA中富集poly(A)+ mRNA,片段化后构建链特异性文库。质控后,合并文库在Illumina平台(诺禾致源,北京,中国)测序,产生150 bp双端读长(约2000万读长/样品)。质控合格后,文库合并并在Illumina平台测序产生双端读长。原始读长经处理去除低质量序列,所得clean reads使用HISAT2比对至参考基因组。比对后,基因表达水平以FPKM定量。差异表达基因(DEGs)初步使用DESeq2以标准阈值(|Log2FC| > 1.0且padj < 0.05)鉴定。该DEG集随后使用clusterProfiler R包进行KEGG和GO富集分析。为筛选用于基因敲除的核心转运蛋白,采用更严格的标准(baseMean > 9.0,|Log2FC| > 2.0,padj < 0.01)。
【数据】生物学重复:n = 3;苯甲酸浓度:2 mM;培养时间:9天;培养基:YES固体;RNA提取试剂盒:RNAsimple Total RNA Kit;纯度检测:OD260/OD280(NanoDrop 2000);完整性检测:Agilent 2100 Bioanalyzer;测序平台:Illumina;读长:150 bp双端;数据量:约2000万读长/样品;比对工具:HISAT2;定量方法:FPKM;DEG阈值:|Log2FC| > 1.0,padj < 0.05;核心转运蛋白筛选阈值:baseMean > 9.0,|Log2FC| > 2.0,padj < 0.01
2.4 敲除盒构建
基因敲除盒通过连续三轮PCR构建。第一轮,以质粒模板和引物hyg-F/hyg-R扩增潮霉素抗性基因。同时,使用表2所列引物从WT西曲霉基因组DNA扩增三个靶基因的上游和下游同源臂。上游臂的反向引物和下游臂的正向引物设计为包含与抗性标记末端20–40 bp的重叠序列。所得PCR产物经纯化、定量后,以1:3:1摩尔比(上游臂:标记:下游臂)混合进行融合PCR。第二轮产物随后作为第三轮PCR的模板,使用巢式引物在25 μL反应体系中扩增完整敲除盒。最终产物经纯化、定量后保存于−20°C。补充图S1a概述了敲除盒的构建流程。
【数据】PCR轮次:3轮;抗性标记:潮霉素抗性基因(hyg);重叠序列长度:20–40 bp;摩尔比:上游臂:标记:下游臂 = 1:3:1;第三轮PCR体系:25 μL;保存温度:−20°C
2.5 原生质体制备与转化
原生质体制备及后续PEG介导转化参照Wang等人的方法进行。酶解液通过将0.4 g蜗牛酶(Solarbio,北京,中国)、0.4 g溶菌酶(Solarbio,北京,中国)和0.4 g纤维素酶(生工生物,上海,中国)溶解于20 mL 0.7 M NaCl中制备,随后经0.22 μm滤膜过滤。将孢子加入酶解液,于28°C、100 rpm振荡水解4小时。从第3小时开始,每15分钟在显微镜下观察一次,直至原生质体呈现新月形形态。以下所有步骤均在冰上操作:混合物经滤布过滤、漂洗,于4°C、5000 rpm离心15分钟。所得沉淀重悬于山梨醇-Tris-CaCl₂缓冲液(STC)中,再次离心,最终悬浮于400 μL STC中保存。转化步骤中,将10 μL DNA与100 μL原生质体混合(对照组CK不加DNA),冰上孵育50分钟。随后加入1.2 mL PEG,室温静置30分钟。用STC将总体积调整至6 mL后,涂布于含潮霉素的培养基上,28°C黑暗培养3–7天。出现的转化子用于进一步鉴定。
【数据】蜗牛酶:0.4 g;溶菌酶:0.4 g;纤维素酶:0.4 g;NaCl浓度:0.7 M;酶解液体积:20 mL;滤膜孔径:0.22 μm;酶解温度:28°C;转速:100 rpm;酶解时间:4 h;观察间隔:15 min(从第3小时起);离心条件:4°C,5000 rpm,15 min;STC体积:400 μL;DNA用量:10 μL;原生质体用量:100 μL;冰上孵育:50 min;PEG体积:1.2 mL;室温静置:30 min;总体积:6 mL;培养温度:28°C;培养时间:3–7天;光照:黑暗
2.6 分生孢子与菌核定量
菌核产量在Wickerham培养基(WKM)平板上定量。每个平板中心点接种3 μL孢子悬液(1 × 10⁷ CFU/mL),28°C黑暗培养7天。为去除营养菌丝和分生孢子,用75%乙醇冲洗平板表面。对剩余菌核进行计数。
【数据】培养基:WKM;接种量:3 μL;孢子浓度:1 × 10⁷ CFU/mL;温度:28°C;时间:7天;光照:黑暗;冲洗试剂:75%乙醇;检测指标:菌核数量
2.7 菌丝形态观察
通过扫描电子显微镜(SEM)检查菌丝形态。将无菌盖玻片斜插入PDA平板,靠近WT和突变体接种点。平板于28°C培养至菌丝定殖玻璃表面。随后取出盖玻片,浸入固定液24小时,用导电胶粘贴至样品台并成像。
【数据】显微镜:SEM;培养基:PDA;温度:28°C;固定时间:24 h;检测指标:菌丝形态
2.8 弱酸胁迫对西曲霉及其突变体致病性的影响
选择对西曲霉高度敏感的‘巨峰’葡萄评估弱酸处理后的突变体侵染力。通过切割果梗收获成熟度80–90%的均匀浆果。同时使用梨进行标准致病性实验。梨组织均匀,可进行一致的伤口接种和精确的病斑测量。梨细胞壁的高果胶含量也为评估突变体的酶降解能力提供了合适底物。选择高度敏感的高粱籽粒评估处理后的突变体侵染力。从切除的圆锥花序上收获软面团期(80–90%成熟度)的均匀籽粒,用于标准体外致病性实验。其均匀胚乳允许一致的接种和精确的病斑测量。葡萄和梨用75%乙醇表面消毒,在生物安全柜中风干。每处理三颗果实,用苯甲酸或丙酸溶液(0–2 mM)喷洒三次。干燥后的果实使用无菌牙签刺伤至2 mm深度,接种2 μL孢子悬液,置于铺有湿润无菌滤纸的密封容器中28°C培养。
【数据】葡萄品种:‘巨峰’;成熟度:80–90%;梨:用于标准致病性实验;高粱:软面团期(80–90%成熟度);表面消毒:75%乙醇;每处理果实数:3颗;喷洒次数:3次;酸浓度:0–2 mM;伤口深度:2 mm;接种量:2 μL孢子悬液;培养温度:28°C
研究结果
3.1 西曲霉对酸胁迫的转录组响应
我们对WT西曲霉在2 mM苯甲酸和正常条件下培养的转录组进行测序,以鉴定降低防腐剂效力的机制。我们在两种条件间鉴定到1745个DEGs(864个上调,881个下调)(图1a)。功能注释揭示122个与转运相关的差异表达基因,反映了苯甲酸胁迫下膜转运动态的改变(图1b)。其他改变的途径包括氨基酸生物合成、嘌呤代谢、氧化还原稳态和转录调控(图1c, d)。我们使用严格阈值(baseMean > 9.0,|Log2FC| > 2.0,padj < 0.01)从1745个DEGs中筛选参与酸胁迫适应的核心转运蛋白。筛选过程中,我们排除了推定未表征的跨膜蛋白,因其系统发育分布狭窄或缺乏明确的功能直系同源物。外周微量营养素转运蛋白和基础碳载体也被移除。剩余候选者在曲霉属中高度保守,可能对基本生存至关重要。该筛选鉴定出属于APC和MFS超家族的两个核心转运蛋白:多胺转运蛋白AoFC_00132(命名为AwPat1)、主要易化子超家族(MFS)转运蛋白AoFC_02142(命名为AwMfs1),以及氨基酸透性酶AoFC_05975(命名为AwAap1)。苯甲酸胁迫诱导这些基因的表达,倍数分别为90倍、13倍和11倍。我们选择这三个转运蛋白构建独立的基因缺失菌株。
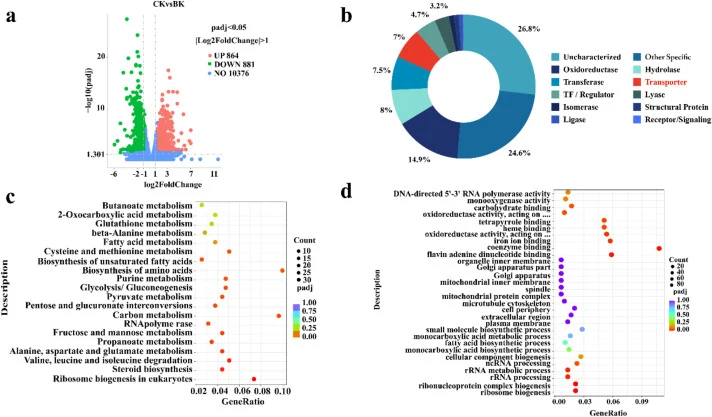
【数据】苯甲酸浓度:2 mM;DEG总数:1745个;上调:864个;下调:881个;转运相关DEGs:122个;筛选阈值:baseMean > 9.0,|Log2FC| > 2.0,padj < 0.01;AwPat1诱导倍数:90倍;AwMfs1诱导倍数:13倍;AwAap1诱导倍数:11倍
3.2 基因敲除突变体的构建与鉴定
基因缺失盒使用双接头PCR方法构建。第一轮PCR中,分别扩增5′侧翼区域(上游臂,1505–1589 bp)、3′侧翼区域(下游臂,1455–1596 bp)和潮霉素抗性标记(hyg,1349 bp)。这些片段在第二轮PCR中组装,产生线性敲除盒。AwPat1、AwMfs1和AwAap1的缺失盒最终大小分别为4308 bp、4247 bp和4318 bp,与预期大小一致。基因敲除盒通过PEG介导的原生质体转化导入西曲霉。推定转化子通过诊断PCR使用三组引物筛选以验证同源重组:基因特异性引物组(KO),以及两组靶向上游(P2)和下游(P3)跨越hyg标记的重组连接引物。该引物配置中,一个引物位于天然基因组,另一个位于选择标记内,可验证靶向整合。图2a-c展示了AwPat1(909 bp)、AwMfs1(1174 bp)和AwAap1(1434 bp)突变体的验证。如预期,WT菌株仅扩增靶基因片段(泳道1),侧翼重组位点无产物(泳道5和9)。相反,所选转化子显示出所需的整合条带(P2在泳道6–8;P3在泳道10–12),且缺乏靶基因扩增产物(泳道2–4),确认天然基因被选择标记成功替换(图2a-c)。通过连接PCR产物的Sanger测序确认了靶向位点的精确整合。
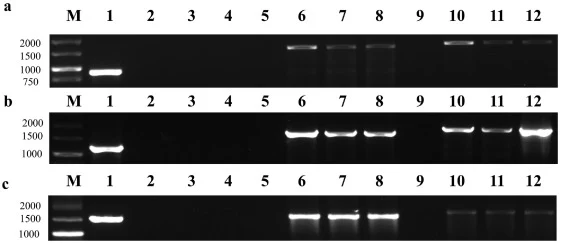
【数据】上游臂长度:1505–1589 bp;下游臂长度:1455–1596 bp;hyg标记长度:1349 bp;AwPat1敲除盒大小:4308 bp;AwMfs1敲除盒大小:4247 bp;AwAap1敲除盒大小:4318 bp;AwPat1验证片段:909 bp;AwMfs1验证片段:1174 bp;AwAap1验证片段:1434 bp;转化方法:PEG介导原生质体转化;验证方法:诊断PCR、Sanger测序
3.3 三个转运蛋白影响西曲霉的生长与发育
与WT相比,ΔAwPat1和ΔAwAap1突变体在YES和PDA培养基上营养生长减少(P < 0.05)(图3a, b)。在YES培养基上,ΔAwPat1和ΔAwAap1的菌落直径显著减小至72.7 mm(P < 0.05),而WT为81.1 mm。ΔAwMfs1菌株维持与WT相似的生长(76.8 mm)(图3b)。在PDA培养基上,ΔAwPat1菌落直径为54.4 mm,ΔAwAap1为52.9 mm,ΔAwMfs1为55.2 mm,WT为56.5 mm(图3b)。ΔAwPat1(2.0 × 10⁸分生孢子/cm²,P < 0.01)和ΔAwAap1(2.4 × 10⁸分生孢子/cm²,P < 0.05)的产孢量低于WT(2.93 × 10⁸分生孢子/cm²)(图3c)。ΔAwPat1和ΔAwAap1菌株的菌核发育受损。在WKM琼脂上,ΔAwAap1未能形成WT典型的紧密黑色菌核。相反,该突变体积累败育的色素化原基,几乎没有功能性繁殖体(图3d)。菌核产量从WT平均3742个降至ΔAwPat1的2917个和ΔAwAap1的3050个(图3e)。SEM分析确认ΔAwPat1和ΔAwAap1突变体的超微结构缺陷。WT和ΔAwMfs1菌株具有光滑的圆柱形菌丝,而ΔAwPat1和ΔAwAap1菌丝变形,表面塌陷、皱缩和起皱(图3f)。
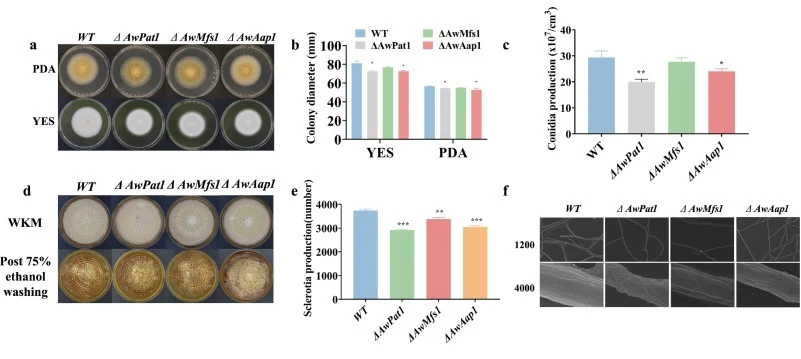
【数据】YES培养基菌落直径:WT 81.1 mm,ΔAwPat1/ΔAwAap1 72.7 mm(P < 0.05),ΔAwMfs1 76.8 mm;PDA培养基菌落直径:WT 56.5 mm,ΔAwPat1 54.4 mm,ΔAwAap1 52.9 mm,ΔAwMfs1 55.2 mm;产孢量:WT 2.93 × 10⁸/cm²,ΔAwPat1 2.0 × 10⁸/cm²(P < 0.01),ΔAwAap1 2.4 × 10⁸/cm²(P < 0.05);菌核产量:WT 3742个,ΔAwPat1 2917个,ΔAwAap1 3050个;培养基:YES、PDA、WKM
3.4 转运蛋白基因缺失导致酸抗性和产毒能力下降
在含弱酸培养基上评估突变体生长,以确定这些转运蛋白在酸适应中的作用。苯甲酸以浓度依赖方式抑制所有菌株。在1.0 mM时,三个突变体的径向生长(63.4–67.4 mm)较WT(79.1 ± 0.4 mm)显著减少。这种敏感性与形态改变同时出现,特别是ΔAwPat1和ΔAwMfs1的菌落边缘呈锯齿状。在2.0 mM时,生长受抑更严重;突变体菌落直径降至56.7–61.1 mm,而WT维持72.0 ± 1.6 mm。这些结果确认这些转运蛋白的缺失使西曲霉对苯甲酸敏感(图4a, b)。丙酸比苯甲酸毒性更强。在1.0 mM时,ΔAwPat1生长严重受损。相反,ΔAwAap1和ΔAwMfs1耐受该条件,菌落直径(40.2 ± 1.0 mm和39.2 ± 0.4 mm)与WT(42.5 ± 1.0 mm)相当。在2.0 mM时,三个突变体生长均严重受限;菌落直径降至3.6–6.3 mm,较WT(16.0 ± 2.0 mm)下降约70%(图4c, d)。HPLC分析显示,WT菌株在对照条件下积累12,000 ± 550 ng/mL OTA,而所有缺失突变体产量显著受损。ΔAwPat1中下降最明显,OTA产量降至3650 ± 200 ng/mL,较WT下降约70%(图4e)。弱酸胁迫进一步抑制OTA生物合成。在1.0 mM苯甲酸下,WT的OTA水平为10,216 ± 804 ng/mL,ΔAwPat1为1928 ± 94 ng/mL。在2.0 mM苯甲酸下,WT产量降至4650 ± 203 ng/mL,ΔAwPat1为1000 ± 58 ng/mL(图4e)。丙酸对产毒的抑制更强。在1.0 mM丙酸下,WT产量降至2631 ± 171 ng/mL,而ΔAwMfs1仅产生309 ± 43 ng/mL。在2.0 mM丙酸下,ΔAwMfs1和ΔAwPat1中OTA均不可检测,而WT维持665 ± 91 ng/mL的产量(图4f)。
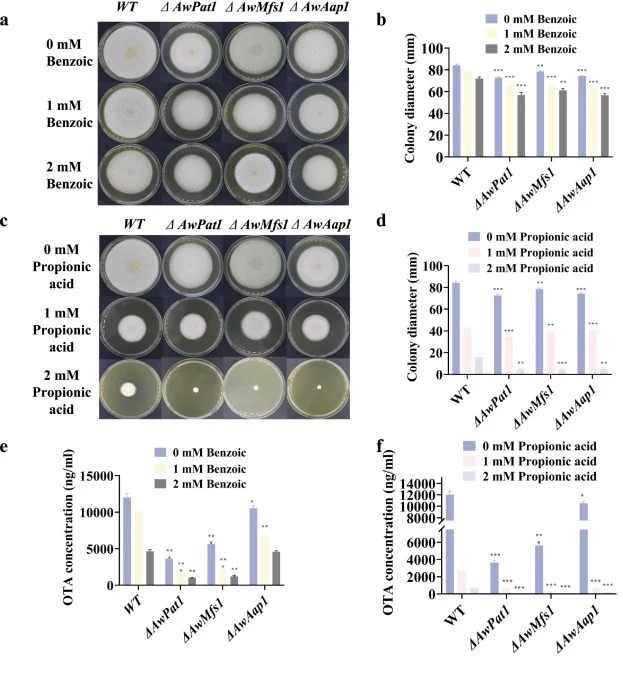
【数据】苯甲酸1.0 mM菌落直径:WT 79.1 ± 0.4 mm,突变体63.4–67.4 mm;苯甲酸2.0 mM:WT 72.0 ± 1.6 mm,突变体56.7–61.1 mm;丙酸1.0 mM:WT 42.5 ± 1.0 mm,ΔAwAap1 40.2 ± 1.0 mm,ΔAwMfs1 39.2 ± 0.4 mm;丙酸2.0 mM:WT 16.0 ± 2.0 mm,突变体3.6–6.3 mm(下降约70%);对照OTA:WT 12,000 ± 550 ng/mL,ΔAwPat1 3650 ± 200 ng/mL(下降约70%);苯甲酸1.0 mM OTA:WT 10,216 ± 804 ng/mL,ΔAwPat1 1928 ± 94 ng/mL;苯甲酸2.0 mM OTA:WT 4650 ± 203 ng/mL,ΔAwPat1 1000 ± 58 ng/mL;丙酸1.0 mM OTA:WT 2631 ± 171 ng/mL,ΔAwMfs1 309 ± 43 ng/mL;丙酸2.0 mM OTA:WT 665 ± 91 ng/mL,ΔAwMfs1和ΔAwPat1不可检测;检测方法:HPLC
3.5 三个转运蛋白影响弱酸条件下西曲霉的致病性
在葡萄、梨和高粱上的体内侵染实验表明,这些转运蛋白是西曲霉完全致病性所必需的。在未处理葡萄上,WT病斑为7.0 ± 0.2 mm。ΔAwAap1(5.1 ± 0.1 mm)和ΔAwMfs1(5.4 ± 0.3 mm)病斑直径显著更小(P < 0.001),而ΔAwPat1病斑与WT相当(图5a)。暴露于2.0 mM弱酸进一步损害定殖。苯甲酸将WT病斑减至5.2 ± 0.2 mm,但对突变体造成不成比例的抑制;ΔAwPat1病斑直径降至4.2 ± 0.2 mm(P < 0.01),ΔAwAap1降至3.3 ± 0.1 mm(P < 0.001)(图5b)。类似地,在2.0 mM丙酸下,WT病斑为3.1 ± 0.1 mm,而突变体定殖受抑更严重(ΔAwAap1为2.7 ± 0.2 mm,P < 0.05)(图5c)。梨上的侵染实验给出一致结果。在未处理梨上,WT病斑为31.5 ± 0.7 mm。
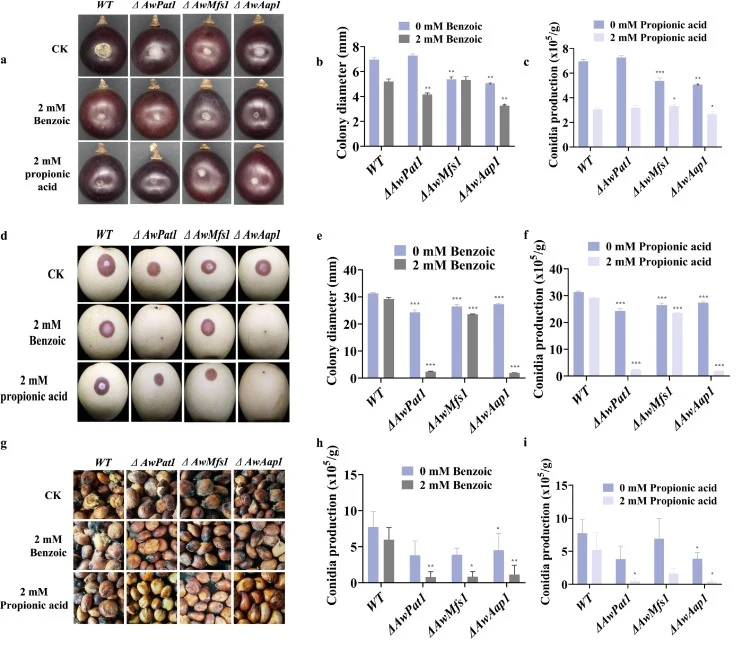
【数据】未处理葡萄病斑:WT 7.0 ± 0.2 mm,ΔAwAap1 5.1 ± 0.1 mm(P < 0.001),ΔAwMfs1 5.4 ± 0.3 mm(P < 0.001);苯甲酸2.0 mM葡萄病斑:WT 5.2 ± 0.2 mm,ΔAwPat1 4.2 ± 0.2 mm(P < 0.01),ΔAwAap1 3.3 ± 0.1 mm(P < 0.001);丙酸2.0 mM葡萄病斑:WT 3.1 ± 0.1 mm,ΔAwAap1 2.7 ± 0.2 mm(P < 0.05);未处理梨病斑:WT 31.5 ± 0.7 mm;宿主:葡萄、梨、高粱
3.6 三个转运蛋白的功能谱与结构架构
为解析三个转运蛋白的功能与结构特征,我们进行了系统发育分析和结构建模。图6a-c展示了AwPat1(图6a)、AwMfs1(图6b)和AwAap1(图6c)与已表征真菌直系同源物的最大似然系统发育树。TrSSP底物预测热图(图6d)显示了三个转运蛋白的推定底物特异性。AlphaFold2模型展示了AwPat1(图6e)、AwMfs1(图6f)和AwAap1(图6g)的预测三维结构。
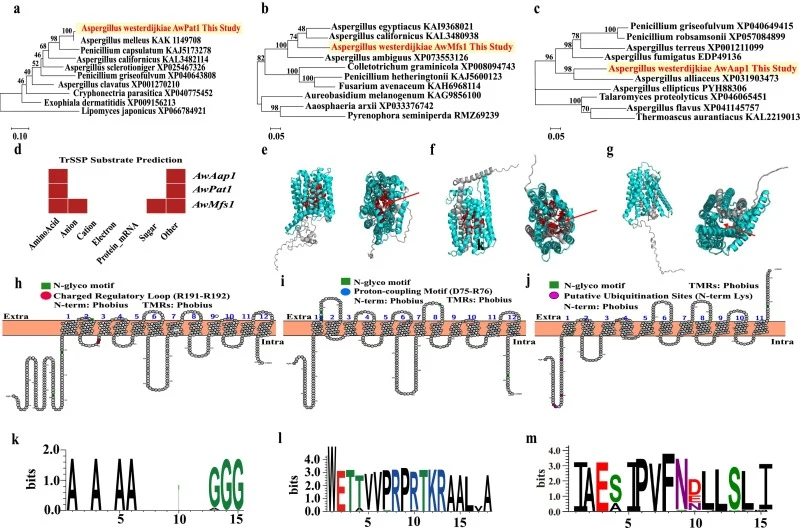
【数据】分析方法:最大似然系统发育分析、TrSSP底物预测、AlphaFold2结构建模;蛋白:AwPat1、AwMfs1、AwAap1
3.7 膜转运蛋白介导弱酸耐受、发育与OTA生物合成的模型
基于上述结果,我们提出了一个膜转运蛋白介导西曲霉弱酸耐受、发育和OTA生物合成的模型(图7)。该模型整合了三个转运蛋白在酸胁迫响应、菌丝发育、菌核形成、分生孢子产生、宿主定殖和OTA生物合成中的功能角色。
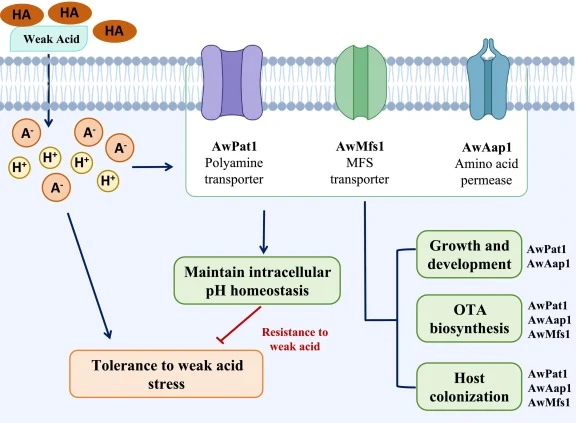
【数据】模型涉及蛋白:AwPat1、AwMfs1、AwAap1;功能:弱酸耐受、发育、OTA生物合成
讨论与解读
弱酸(如苯甲酸和丙酸)的抗菌效力取决于其未解离状态,这使其能够扩散穿过真菌质膜并在近中性胞质中解离。解离释放质子(H⁺)和相应阴离子,降低胞内pH并破坏跨膜质子动力势(PMF)。转录组数据揭示,这种物理化学胁迫重编程了西曲霉的细胞代谢,驱动转运相关途径富集,进而调节氧化还原稳态、嘌呤代谢和氨基酸生物合成。这些转录变化与其他曲霉暴露于有机酸防腐剂中的发现一致。因此,真菌在弱酸胁迫下的生存需要恢复pH平衡、维持膜完整性和排出有毒阴离子。
本研究证明,三个功能不同的转运蛋白——AwMfs1、AwPat1和AwAap1——显著影响西曲霉对弱酸防腐剂的耐受性。产毒真菌的宿主定殖依赖于发育进程和环境胁迫耐受。缺失突变体的表型和体内分析显示三个靶向转运蛋白具有不同的功能角色。AwPat1和AwAap1同时支持结构发育和一般胁迫耐受,而AwMfs1仅在酸适应和采后定殖中发挥特异性功能。尽管ΔAwMfs1在标准条件下生长正常,但它表现出酸特异性敏感性。弱酸应用严重限制了所有缺失菌株在测试商品上的生长,并完全抑制了OTA生物合成。定量分析确认每个转运蛋白缺失均降低OTA积累,其中ΔAwPat1菌株的降幅最大。
编译者解读
该研究从转录组筛选到基因敲除、表型鉴定和体内侵染实验,构建了一条完整的“转运蛋白—胁迫适应—毒素合成”证据链。其亮点在于发现了功能分化:AwPat1/AwAap1兼顾发育与广谱胁迫,AwMfs1则专司酸适应。这为防腐剂增效提供了精准靶点——抑制AwMfs1即可在酸性环境中特异性削弱菌株竞争力。局限在于尚未解析转运蛋白的具体底物和转运机制,AlphaFold2模型也需生化实验验证。未来若能将转运蛋白抑制剂与现有弱酸防腐剂联用,或可降低防腐剂用量并减少OTA污染风险。
参考来源
期刊:Food Research International, 2026
DOI: 10.1016/j.foodres.2026.120541
DOI: 10.1016/j.foodres.2026.120541