来源:Effect of luxS gene overexpression in the quorum sensing system on fermentation characteristics of Lactiplantibacillus plantarum HRB1: In vitro and in a dry sausage model(Food Microbiology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
哈尔滨干香肠的自然发酵依赖环境微生物,品质波动大。本研究将LuxS/AI-2群体感应系统的关键基因luxS在植物乳杆菌HRB1中过表达,构建重组菌株pMG36e-luxS。体外实验显示该菌株生长、AI-2产量、蛋白酶与脂肪酶活性均显著提升;干香肠模型中,重组菌加速酸化、维持植物乳杆菌优势地位,并提高游离氨基酸(27.37 mg/g)、总酯(1434.55 μg/kg)及关键挥发性化合物含量,改善了发酵气味与脂肪气味等感官属性。
研究背景
哈尔滨干香肠是传统发酵肉制品,因风味独特拥有可观消费市场。其工艺为猪绞肉与香辛料、调味料混合后灌肠,自然发酵约十天。发酵期间,原料肉与环境微生物互作,推动品质与风味形成。但自然发酵中关键微生物群落动态不确定,导致产品质量不稳定。添加发酵剂被提出作为标准化发酵过程、缩短生产时间、提升产品品质的有效策略。植物乳杆菌(Lactiplantibacillus plantarum)作为发酵剂具有显著优势,能有效调控发酵过程、促进有益代谢产物生成、增强产品稳定性与安全性。然而在实际发酵环境中,温湿度等复杂理化因子以及微生物群落间的互作会显著影响发酵效率,给植物乳杆菌的应用带来关键挑战。为此,植物乳杆菌可通过检测环境信号来协调群体行为——LuxS/AI-2群体感应(QS)系统便是其中的重要调控机制。本研究即围绕该系统中的关键基因luxS展开。
研究方法
2.1 材料
植物乳杆菌HRB1分离自传统发酵干香肠,保藏于东北农业大学肉品科学实验室(Hu et al., 2022a,b)。pMG36e质粒、哈维氏弧菌(Vibrio harveyi)BB170和大肠杆菌DH5α购自武汉淼灵生物科技有限公司(中国武汉)。所有肉汤和琼脂购自南通凯恒生物科技发展有限公司(中国江苏)。FastPure Microbiome DNA Isolation Kit(试剂盒1)、E.Z.N.A.® Gel Extraction Kit(试剂盒2)、ClonExpress Ultra One Step Cloning Kit(试剂盒3)、E.Z.N.A.® Bacterial RNA Kit(试剂盒4),以及限制性内切酶XbaI和HindIII,均购自南京诺唯赞生物科技股份有限公司(中国南京)。
【数据】菌株:植物乳杆菌HRB1、哈维氏弧菌BB170、大肠杆菌DH5α;质粒:pMG36e;限制酶:XbaI、HindIII;试剂盒:4种;试剂来源:武汉淼灵、南通凯恒、南京诺唯赞
2.2 表达载体的构建
使用试剂盒1从植物乳杆菌HRB1中提取DNA。按照Shi et al.(2022)所述方法,用表1中详列的引物进行PCR扩增。随后用试剂盒2纯化PCR产物,获得产物1。用限制性内切酶XbaI和HindIII酶切pMG36e质粒,获得产物2。用试剂盒3连接产物1与产物2,生成产物3,随后通过转化导入大肠杆菌DH5α感受态细胞,37 °C孵育1 h。之后用表1所列pMG36e质粒通用引物筛选并验证阳性菌落,再经测序进一步确认。正确构建的质粒命名为pMG36e-luxS。
【数据】菌株:植物乳杆菌HRB1、大肠杆菌DH5α;质粒:pMG36e;限制酶:XbaI、HindIII;温度:37°C;时间:1h;方法:PCR扩增、酶切、连接、转化、测序
2.3 重组菌株的构建
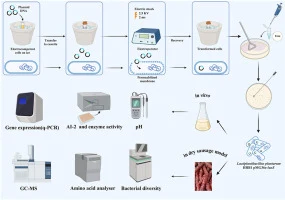
参照Shi et al.(2024)所述方法,通过电穿孔构建重组菌株。植物乳杆菌HRB1用冰冷无菌水洗涤两次,然后重悬于冰冷EDTA缓冲液(0.05 M,25 mL)中,离心收集沉淀。沉淀用含10%(w/v)蔗糖和10%(w/v)甘油的冰冷缓冲液冲洗两次,随后重悬于同样的冰冷缓冲液中,分装至无菌1.5 mL离心管,每管100 μL。制备好的感受态细胞于−80 °C保存。向感受态细胞中加入2 μg质粒(pMG36e和pMG36e-luxS),充分混匀。混合物立即置于微粒电穿孔仪(SCIENTZ-2C,南北科学仪器科技有限公司,中国)中,以2.5 KV电击2 ms。细胞重悬于de Man, Rogosa and Sharpe(MRS)肉汤中培养4 h,然后涂布于含红霉素(100 μg/mL)的MRS琼脂平板上进行筛选。随后用表1所列通用引物确认重组菌株。
【数据】缓冲液:EDTA 0.05 M、25 mL;蔗糖:10%(w/v);甘油:10%(w/v);分装体积:100 μL/管;质粒用量:2 μg;电击参数:2.5 KV、2 ms;抗生素:红霉素100 μg/mL;复苏时间:4h;保存温度:−80°C
2.4 植物乳杆菌HRB1-pMG36e-luxS的AI-2产量与酶活性测定
#### 2.4.1 生长曲线与pH测定
使用分光光度计(UV3000S,中国)在24 h内每4 h测定一次菌株600 nm密度。pH按Sui et al.(2024b)的方法测定。
【数据】检测波长:600 nm;检测间隔:每4h;总时长:24h;仪器:UV3000S分光光度计
#### 2.4.2 AI-2产量测定
AI-2活性采用Lu et al.(2025)的方法测定。乳酸菌和哈维氏弧菌BB170培养物经0.22 μm无菌注射器滤器过滤,获得无细胞上清液(CFS)。哈维氏弧菌BB170培养物用2216E肉汤稀释5000倍,制备稀释液1。该稀释液随后用于将各乳酸菌CFS、哈维氏弧菌BB170 CFS、2216E肉汤和MRS肉汤稀释100倍。在0–6 h期间,每30 min采集200 μL样品,用酶标仪(INFINITE M200 PRO,中国)定量荧光强度。
【数据】滤膜孔径:0.22 μm;BB170稀释倍数:5000倍;样品稀释倍数:100倍;采样间隔:每30min;采样时段:0–6h;样品体积:200 μL;仪器:INFINITE M200 PRO酶标仪
#### 2.4.3 酶活性测定
采用酪蛋白-福林法评估菌株蛋白酶活性(Lu et al., 2025)。菌株脂肪酶活性采用Han et al.(2023)所述方法测定。
【数据】方法:酪蛋白-福林法(蛋白酶)、Han et al. 2023法(脂肪酶);原文未详述具体用量与时间
2.5 基因表达测定
使用试剂盒4从乳酸菌中分离总RNA。相对表达水平采用2−ΔΔCt方法测定。以16S rRNA基因为参照基因,本研究所用引物列于表2。通过实时荧光定量PCR(qRT-PCR)分析检测基因(luxS、pfs、lip、CysK和DSD1)的相对表达水平。
【数据】试剂盒:E.Z.N.A.® Bacterial RNA Kit;分析方法:2−ΔΔCt;参照基因:16S rRNA;目标基因:luxS、pfs、lip、CysK、DSD1;方法:qRT-PCR
2.6 接种植物乳杆菌HRB1-pMG36e-luxS的哈尔滨干香肠理化与风味特性测定
#### 2.6.1 哈尔滨干香肠的制备
干香肠按Lu et al.(2025)所述方法制备。简言之,猪瘦肉(2250 g)和猪背膘(250 g)用绞肉机(Simingrui RY-22S,镇江,中国)经1.5 cm孔板绞碎,加入以下配料:氯化钠(50 g)、葡萄糖(25 g)、亚硝酸钠(0.22 g)、谷氨酸钠(7.5 g)、混合香辛料(20 g)和绵竹大曲酒(四川,中国;52 %vol,25 g)。肉糜接种植物乳杆菌HRB1或植物乳杆菌HRB1 pMG36e-luxS,最终浓度约为每克肉107 CFU。接种前,所有菌株在MRS肉汤中37 °C培养18 h。OD600值与乳酸菌活菌数之间的相关性已通过标准平板计数预先建立。据此,根据各培养物相应的OD600值确定其细胞浓度。随后离心收集细胞(12,000 × g,4 °C,10 min),用无菌生理盐水洗涤三次,重悬于无菌生理盐水中。根据重悬培养物的细胞浓度和肉糜总质量,计算并调整接种体积,以获得每克肉107 CFU的浓度。随后用绞肉机(义乌展志日用品有限公司,浙江,中国)混合肉糜,再用灌肠机(永康艾顿塑料制品有限公司,浙江,中国)灌入直径30 mm的猪肠衣中。香肠在25 ± 2 °C(相对湿度30%–50%)下干燥1天,然后在气候箱(FitoClima 600 PH,Aralab,Rio de Mouro,葡萄牙)中于25 ± 2 °C(相对湿度65%–70%)发酵8天。设三个处理组:未接种对照(Con),以及接种植物乳杆菌HRB1(LP)或植物乳杆菌HRB1 pMG36e-luxS(LP-L)的两个处理组。在第0、3、6、9天评估理化特性、细菌计数和细菌多样性。在第9天评估游离氨基酸含量、挥发性化合物和感官特性。
【数据】猪瘦肉:2250g;猪背膘:250g;氯化钠:50g;葡萄糖:25g;亚硝酸钠:0.22g;谷氨酸钠:7.5g;混合香辛料:20g;绵竹大曲:52%vol、25g;接种浓度:107 CFU/g;培养温度:37°C;培养时间:18h;离心:12,000×g、4°C、10min;肠衣直径:30mm;干燥:25±2°C、RH 30%–50%、1天;发酵:25±2°C、RH 65%–70%、8天;检测时间点:0、3、6、9天
#### 2.6.2 理化特性与细菌计数测定
水分含量用水分测定仪(XF-1203MA,中国)测定。水分活度(aw)用aw仪(WaterLab Pro,意大利)测定。pH按Sui et al.(2024a)的方法测定。乳酸菌和总活菌数按Wang et al.(2022)的方法测定。
【数据】仪器:XF-1203MA水分测定仪、WaterLab Pro aw仪;方法:Sui et al. 2024a(pH)、Wang et al. 2022(菌落计数)
#### 2.6.3 游离氨基酸测定
干香肠的游离氨基酸按Wang et al.(2022)的方法用氨基酸分析仪测定。
【数据】方法:氨基酸分析仪;参考:Wang et al. 2022
#### 2.6.4 挥发性化合物测定
干香肠中的挥发性化合物采用固相微萃取提取,气相色谱/质谱分析,参照Lu et al.(2025)所述方法。将绞碎的干香肠(3.0 g)和4 mL邻二氯苯(100 mg/L)依次加入20 mL顶空容器中。用SPME纤维在45 °C下萃取30 min。挥发性化合物通过将其质谱与NIST 17s质谱库比对进行鉴定,并通过比较峰面积与内标峰面积进行半定量。
【数据】样品:3.0g绞碎干香肠;内标:4mL邻二氯苯(100mg/L);顶空容器:20mL;萃取温度:45°C;萃取时间:30min;鉴定库:NIST 17s;方法:SPME-GC/MS
研究结果
3.1 植物乳杆菌HRB1-pMG36e-luxS重组菌株构建验证
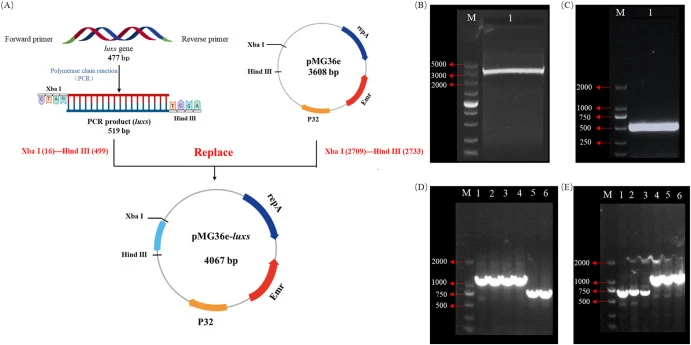
pMG36e-luxS表达载体(图1A)的构建通过XbaI和HindIII双酶切线性化pMG36e质粒(图1B),随后连接从植物乳杆菌HRB1扩增的luxS基因(图1C)实现,并经测序和电泳分析确认。目标基因的成功整合通过PCR产物大小从723 bp(pMG36e)增加至1182 bp(pMG36e-luxS)得到证实,如图1D所示。随后电转化入植物乳杆菌HRB1,通过PCR扩增验证,分别特异性检测到预期的723 bp和1182 bp片段(图1E)。
【数据】质粒:pMG36e、pMG36e-luxS;限制酶:XbaI、HindIII;PCR产物大小:723 bp(pMG36e)、1182 bp(pMG36e-luxS);验证方法:测序、电泳、PCR
3.2 植物乳杆菌HRB1-pMG36e-luxS的AI-2产量与酶活性分析
#### 3.2.1 生长与pH分析
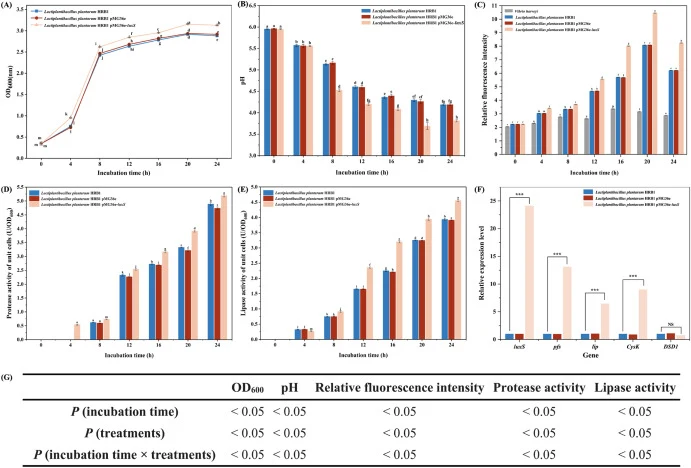
如图2A所示,植物乳杆菌HRB1与植物乳杆菌HRB1 pMG36e之间的OD600无显著差异(p > 0.05),但植物乳杆菌HRB1 pMG36e-luxS的OD600显著高于植物乳杆菌HRB1和植物乳杆菌HRB1 pMG36e(p < 0.05)。这种生长增强可能归因于luxS过表达,其促进AI-2产生从而增强菌株生长(Shi et al., 2024)。总体而言,本研究中三株菌在24 h内均表现出良好的生长能力。如图2B所示,植物乳杆菌HRB1与植物乳杆菌HRB1 pMG36e在整个培养期间的pH值无显著差异(p > 0.05)。三株菌培养物的pH值持续下降,在24 h达到最低水平。此时,植物乳杆菌HRB1 pMG36e-luxS培养物的pH降至3.81,显著低于植物乳杆菌HRB1(4.19)和植物乳杆菌HRB1 pMG36e(4.18)(p < 0.05)。该结果表明植物乳杆菌HRB1 pMG36e-luxS在三株菌中具有最强的酸化能力。
【数据】OD600:luxS过表达株显著高于对照(p<0.05);pH(24h):LP-L 3.81、HRB1 4.19、HRB1 pMG36e 4.18;显著性:p<0.05;培养时间:24h
#### 3.2.2 AI-2产量分析
如图2C所示,三株乳酸菌的AI-2产量在0至20 h期间均先增加,与活菌数增加呈正相关。随后20至24 h AI-2水平逐渐下降,表明该时期AI-2水平下降可能归因于AI-2的胞内转运以调控相关生理功能(Gori et al., 2011)。大多数乳酸菌的AI-2产量在对数生长末期或稳定期达到峰值,如Lu et al.(2025)所述。植物乳杆菌HRB1 pMG36e-luxS处理在20 h时的AI-2产量显著高于其他处理(p < 0.05)。该结果表明luxS基因过表达增强了AI-2的合成与释放。
【数据】AI-2峰值时间:20h;下降时段:20–24h;LP-L在20h显著高于其他处理(p<0.05);相关性:与活菌数正相关
#### 3.2.3 蛋白酶活性分析
微生物对蛋白质的降解与蛋白酶活性密切相关,蛋白酶将蛋白质水解为多肽,随后进一步裂解为氨基酸。这些小分子对塑造发酵肉制品的整体风味至关重要(Fan et al., 2024; Sun et al., 2020)。图2D显示,0 h时所有菌株均未观察到蛋白酶活性;然而,仅植物乳杆菌HRB1 pMG36e-luxS处理在4 h时表现出可检测的蛋白酶活性(0.54 U/OD600),表明胞外蛋白水解启动更快。此外,植物乳杆菌HRB1 pMG36e-luxS在24 h时的蛋白酶活性显著高于其他菌株(植物乳杆菌HRB1 pMG36e-luxS、HRB1和HRB1 pMG36e分别为5.19、4.89和4.74 U/OD600;p < 0.05)。植物乳杆菌HRB1 pMG36e-luxS更早启动且更高的蛋白酶活性,结合该菌株增强的AI-2产量和改善的生长性能,表明luxS基因过表达增强了植物乳杆菌HRB1 pMG36e-luxS的蛋白水解能力,可能因此促进风味前体尤其是游离氨基酸的积累(Lai et al., 2023; Lu et al., 2025)。
【数据】蛋白酶活性(4h):LP-L 0.54 U/OD600,其余未检出;蛋白酶活性(24h):LP-L 5.19、HRB1 4.89、HRB1 pMG36e 4.74 U/OD600;显著性:p<0.05
#### 3.2.4 脂肪酶活性分析
脂肪分解和氧化对塑造发酵肉制品风味至关重要。脂质被脂肪酶水解,产生游离脂肪酸,后者是发酵肉制品挥发性风味化合物形成的重要前体(Murtaza et al., 2014)。图2E显示,所有菌株的脂肪酶活性从8 h起呈增加趋势,表明脂质代谢逐渐激活(Han et al., 2023)。此外,植物乳杆菌HRB1 pMG36e-luxS在24 h时的脂肪酶活性显著高于其他菌株(植物乳杆菌HRB1 pMG36e-luxS、HRB1和HRB1 pMG36e分别为4.55、3.93和3.91 U/OD600;p < 0.05)。结合其增强的AI-2产量、更强的生长和更大的酸化能力,这些发现表明luxS过表达改善了植物乳杆菌HRB1 pMG36e-luxS的生理和代谢状态,从而在体外增强了其脂肪分解响应。脂肪分解是脂质衍生风味开发的关键上游步骤,luxS过表达菌株更高的脂肪酶活性表明其在发酵过程中具有更强的脂质代谢潜力。
【数据】脂肪酶活性起始增加时间:8h;脂肪酶活性(24h):LP-L 4.55、HRB1 3.93、HRB1 pMG36e 3.91 U/OD600;显著性:p<0.05
3.3 植物乳杆菌HRB1-pMG36e-luxS的基因表达分析
本研究涉及的关键代谢基因包括luxS、pfs、lip和CysK,它们在植物乳杆菌HRB1的代谢网络中发挥不同功能。具体而言,luxS是QS系统中负责AI-2合成的关键基因,而pfs与luxS协同通过参与甲基循环调控AI-2产量。lip基因编码促进脂质代谢的脂肪酶,CysK参与半胱氨酸生物合成,从而贡献于氨基酸代谢途径(Lu et al., 2025; Shi et al., 2022)。如图2F所示,luxS基因过表达后,luxS、pfs、lip和CysK基因的表达水平均显著上调(p < 0.05);然而,植物乳杆菌HRB1 pMG36e与原始菌株之间基因表达无显著差异(p > 0.05)。其中,作为QS核心组分的luxS和pfs上调,直接证实了过表达策略在代谢途径中的成功实施。lip的高表达可通过促进脂肪酶合成增强脂肪酸代谢,从而为酯类和醛类等风味化合物的生成提供充足前体。同时,CysK上调加速了半胱氨酸等氨基酸向丙酮酸的转化。丙酮酸不仅通过三羧酸循环作为菌株代谢的重要能源,还作为关键代谢节点和多种风味化合物的前体(Fan et al., 2024)。因此,CysK介导的丙酮酸代谢增强可同时满足能量供应和风味前体积累。
【数据】上调基因:luxS、pfs、lip、CysK(p<0.05);无差异:HRB1 pMG36e vs 原始菌株(p>0.05);方法:qRT-PCR
3.4 接种植物乳杆菌HRB1-pMG36e-luxS对哈尔滨干香肠理化特性与风味形成的影响
#### 3.4.1 理化特性分析
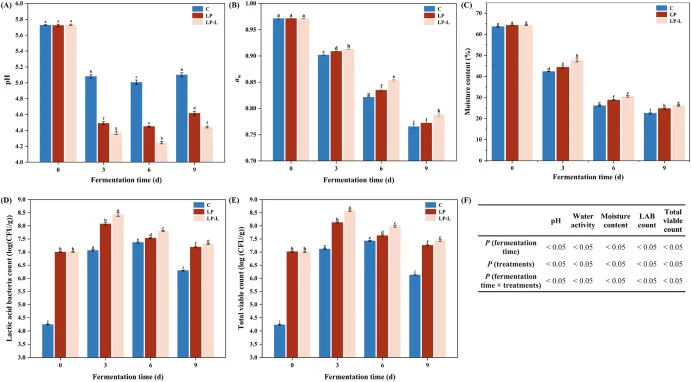
图3A显示,所有干香肠的初始pH约为5.72。从第3天起,所有干香肠的pH值显著下降,在第6天达到最低水平,Con、LP和LP-L处理分别为5.01、4.45和4.25(p < 0.05)。此外,第6天LP-L处理的pH值(4.25)显著低于LP处理(4.45)(p < 0.05)。该效应可归因于luxS过表达刺激了碳水化合物代谢。
【数据】初始pH:约5.72;第6天pH:Con 5.01、LP 4.45、LP-L 4.25;显著性:p<0.05;LP-L vs LP:4.25 vs 4.45(p<0.05)
3.5 综合讨论
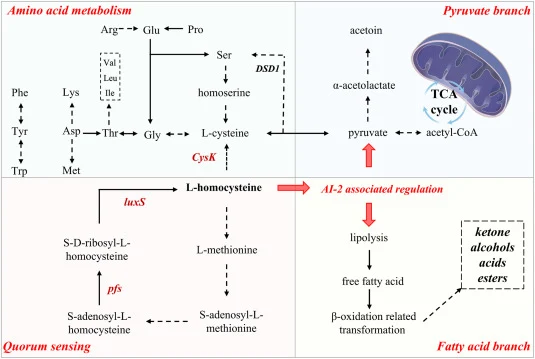
通过整合基因表达、酶活性和挥发性成分分析与相关KEGG通路,我们提出luxS/pfs上调与调控挥发性风味形成的前体通路之间的机制联系(图6)。具体而言,luxS和pfs的上调表明甲基循环和LuxS/AI-2介导的调控激活增强。这一上游变化可能与含硫氨基酸(特别是L-同型半胱氨酸和L-半胱氨酸)的代谢有关,从而将代谢导向丙酮酸衍生前体。丙酮酸分支将丙酮酸导向α-乙酰乳酸和乙偶姻的合成。LP-L处理中乙偶姻的大量积累为该通路的激活提供了证据。此外,植物乳杆菌HRB1 pMG36e-luxS中lip基因上调和伴随的脂肪酶活性增加表明脂质水解增强,释放游离脂肪酸作为下游底物。这些前体随后通过β-氧化代谢,驱动包括酮类、醇类、羧酸类和酯类在内的多种脂质衍生挥发物的生成。与该通路一致,LP-L处理表现出代表性化合物水平升高,特别是2-壬酮、1-己醇和总酯。总之,这些结果表明luxS和pfs上调可能协调两大前体通路。
【数据】通路:甲基循环、LuxS/AI-2调控、丙酮酸分支、β-氧化;关键化合物:乙偶姻、2-壬酮、1-己醇、总酯;方法:KEGG通路分析
干香肠模型中的品质与风味表现
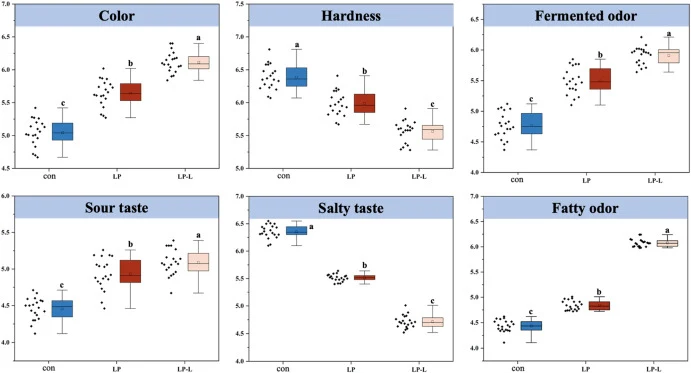
在干香肠模型中,接种重组菌株加速了酸化并维持植物乳杆菌在整个发酵过程中的优势地位。接种植物乳杆菌HRB1 pMG36e-luxS的干香肠表现出更高的总游离氨基酸(27.37 mg/g)、总酯(1434.55 μg/kg)和关键挥发性化合物,尤其是乙偶姻和1-己醇,从而改善了发酵气味和脂肪气味等感官属性。
【数据】总游离氨基酸:27.37 mg/g;总酯:1434.55 μg/kg;关键挥发物:乙偶姻、1-己醇;感官属性:发酵气味、脂肪气味
细菌多样性与感官评价
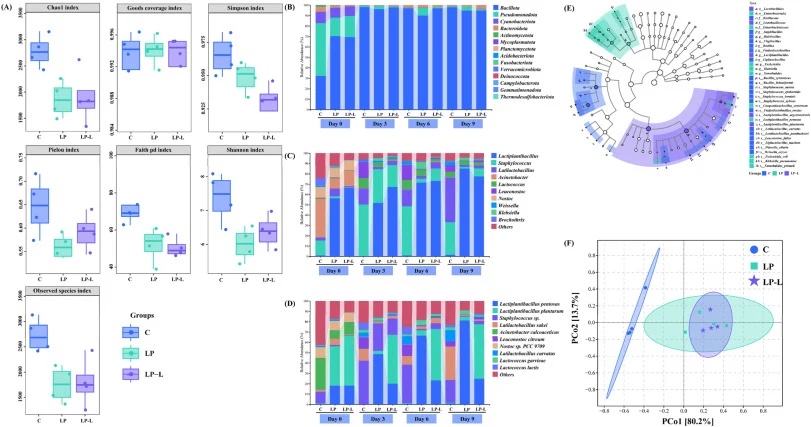
干香肠接种不同乳酸菌后的细菌多样性分析涵盖α多样性、门/属/种水平分类组成、LEfSe分析和PCA分析(图4)。感官评价结果以均值±SE表示(n=15),不同小写字母表示统计学差异(图5)。
【数据】感官评价样本量:n=15;统计表示:均值±SE;显著性标记:a–c不同小写字母表示统计学差异
讨论与解读
本研究将LuxS/AI-2群体感应系统的关键基因luxS在植物乳杆菌HRB1中过表达,从体外到干香肠模型系统评估了重组菌株的发酵特性。体外实验中,luxS过表达显著增强了菌株生长、AI-2产量、蛋白酶和脂肪酶活性,并上调了luxS、pfs、lip和CysK等关键代谢基因的表达。在干香肠模型中,重组菌株加速酸化、维持植物乳杆菌优势地位,并提高了总游离氨基酸(27.37 mg/g)、总酯(1434.55 μg/kg)及乙偶姻、1-己醇等关键挥发性化合物的含量,改善了发酵气味和脂肪气味等感官属性。通过整合基因表达、酶活性和挥发性成分与KEGG通路,研究者提出luxS/pfs上调协调丙酮酸衍生前体通路和脂质水解-β-氧化通路的机制模型。总体而言,luxS基因过表达通过强化LuxS/AI-2相关调控,增强了植物乳杆菌HRB1的发酵能力和风味形成能力,为构建具有功能性LuxS/AI-2 QS的工程化发酵剂奠定了理论基础。
编译者解读
该研究将群体感应调控引入肉品发酵剂改造,思路清晰:不是单纯过表达代谢酶,而是从全局调控节点luxS切入,四两拨千斤地同时拉动产酸、蛋白酶、脂肪酶和风味前体多条通路。体外到干香肠模型的递进验证也增强了结论的可信度。但需注意,luxS过表达带来的生长优势在复杂微生物群落中是否会被其他菌竞争削弱,以及重组菌在食品基质中的长期遗传稳定性,仍是工程化发酵剂落地前必须回答的问题。
参考来源
期刊:Food Microbiology, 2026
DOI: 10.1016/j.fm.2026.105127
DOI: 10.1016/j.fm.2026.105127