来源:Adhesin gene overexpression stimulates biofilm formation and catalytic performance in recombinant Escherichia coli(Bioresource Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
生物被膜催化因细胞稳定性高、可重复使用性强、操作简便而在生物催化领域前景广阔。然而,大肠杆菌天然成膜能力有限,制约了其在催化过程中的表现。本研究通过过表达黏附相关基因并结合载体材料,构建了一套理性工程策略。其中,ecpA 与 proQ 过表达菌株的生物被膜生物量分别提升 563.88% 与 550.36%(p < 0.001)。加入亲水性聚氨酯纤维载体后,ecpA 过表达菌株形成的生物被膜催化剂实现了 97.81% 的芦丁转化率和 90.11% 的异槲皮苷产量(p < 0.05)。
研究背景
黏附素是细菌表面的蛋白质或糖蛋白,是生物被膜发育的关键支撑。生物被膜在废水处理、生物催化、生物转化、环境修复、食品加工、生物能源生产及农业生态系统中均有广泛应用,因此黏附素机制近年来在生物催化与生物工程领域备受关注。细菌黏附是生物被膜发育的起始阶段,从不可逆附着向成熟生物被膜的转变,主要由黏附素介导——它们与宿主组织、合成表面或邻近细菌细胞上的碳水化合物、蛋白质或脂质受体相互作用。大肠杆菌生物被膜能够形成高黏附、高耐受的复杂微环境,催化过程中可减少细胞流失,提升催化稳定性与效率。与游离细胞相比,固定化大肠杆菌对环境胁迫的耐受性更强,更适合连续生物催化过程。因此,增强生物被膜形成的可控性与鲁棒性,被视为拓展生物催化应用、开发新型活体生物催化剂的关键。
研究方法
2.1 材料与化学试剂
本研究中用于质粒克隆的工程菌为大肠杆菌 DH5α,购自全式金生物技术有限公司(中国北京)。过表达载体 pGEM-T Easy 购自 Promega 生物技术公司(中国北京)。所用修饰亲本菌株为本实验室保存的产 α-L-鼠李糖苷酶(RhaB1)的重组大肠杆菌 BL21-pET28a-rhaB1-ΔN。所有所需化学试剂均为分析纯,购自上海阿拉丁生化科技股份有限公司(中国上海)。
【数据】菌株:大肠杆菌 DH5α、BL21-pET28a-rhaB1-ΔN;载体:pGEM-T Easy;试剂级别:分析纯;试剂来源:上海阿拉丁生化科技股份有限公司;其他:原文未详述
2.2 过表达黏附素基因的重组大肠杆菌构建
基于 NCBI 中大肠杆菌 BL21(DE3) 菌株的全基因组序列(GenBank:CP053602.1)设计用于生物被膜形成的引物(见补充材料)。选取了大肠杆菌 BL21(DE3) 中六个黏附素表达关键基因,即 aat、fimA、ecpA、proQ、ecpD 和 fimH。本研究所用核苷酸序列完整列表见补充材料。目标基因从其基因组 DNA 中扩增,与过表达载体 pGEM-T Easy 连接。随后将这些重组载体导入大肠杆菌 BL21(DE3) 菌株,构建过表达菌株。从产酶重组大肠杆菌 BL21-pET28a-rhaB1-ΔN 菌株中提取含 rhaB1-ΔN 基因的质粒,随后通过热激法将该质粒导入过表达大肠杆菌中。重组大肠杆菌菌株以 1%(v/v)接种量接种于添加 50 μg·mL⁻¹ 氨苄青霉素的 Luria-Bertani(LB)培养基中,于 37°C、200 rpm 振荡培养。
【数据】菌株:大肠杆菌 BL21(DE3);基因:aat、fimA、ecpA、proQ、ecpD、fimH;载体:pGEM-T Easy;接种量:1%(v/v);抗生素:50 μg·mL⁻¹ 氨苄青霉素;培养基:LB;温度:37°C;转速:200 rpm;其他:原文未详述
2.3 重组大肠杆菌生长与生物被膜生物量
将亲本菌株与过表达菌株以 1:100 比例接种于 LB 培养基中,于 37°C 振荡培养。每 2 h 取样,测定 OD600 吸光度。根据测得吸光度值绘制细菌生长曲线(Yan et al., 2024)。大肠杆菌生物被膜形成采用此前报道的结晶紫染色法评估(Nilles et al., 2022)。简言之,将重组菌株以 1:100 稀释接种于 12 孔板中,于 37°C 孵育以促进生物被膜发育。孵育后小心移除游离细菌,用磷酸盐缓冲液(PBS,pH 7.4)轻轻冲洗孔三次。附着的生物被膜于室温风干 20 min,用甲醇固定 20 min,再用 0.1%(w/v)结晶紫染色 20 min。用 PBS 洗去多余染液后,平板再次于室温干燥。随后将结合的结晶紫溶于 95% 乙醇中,使用多功能酶标仪(Spectra Maxi3,Sunnyvale,California,USA)在 OD595 处测定生物被膜生物量。大肠杆菌 EPS 采用热提取法并稍作修改(Huang et al., 2019)。取 5 mL 大肠杆菌培养液,于 4°C、9000 rpm 离心 10 min 获得细胞沉淀。将沉淀重悬于预热的 0.05% NaCl 溶液(70°C)中,随后离心收集上清液作为松散结合 EPS(LB-EPS)。残余沉淀随后重悬于 0.05% NaCl 溶液中,于 70°C 孵育 20 min。离心后回收上清液作为紧密结合 EPS(TB-EPS)。EPS 组分中的总多糖采用苯酚-硫酸法测定,以葡萄糖为标准品。蛋白质含量采用改良 Lowry 法测定,以牛血清白蛋白为校准标准品(Zhang et al., 2024)。牛血清白蛋白与葡萄糖的标准曲线通过吸光度与样品浓度之间的线性回归绘制(见补充材料)。
【数据】接种比例:1:100;培养温度:37°C;取样间隔:2 h;检测波长:OD600、OD595;PBS:pH 7.4;风干时间:20 min;固定液:甲醇;固定时间:20 min;染色液:0.1%(w/v)结晶紫;染色时间:20 min;溶解液:95% 乙醇;EPS提取:5 mL 培养液、9000 rpm、10 min、4°C;LB-EPS:0.05% NaCl、70°C;TB-EPS:0.05% NaCl、70°C、20 min;多糖测定:苯酚-硫酸法、葡萄糖标准;蛋白测定:改良Lowry法、牛血清白蛋白标准
2.4 重组大肠杆菌运动性能测定
细菌运动性采用添加 0.3%、0.5% 或 1.15% 琼脂的 LB 半固体培养基评估,分别对应泳动(swimming)、蹭动(twitching)和群游(swarming)运动。将对数生长期的重组菌株接种于制备好的平板上,于 37°C 孵育 48 h(Yan et al., 2023)。通过测量亲本菌株与过表达菌株扩展区的直径来量化运动性。菌株运动促进率采用以下公式计算:
(1)Promotion rate (%) = (R₂ - R₁) / R₁ × 100%
其中 R₁ 为亲本菌株运动区半径(cm),R₂ 为过表达菌株运动区半径(cm)。
【数据】琼脂浓度:0.3%、0.5%、1.15%;培养基:LB半固体;温度:37°C;时间:48 h;其他:原文未详述
2.5 重组大肠杆菌疏水性与自聚集行为
采用微生物黏附碳氢化合物(MATH)试验测定菌株疏水性(Oda and Tanikawa, 2022)。将过表达目标基因的大肠杆菌菌株接种于含 1% w/v 氨苄青霉素的 LB 培养基中。于 37°C 孵育 12–16 h 后,将细菌培养液于 4000 rpm 离心 10 min 收集细胞。所得细菌细胞用 10 mL 生理盐水洗涤两次。以生理盐水为参比,调整测试菌株细菌悬液浓度至 OD580 为 1。计算细菌表面疏水性(CSH)。
(2)CHS (%) = (S₀ - S) / S × 100%
其中 S₀ 为与二甲苯混合前水相的 OD580,S 为与二甲苯混合后水相的 OD580。
菌株自聚集按照 Tian 等方案稍作修改测定(Tian and Zhao, 2024)。将过表达大肠杆菌菌株以 1%(v/v)接种量接种于 30 mL 含氨苄青霉素的 LB 培养基中,于 37°C 孵育 16 h。培养后,将培养液于 4000 rpm 离心 15 min 收集细菌沉淀。收集的细胞用生理盐水洗涤两次,每次洗涤后重悬于 20 mL 生理盐水中,并于 4000 rpm 离心 15 min 实现固液分离。以生理盐水为空白对照,调整细胞悬液至 OD600 为 1。随后按公式(3)计算菌株自聚集百分比。
(3)Self-aggregation (%) = (1 - D₁ / D₀) × 100%
其中 D₀ 为自聚集前上层溶液的 OD600,D₁ 为自聚集后上层溶液的 OD600。
【数据】抗生素:1% w/v 氨苄青霉素;培养基:LB;温度:37°C;时间:12–16 h(疏水性)、16 h(自聚集);离心:4000 rpm、10 min(疏水性)、4000 rpm、15 min(自聚集);洗涤液:10 mL 生理盐水;检测波长:OD580、OD600;有机相:二甲苯;其他:原文未详述
2.6 RNA 提取与 qRT-PCR
使用商业总 RNA 提取试剂盒(TaKaRa)按制造商说明从大肠杆菌细胞中提取总 RNA。使用 HiScript III 第一链 cDNA 合成试剂盒(含 gDNA Wiper)合成第一链 cDNA。定量实时 PCR(qRT-PCR)使用 ChamQ SYBR qPCR Master Mix 进行。以管家基因 dnaE 作为内参,引物序列基于 NCBI 数据库信息设计(见补充材料)。Ct 值使用 LightCycler®96 实时 PCR 系统(Roche,USA)获得。相对基因表达水平采用 2^−ΔΔCt 法计算。
【数据】试剂盒:TaKaRa总RNA提取试剂盒、HiScript III 1st Strand cDNA Synthesis Kit、ChamQ SYBR qPCR Master Mix;内参基因:dnaE;仪器:LightCycler®96 Real-Time PCR系统(Roche,USA);计算方法:2^−ΔΔCt法;其他:原文未详述
2.7 细菌菌落形态与生物被膜表征
表征前,对大肠杆菌生物被膜进行固定处理。将附着生物被膜的载体用 PBS 轻轻冲洗三次以去除游离细胞,随后浸入 4% 戊二醛中于 4°C 过夜固定。固定后移除固定液,样品用 PBS 缓冲液洗涤三次。生物被膜样品随后经乙醇梯度脱水,之后通过扫描电子显微镜(Regulus-8100,Hitachi,Japan)观察。对于荧光成像,将固定后的生物被膜用 SYBR Green I 染色 20 min,并使用倒置荧光显微镜观察。
【数据】固定液:4% 戊二醛;固定条件:4°C、过夜;洗涤液:PBS;洗涤次数:3次;脱水:乙醇梯度;电镜:Regulus-8100(Hitachi,Japan);荧光染料:SYBR Green I;染色时间:20 min;其他:原文未详述
研究结果
3.1 黏附素基因过表达菌株的构建与基因表达水平
图1a 显示,通过过表达黏附相关基因 aat、fimA、ecpA、proQ、ecpD 和 fimH 可促进大肠杆菌生物被膜形成。将目标基因克隆至 pGEM-T Easy 载体,重组质粒转化至大肠杆菌 BL21(DE3) 以生成黏附素基因过表达菌株。如图1b 所示,构建了重组大肠杆菌菌株 OE-aat、OE-fimA、OE-ecpD、OE-proQ、OE-ecpA 和 OE-fimH,并通过 PCR 验证。结果表明,扩增片段与相应过表达基因的长度匹配。测序分析进一步确认了克隆序列的准确性,验证了六个黏附素基因过表达菌株的成功构建。
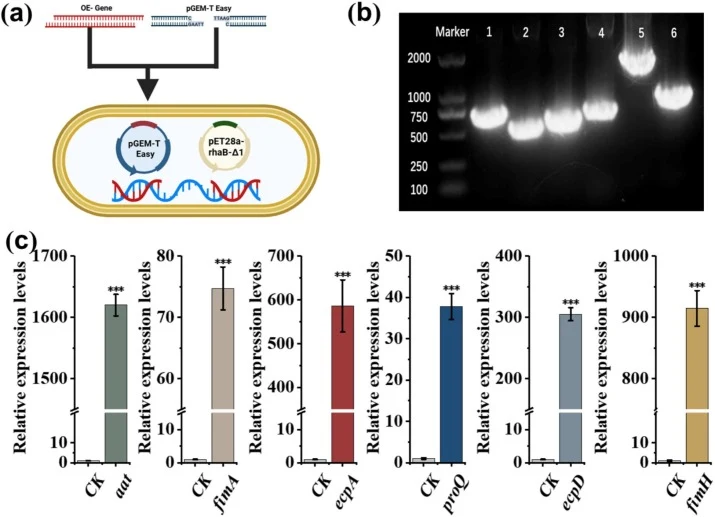
图1c 显示,与亲本菌株大肠杆菌 rhaB1-ΔN 相比,过表达菌株中所有过表达基因的表达水平均显著上调(p < 0.001)。其中,大肠杆菌 OE-aat 中的 aat 基因、OE-fimA 中的 fimA 基因、OE-ecpA 中的 ecpA 基因、OE-proQ 中的 proQ 基因、OE-ecpD 中的 ecpD 基因和 OE-fimH 中的 fimH 基因分别表达上调 1620.1 倍、74.4 倍、58.1 倍、37.8 倍、305.3 倍和 914.7 倍。此前研究已证明,过表达群体感应基因 luxS 可通过增加 AI-2 产量增强生物被膜形成(Dixit et al., 2017)。然而,群体感应主要通过调控参与黏附、胞外聚合物合成和运动性的下游基因发挥作用。在这些因素中,黏附素在介导从可逆向不可逆附着的转变中起关键作用,而这对建立稳定生物被膜至关重要。因此,直接过表达黏附素基因可能是增强细菌黏附和生物被膜形成的更具靶向性和效率的策略。
【数据】菌株:OE-aat、OE-fimA、OE-ecpD、OE-proQ、OE-ecpA、OE-fimH;基因上调倍数:aat 1620.1倍、fimA 74.4倍、ecpA 58.1倍、proQ 37.8倍、ecpD 305.3倍、fimH 914.7倍;显著性:p < 0.001;其他:原文未详述
3.2 黏附素基因过表达对大肠杆菌生长特性的影响
图2a 显示了亲本菌株与黏附素基因过表达菌株的生长曲线。在过表达 aat、fimA、ecpA、proQ、ecpD 和 fimH 的重组菌株与亲本菌株之间,未观察到生长速率的显著差异(p < 0.05)。这些结果表明,黏附素基因过表达未对大肠杆菌产生可检测的代谢负担或生长缺陷。此前研究提示,除影响初始黏附、微菌落形成和胞外聚合物产生外,生物被膜稳定性还可通过代谢调控和群体感应间接受到细菌生长速率的影响(Borges et al., 2016)。因此,由于工程菌株表现出与亲本菌株相当的生长特性,后续黏附和生物被膜形成的差异可主要归因于黏附素基因过表达,而非生长性能的变化。
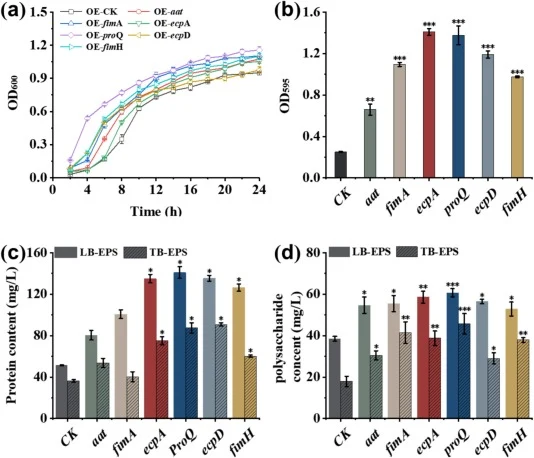
图2b 显示,与亲本菌株相比,所有黏附素基因过表达菌株均表现出显著增强的成膜能力。具体而言,过表达 aat、fimA、ecpA、proQ、ecpD 和 fimH 的菌株生物被膜产量分别比亲本菌株增加 263.88%、438.28%、563.88%、550.36%、476.84% 和 389.48%(p < 0.001)。其中,ecpA 和 proQ 过表达带来的增强最为显著。观察到的改善可归因于这些基因在黏附和生物被膜发育中的不同功能角色。aat 基因编码细胞间黏附与信号相关蛋白,其过表达增强细胞间相互作用并促进细菌聚集(Amar et al., 2021)。ecpA 和 ecpD 基因参与胞外蛋白组装与分泌;其过表达增加基质相关蛋白的产生,促进表面附着和生物被膜稳定(Solh et al., 2023)。fimA 和 fimH 基因编码菌毛的关键结构组分,介导细菌对生物和非生物表面的黏附。这些基因的表达增强已被证明可促进初始附着及随后的生物被膜形成(Pour et al., 2024)。此外,proQ 过表达可能通过运动-固着转换的转录后调控增强生物被膜形成。具体而言,proQ 可能减弱 flhDC 依赖性鞭毛调控,同时偏向 pgaABCD 等基质相关途径以及可能的 csgD 相关生物被膜程序(Fukui et al., 2025)。这种调控转变与本研究中观察到的 EPS 积累增加和运动性改变一致。总之,这些结果表明黏附基因过表达有效增强生物被膜形成,其中 ecpA 和 proQ 效果最强。
【数据】生物被膜增幅:aat 263.88%、fimA 438.28%、ecpA 563.88%、proQ 550.36%、ecpD 476.84%、fimH 389.48%;显著性:p < 0.001;生长速率差异:p < 0.05;其他:原文未详述
3.3 基因过表达对大肠杆菌生物被膜组成的影响
图2c-d 显示了黏附素基因过表达对重组大肠杆菌 EPS 产量的影响。与亲本菌株相比,ecpA 和 proQ 过表达菌株的 LB-EPS 蛋白含量分别增加 110.18% 和 119.52%(p < 0.05),TB-EPS 蛋白水平分别增加 155.67% 和 166.59%(p < 0.05)。类似地,胞外多糖含量显著升高。在 ecpA 和 proQ 过表达菌株中,LB-EPS 多糖水平分别增加 52.22% 和 57.59%(p < 0.05),而 TB-EPS 多糖水平分别增加 117.09% 和 155.73%(p < 0.05)。这些结果表明,黏附素基因过表达显著增强了 EPS 中的蛋白质和多糖组分。EPS 通过提供黏附表面、结构支架、营养储库和环境胁迫保护,在生物被膜发育中起关键作用(Caro-Astorga et al., 2020)。LB-EPS 与 TB-EPS 表现出不同的结构和功能特征。LB-EPS 组织松散,主要定位在细胞外表面,促进初始表面附着、细胞间通讯和营养扩散(Zhao et al., 2015)。相比之下,TB-EPS 具有致密且高黏度的结构,与细胞表面紧密结合,在生物被膜成熟过程中贡献机械强度、抗剪切性和长期稳定性(Bezawada et al., 2013; Shinde et al., 2025)。TB-EPS 中观察到更高的蛋白质丰度,提示结构强化增强,而 LB-EPS 更活跃地参与早期黏附和代谢交换。EPS 中的蛋白质作为结构支架,介导与胞外 DNA 和多糖的交联,从而维持生物被膜的机械完整性(Kundukad et al., 2025)。黏附素通过增强细胞间和细胞-表面相互作用进一步促进微菌落形成。同时,胞外多糖增强基质内聚力,并可在营养受限条件下作为碳储备(Abu Sayem et al., 2011)。因此,过表达菌株中观察到的胞外蛋白和多糖分泌增加,可能加速了初始黏附、强化了生物被膜结构并改善了环境耐受性。总之,这些发现表明黏附素基因过表达刺激 EPS 产生,从而促进稳健的生物被膜形成。
【数据】LB-EPS蛋白增幅:ecpA 110.18%、proQ 119.52%;TB-EPS蛋白增幅:ecpA 155.67%、proQ 166.59%;LB-EPS多糖增幅:ecpA 52.22%、proQ 57.59%;TB-EPS多糖增幅:ecpA 117.09%、proQ 155.73%;显著性:p < 0.05;其他:原文未详述
3.4 基因过表达对重组大肠杆菌菌落行为的影响
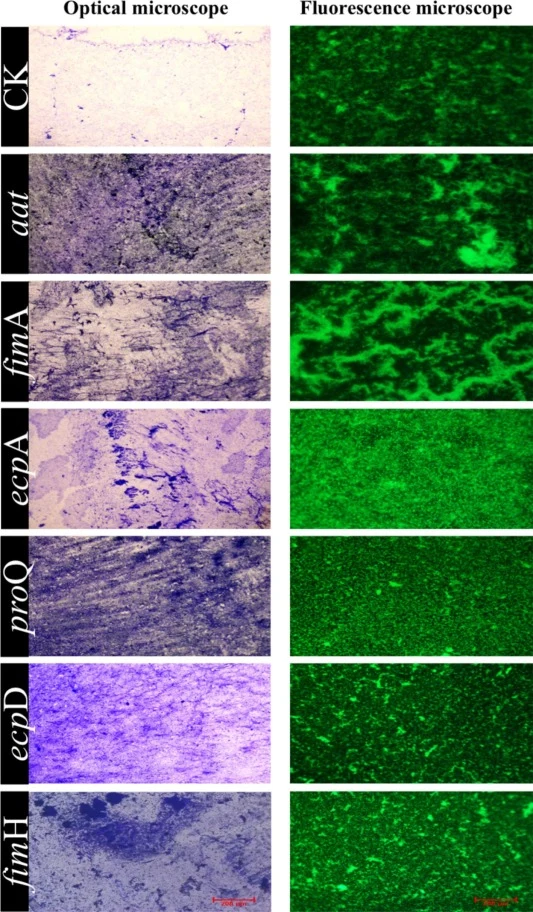
图3 显示,结晶紫染色表明亲本菌株大肠杆菌 rhaB1-ΔN 产生的生物被膜颜色较浅、紫色分布分散、聚集较少。黏附素基因过表达与菌株信号显著升高相关,导致明显的聚集和更致密的生物被膜结构。
【数据】染色方法:结晶紫染色;其他:原文未详述
3.5 黏附素基因过表达菌株的运动性及相应重组大肠杆菌生物被膜催化剂的酶学性质
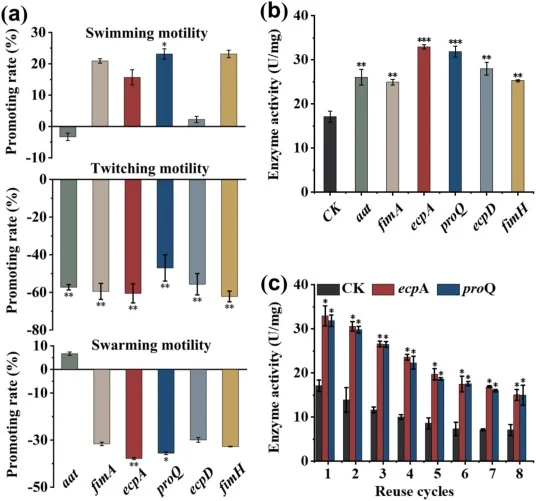
图4 展示了黏附素基因过表达菌株的运动性及相应重组大肠杆菌生物被膜催化剂的酶学性质。
【数据】原文未详述
3.6 黏附素基因过表达菌株形成生物被膜催化剂的条件优化
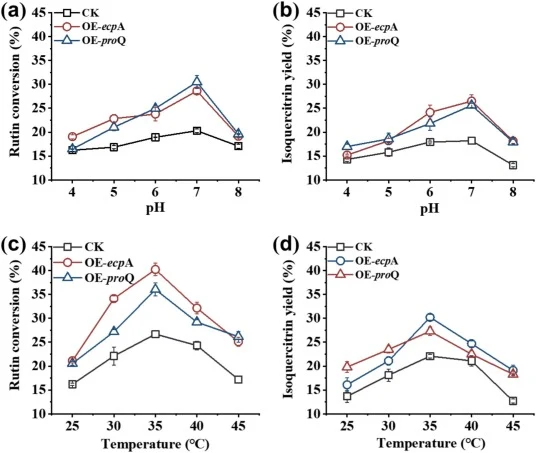
图5 展示了黏附素基因过表达菌株形成生物被膜催化剂的条件优化,包括 pH 对芦丁转化率的影响(图5a)、pH 对异槲皮苷产量的影响(图5b)、温度对芦丁转化率的影响(图5c)以及温度对异槲皮苷产量的影响(图5d)。
【数据】原文未详述
3.7 黏附素基因过表达菌株生物被膜的催化效率与水解动力学分析
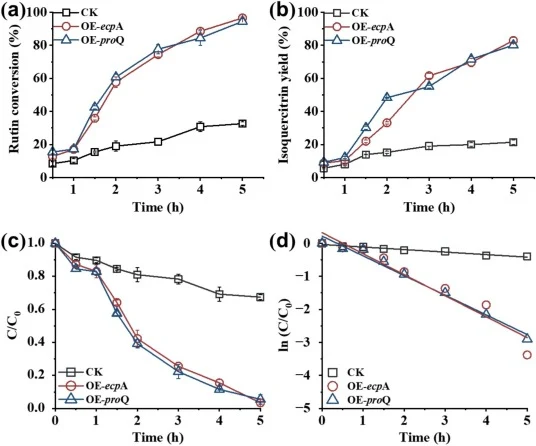
图6 分析了黏附素基因过表达菌株生物被膜的催化效率与水解动力学。图6a 显示黏附素基因过表达菌株形成的生物被膜提高了芦丁转化率,图6b 显示其提高了异槲皮苷产量。
【数据】原文未详述
讨论与解读
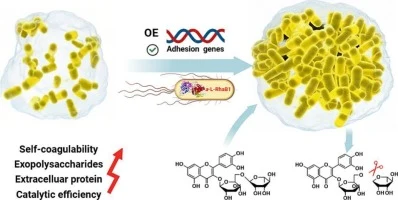
本研究通过内源性过表达黏附素基因对重组大肠杆菌进行工程改造,将其生物学特性与成膜能力同亲本菌株进行比较,从而筛选出成膜能力更优的重组菌株。黏附素过表达增强了细胞黏附、促进了生物被膜形成,并减少了游离细胞数量。研究进一步表征了生物被膜结构与理化性质,并引入亲水性聚氨酯纤维作为载体以支持生物被膜催化。随后,将这些生物被膜应用于芦丁向异槲皮苷的转化。总体而言,黏附素基因过表达通过增强细菌黏附强化了生物被膜的稳定性与结构完整性,从而提高了催化效率。
从合成生物学视角看,该策略的亮点在于"靶点前置"——不依赖群体感应等全局调控网络,而是直接过表达黏附素基因这一决定可逆/不可逆附着转换的关键节点,因而调控更精准、代谢负担更小(生长曲线无显著差异即为佐证)。ecpA 与 proQ 的组合效应提示,胞外蛋白组装与转录后运动-固着转换可能是协同增强成膜的两个独立杠杆。局限方面,原文未详述各基因过表达对长期传代稳定性的影响,也未给出载体重复使用批次数据;此外,六基因逐一过表达而非组合过表达,是否多基因叠加能进一步突破成膜上限,仍是开放问题。
参考来源
期刊:Bioresource Technology, 2026
DOI: 10.1016/j.biortech.2026.135231
DOI: 10.1016/j.biortech.2026.135231