来源:Improved accumulation of organic acids and amino acids in Saccharomyces cerevisiae by GREACE and its application in enhancement of kokumi and umami in soy sauce(International Journal of Gastronomy and Food Scien)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
酱油的鲜味与浓厚感(kokumi)是衡量其品质的核心指标,而有机酸与氨基酸是决定这些风味特征的关键物质基础。本研究采用基因组复制工程辅助连续进化(GREACE)技术,结合梯度高盐胁迫筛选,对酿酒酵母G100进行定向进化,获得了一株质粒已消除、非转基因的进化菌株G1.6-15。该菌株的琥珀酸、氨基酸态氮和总酸浓度分别较亲本提高146.1%、47.2%和57.4%。经5 L发酵罐补料分批发酵60 h,生物量和琥珀酸产量分别达57.8 g/L和9.6 g/L。制备的复合发酵源风味增强剂CFE-G1.6-15在酱油中展现出优于纯琥珀酸的呈味增强效果,并揭示了胞外有机酸主导浓厚感、氨基酸主导鲜味与甜味的协同机制。
研究背景
酱油是亚洲及全球广泛消费的传统调味品,其风味主要由咸、鲜、甜及酱香构成。近年来,消费者对味觉复杂度的需求上升,鲜味与浓厚感成为调味品领域的研究焦点。鲜味是酱油的核心风味,能突出酱香、提升整体适口性;浓厚感则是一种调节性味觉,本身并非基本味,而是通过激活味觉细胞中的钙敏感受体(CaSR),增强鲜味、甜味和咸味的感知。谷胱甘肽、γ-谷氨酰肽及某些有机酸已被鉴定为具有CaSR激动活性的浓厚感物质。酿酒酵母在发酵过程中产生的有机酸和氨基酸是酱油风味的重要贡献者。然而,如何在非转基因前提下高效提升酵母中有机酸与氨基酸的积累水平,并将其应用于酱油风味增强,仍是一个亟待解决的产业问题。本研究通过GREACE技术结合高盐筛选,定向进化酿酒酵母,以提高琥珀酸等有机酸和风味氨基酸的产量,并系统评价其在酱油中的呈味增强效果。
研究方法
2.1 酵母与培养基
本实验室保藏的酿酒酵母G100(原用于葡萄酒发酵)作为出发菌株。质粒YEP352-PAK-POL3/01/L612M由前期研究构建并保藏于本实验室。YPD培养基(10 g/L酵母提取物、20 g/L蛋白胨、20 g/L葡萄糖,必要时加20 g/L琼脂)用于酿酒酵母培养,条件为30 °C、200 rpm、24 h。筛选培养基(20 g/L葡萄糖、10 g/L酵母提取物、20 g/L蛋白胨、1–1.8 M NaCl、0.2 g/L G418)用于提供高盐环境以筛选进化酵母菌株。发酵培养基(60 g/L葡萄糖、5 g/L酵母提取物、10 g/L蛋白胨、5 g/L KH2PO4、1 g/L MgSO4·7H2O)用于酵母发酵。
【数据】菌株:酿酒酵母G100;培养基:YPD(10 g/L酵母提取物、20 g/L蛋白胨、20 g/L葡萄糖);培养温度:30 °C;转速:200 rpm;时间:24 h;筛选培养基NaCl浓度:1–1.8 M;G418浓度:0.2 g/L;发酵培养基葡萄糖:60 g/L
2.2 GREACE技术
#### 2.2.1 质粒转化
将质粒YEP352-PAK-POL3/01/L612M从大肠杆菌BL21中提取,提取前于37 °C、180 rpm培养12 h,使用质粒提取试剂盒(OMEGA)提取,然后通过电击转化法转入酿酒酵母G100。电击条件:2 mm电击杯、3 kV、200 Ω、5 μF。电击后,细胞于30 °C、200 rpm培养2 h,取100 μL培养物涂布于含G418的YPD琼脂平板,28 °C培养2天。挑取单菌落进行菌落PCR扩增KanMX基因,使用引物KanMX-F和KanMX-R(信息见表S1)。PCR反应体系(20 μL)包含10 μL 2×ExTaq DNA聚合酶、8 μL无菌水和1 μL正向及反向引物各一。PCR条件:95 °C预变性5 min,随后35个循环(95 °C 30 s、67 °C退火30 s、72 °C延伸2 min),最后72 °C终延伸10 min。PCR产物经琼脂糖凝胶电泳验证,并由生工生物(上海)进行基因测序。
【数据】质粒:YEP352-PAK-POL3/01/L612M;大肠杆菌培养温度:37 °C;转速:180 rpm;时间:12 h;电击条件:2 mm电击杯、3 kV、200 Ω、5 μF;电击后恢复培养:30 °C、200 rpm、2 h;涂板量:100 μL;平板培养温度:28 °C;时间:2天;PCR体系:20 μL;PCR循环数:35;退火温度:67 °C
#### 2.2.2 适应性进化与酵母筛选
前期研究表明,酿酒酵母的琥珀酸生产能力与其对渗透压的耐受能力密切相关(Tang, 2021)。因此,以NaCl浓度作为选择压力。携带突变因子的构建酵母作为起始群体,用于四条独立的平行适应性进化路线(命名为R1、R2、R3和R4)。每条路线中,初始培养物接种至含1 M NaCl的10 mL YPD培养基中,28 °C培养48 h。随后,细胞以1%(v/v)接种比例连续转接至含1 M NaCl的新鲜YPD培养基中,每次转接培养2天。四条路线均施加相同选择压力(NaCl浓度)、相同转接策略(1%接种比例、每次转接培养2天)和相同重复方案(每个盐浓度梯度三个技术重复)。当培养后OD600值高于亲本菌株并趋于稳定(定义为连续三次转接OD600变化小于5%)时,将酵母细胞转接至含1.2 M NaCl的YPD培养基中,重复上述操作。随后,YPD培养基中盐浓度逐步提高至1.4 M、1.6 M和1.8 M。在每个盐浓度水平,当OD600值达到平台期(连续三次转接变化<5%)时,认为该盐浓度下的进化完成。每个盐浓度梯度设置三个平行重复。每次转接结束时,收集各盐浓度下的进化酵母细胞,测定其生物量和琥珀酸浓度。
【数据】起始NaCl浓度:1 M;初始培养体积:10 mL;初始培养温度:28 °C;时间:48 h;转接接种比例:1%(v/v);每次转接培养时间:2天;盐浓度梯度:1.0、1.2、1.4、1.6、1.8 M;稳定性判定标准:连续三次转接OD600变化<5%;每梯度重复数:3
#### 2.2.3 质粒消除
将进化细胞群体接种至无G418的YPD液体培养基中连续传代以消除突变因子。反复培养后,取100 μL培养物涂布于含或不含G418的YPD琼脂平板。若在含G418的YPD琼脂平板上未观察到生长,则认为质粒已消除。为确认这一点,按2.2.1节所述进行KanMX基因、突变基因(POL3/01/L612M)、PGK1启动子和ADH1终止子的PCR扩增。扩增POL3/01/L612M基因、PGK1启动子和ADH1终止子的引物见表S1。PCR体系和条件与2.2.1节类似。若KanMX基因、POL3/01/L612M基因、PGK1启动子和ADH1终止子片段均未通过PCR观察到,且含G418的YPD平板上无菌落生长,则认为质粒已完全消除。鉴于YEP352-PAK-POL3-01/L612M质粒依赖KanMX标记在酿酒酵母中维持,且携带的2μ复制起点在无选择压力下本身不稳定,选择标记的丢失表明质粒骨架已消除。为进一步验证,随机选取20个单菌落进行PCR扩增检测。
【数据】涂板量:100 μL;G418浓度:0.2 g/L;验证单菌落数:20个;检测基因:KanMX、POL3/01/L612M、PGK1启动子、ADH1终止子
#### 2.2.4 遗传稳定性分析
将琥珀酸产量较高的进化酵母菌株在新鲜YPD液体培养基中连续传代50次。每传代10次后进行摇瓶发酵,测定琥珀酸浓度。上述实验设置三个平行重复。
【数据】传代次数:50次;检测频率:每10次传代;平行重复数:3
2.3 分批与补料分批发酵
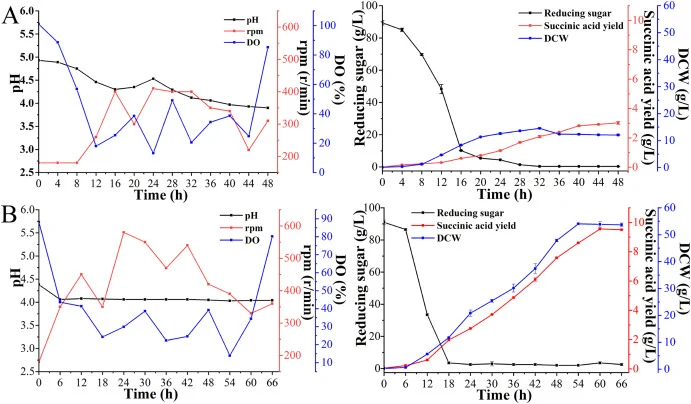
发酵在5 L搅拌罐生物反应器(Parallel Bioreactor T&J-Intelli-Ferm,上海,中国)中进行,工作体积3 L。发酵培养基含葡萄糖60 g/L、酵母提取物5 g/L、蛋白胨10 g/L、KH2PO4 5 g/L、MgSO4·7H2O 1 g/L。培养基原位灭菌,121 °C、20 min。葡萄糖单独灭菌并无菌添加。反应器接种10%(v/v)种子培养物。发酵条件控制在30 °C,通气量1 vvm。溶解氧(DO)使用极谱式DO传感器测定,通过自动调节搅拌转速300–800 rpm维持DO在30%以上。pH被监测但不控制。补料分批发酵中,初始葡萄糖耗尽后,间歇补加浓缩葡萄糖溶液(400 g/L)以维持残余葡萄糖浓度约2 g/L。每4–6 h取样分析细胞生长、葡萄糖消耗和琥珀酸产量。
【数据】生物反应器:5 L搅拌罐;工作体积:3 L;发酵培养基:葡萄糖60 g/L、酵母提取物5 g/L、蛋白胨10 g/L、KH2PO4 5 g/L、MgSO4·7H2O 1 g/L;灭菌条件:121 °C、20 min;接种量:10%(v/v);温度:30 °C;通气量:1 vvm;DO维持:>30%;搅拌转速:300–800 rpm;补料葡萄糖浓度:400 g/L;残余葡萄糖维持:约2 g/L;取样间隔:4–6 h
2.4 细胞生长与葡萄糖浓度测定
细胞生长通过紫外-可见分光光度计(MAPADA UV-1100)测定600 nm吸光度(OD600)监测。细胞干重(DCW)通过离心10 mL培养液(8000 rpm、10 min),用蒸馏水洗涤沉淀两次,105 °C烘干至恒重测定。残余葡萄糖浓度使用生物传感器分析仪(SBA-40D,山东省科学院生物研究所,中国)测定。
【数据】离心条件:8000 rpm、10 min;烘干温度:105 °C;OD测定波长:600 nm;葡萄糖测定仪器:SBA-40D
2.5 CFE制备
发酵结束时,培养液于8000 rpm离心20 min,分离上清液(胞外组分)和酵母细胞沉淀。细胞沉淀用蒸馏水洗涤两次以去除残余胞外成分,重悬于水中至浓度10%(w/v)。通过调节pH至5.5,50 °C温和搅拌孵育24 h诱导自溶,释放胞内氨基酸、肽和核苷酸。自溶后,裂解液于8000 rpm离心20 min,所得上清液(胞内水解物)与先前收集的胞外发酵上清液合并,重新构成原始发酵体积。该合并全相提取物在60 °C真空浓缩以减小体积,并使用冻干机(Telstar LYOBETA 4 PS,西班牙)冻干获得最终CFE粉末。需要指出的是,该全相制备策略专门设计用于同时保留胞外有机酸(主要为琥珀酸)和胞内含氮化合物。
【数据】离心条件:8000 rpm、20 min;细胞重悬浓度:10%(w/v);自溶pH:5.5;自溶温度:50 °C;自溶时间:24 h;浓缩温度:60 °C;冻干设备:Telstar LYOBETA 4 PS
研究结果
3.1 通过GREACE开发氨基酸和有机酸增强的进化酵母
GREACE在酵母工程中的优势在于其将连续诱变与筛选相结合的策略,能够高效积累有益遗传修饰,从而实现目标性状的定向稳定改良(Xu et al., 2018)。本研究采用的GREACE策略通过突变质粒将突变频率提高237倍,诱导分布于多条染色体的全基因组突变,从而促进高盐适应性进化过程中酵母菌株变异的积累,显著提高获得携带有益突变菌株的概率。此外,前期研究表明高渗透压显著抑制酵母生长和琥珀酸合成(Valle et al., 2022)。为确认酵母耐盐性与琥珀酸产量之间的关系,选取了五株具有不同琥珀酸积累能力的酵母菌株,检测其在不同盐浓度下的生长情况。如图S1所示,在0.8–1.2 M NaCl胁迫下,耐盐能力较强的酵母菌株表现出相对较高的琥珀酸积累,而耐盐能力较弱的酵母菌株琥珀酸合成水平较低。这表明增强耐盐性可能是提高酵母琥珀酸合成能力的有效策略。因此,本研究采用基于GREACE的实验室适应性进化策略,结合梯度高盐筛选,对酿酒酵母G100进行迭代改造,以获得琥珀酸合成能力提高的进化酵母菌株。携带突变因子的重组质粒YEP352-PAK-POL3-01/L612M被转入酿酒酵母G100,在约1400 bp处观察到特异性目标条带,与KanMX基因一致(图S2)。鉴于单一路线适应性进化易导致菌株性状偏倚,且随机突变可能降低目标菌株的筛选效率,为最小化群体瓶颈或随机突变导致偏倚结果的风险,从同一出发群体启动了四条独立平行进化路线(R1–R4),以G100作为对照。四条平行进化路线在整个进化过程中维持相同条件(相同培养基组成、温度、搅拌速度、转接比例和培养时间),以确保路线间观察到的差异源于随机突变事件而非实验变量。为选择最佳进化路线进行进一步分析,应用了预设的两步筛选标准。首先,选择能在最高盐浓度下维持生长的进化群体。其次,测定上述标准筛选出的进化群体在不同盐浓度下的琥珀酸产量,选择琥珀酸产量较高的进化群体进行进一步筛选。
如图1A所示,四条进化路线的酵母菌株在不同盐浓度下的生长情况表明,R1、R2、R3和R4中进化酵母菌株的耐盐性存在显著差异。在1.0 M NaCl下,R2、R3和R4的酵母菌株生长较对照显著改善,而R1酵母菌株生长较弱。尽管R1酵母菌株在1.0 M下生长相对较弱,但当盐浓度提高至1.2 M、1.4 M、1.6 M和1.8 M时,其生长大幅增强。R1酵母菌株在1.6 M和1.8 M盐浓度下培养后OD600值显著高于亲本菌株,表明该进化路线中的酵母菌株在高盐下具有更好的生长性能,推测其具有更强的耐盐能力。尽管R3酵母菌株在1.4 M盐浓度下生长优于对照,但随着盐浓度进一步升高,其生长逐渐减弱。当NaCl浓度达到2.0 M时,R2和R4的酵母菌株及亲本G100均无法生长,而R1仍保持一定生长能力,表明其在极端高盐环境下具有独特的胁迫耐受优势。因此,基于上述预设标准,选择进化路线1中的酵母菌株进行进一步分析。
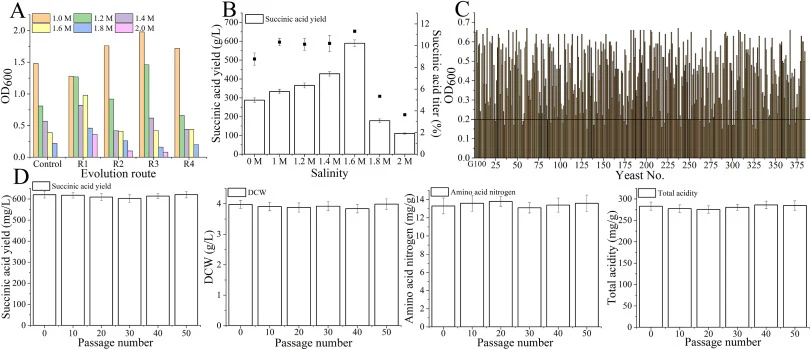
为研究R1中酵母菌株在进化过程中琥珀酸合成能力的动态变化,收集不同盐浓度下R1的进化群体进行发酵实验,测定其琥珀酸产量。如图1B所示,R1中酵母菌株的耐盐性和相应琥珀酸产量在盐浓度升高的进化过程中均逐渐增加。进化酵母菌株的最高琥珀酸产量在1.6 M NaCl下达到589.14 mg/L,相应效价为11.32%。然而,当盐浓度进一步升高至1.8 M或2.0 M时,进化菌株的琥珀酸效价和产量均显著下降。尽管如此,R1群体仍被认为最适合进行进一步单菌落筛选。这一决定基于两点考虑。第一,初始盐驱动进化阶段的主要目标是产生具有足够高遗传多样性和胁迫耐受性的群体,而非直接最大化琥珀酸产量。如图S1所示,不同酵母菌株间耐盐性与琥珀酸积累能力呈正相关,使盐浓度成为识别富集有益突变群体的实用高通量筛选代理指标。第二,1.8 M下琥珀酸产量的下降可能反映极端渗透压造成的代谢负担,而非菌株内在生产能力的丧失。一旦群体通过逐步提高盐浓度富集了耐盐变体,随后在1.6 M盐浓度下(观察到最高琥珀酸产量)进行单菌落筛选,可直接选择高产酵母分离株。该策略有效平衡了遗传多样性产生的需求与鉴定高琥珀酸生产者的目标。因此,将1.6 M下培养的进化酵母菌株在无抗生素压力的YPD培养基中连续培养以消除突变因子。如图S3所示,所有随机选取的20个单菌落中均未在凝胶中观察到KanMX或POL3-01/L612M基因的相应片段,表明质粒已成功消除。首先在96孔板中以1.6 M盐浓度培养384个单菌落,测定其生长情况并与亲本G100比较。结果显示,241个单菌落表现出更好的生长状况(图1C)。由于琥珀酸浓度测定费时费力,选取生长状况最好的30个单菌落进行摇瓶发酵。如表1所示,分析其发酵液中琥珀酸浓度后,进化菌株G1.6-15的琥珀酸浓度达到620.1 mg/L,较亲本G100菌株(252 mg/L,p < 0.05)提高146.1%。此外,测定并比较了上述30个单菌落粗酵母细胞裂解液中氨基酸态氮和总酸浓度。大多数进化酵母菌株的氨基酸态氮浓度为10–13 mg/g,其中……
【数据】突变频率提升:237倍;耐盐筛选NaCl范围:0.8–1.2 M;平行进化路线数:4条;盐浓度梯度:1.0、1.2、1.4、1.6、1.8、2.0 M;R1最高琥珀酸产量:589.14 mg/L(1.6 M NaCl);相应效价:11.32%;筛选单菌落数:384个;生长改善单菌落数:241个;摇瓶发酵单菌落数:30个;G1.6-15琥珀酸浓度:620.1 mg/L;亲本G100琥珀酸浓度:252 mg/L;提高幅度:146.1%(p < 0.05);氨基酸态氮浓度范围:10–13 mg/g
3.2 分批与补料分批发酵
3.3 CFE组成比较分析
3.4 酱油感官评价
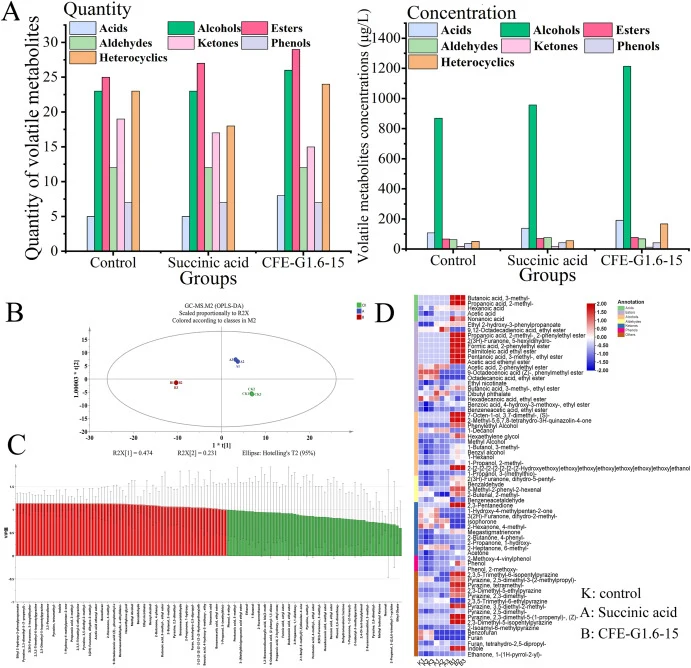
3.5 挥发性风味化合物分析
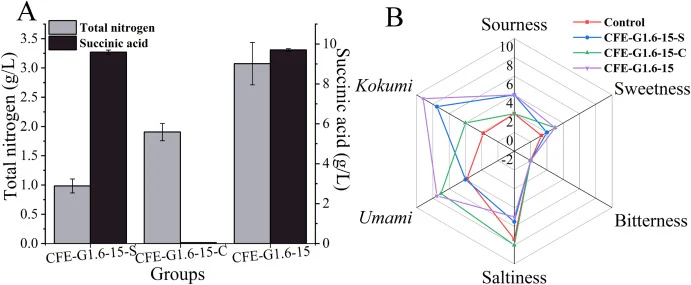
3.6 分级实验与呈味机制解析
讨论与解读
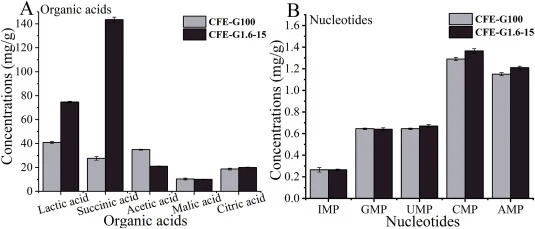
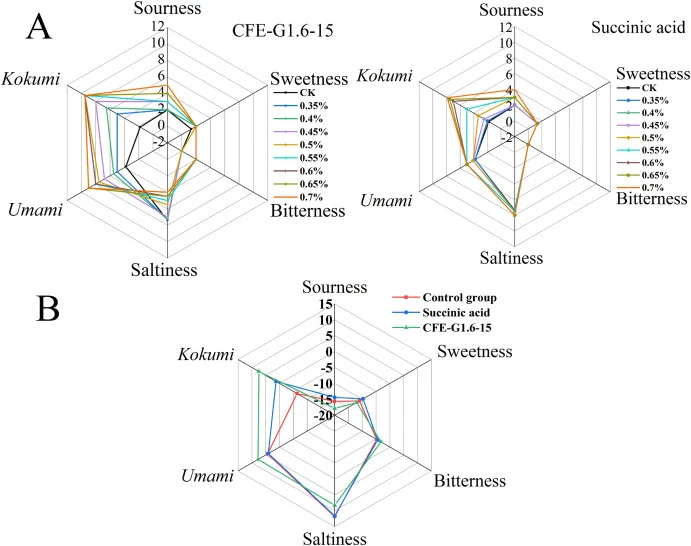
本研究通过GREACE技术结合梯度高盐筛选,成功获得了一株质粒已消除、非转基因的酿酒酵母G1.6-15,其有机酸和风味氨基酸产量显著提升。在5 L生物反应器中补料分批发酵60 h,G1.6-15菌株实现了57.8 g/L生物量和9.6 g/L琥珀酸浓度。制备的CFE-G1.6-15相比CFE-G100展现出更优的组成特征,总游离氨基酸提高36.4%,琥珀酸浓度提高5.2倍。感官评价表明,CFE-G1.6-15显著增强了酱油的鲜味和浓厚感,同时降低了咸味感知。CFE-G1.6-15在较低浓度(0.45–0.5%)下即可产生与0.7%琥珀酸相当或更优的呈味增强效果,凸显了有机酸、氨基酸和核苷酸之间的协同效应。分级实验阐明,上清液主要贡献浓厚感,而水解细胞生物量提供鲜味和甜味。总体而言,CFE-G1.6-15源自质粒消除的非转基因菌株,是一种有前景且工业可行的天然风味增强剂。其非转基因状态有利于法规审批和消费者接受,而多代稳定的表型支持其在酱油生产中的实际可靠性。
编译者解读:该研究的方法学亮点在于将GREACE诱变与高盐胁迫筛选巧妙耦合——利用耐盐性与琥珀酸积累的正相关性作为高通量筛选代理指标,避免了对大量突变体逐一测定代谢产物产量的繁琐工作。质粒消除步骤确保了最终菌株的非转基因属性,这对食品工业的法规合规至关重要。然而,研究也存在局限:琥珀酸效价(9.6 g/L)距工业经济性仍有差距,且CFE制备涉及自溶和冻干等能耗较高的工艺环节。未来可考虑进一步优化发酵工艺或探索更低成本的CFE制备方式,以推动该技术从实验室向产业化过渡。
参考来源
期刊:International Journal of Gastronomy and Food Science, 2026
DOI: 10.1016/j.ijgfs.2026.101620
DOI: 10.1016/j.ijgfs.2026.101620