来源:Enhanced cellulosic ethanol production by increasing p-benzoquinone tolerance of Saccharomyces cerevisiae in adaptive evolution(Bioresource Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
木质纤维素预处理过程中产生的木质素衍生抑制剂对微生物发酵构成严重威胁,其中对苯醌(p-benzoquinone)的毒性远高于典型酚醛类化合物。本研究通过对酿酒酵母DQ1进行八个阶段的渐进式适应性进化,获得了耐受性显著提升的进化菌株ZX100。在生物脱毒玉米秸秆水解液中,ZX100的乙醇产量约为亲本菌株的2.7倍;在添加100 mg/L对苯醌的条件下,乙醇得率达0.43 g/g糖,体积乙醇产率达1.0 g/L/h。转录组分析揭示了硫醇代谢、膜组织、ATP代谢和己糖转运相关基因的协同上调。
研究背景
木质纤维素生物质是微生物生产第二代生物乙醇的可持续原料。稀酸预处理虽能有效破坏生物质抗降解屏障,但过程中碳水化合物和木质素降解会生成弱酸、呋喃醛和木质素衍生芳香族化合物等多种抑制性副产物。这些抑制剂通过抑制细胞生长、降低糖利用率和延长滞后期来损害微生物发酵性能。
生物脱毒法利用特定微生物去除抑制剂,废水产生少、可发酵糖损失小。但该方法对弱酸和呋喃醛去除效果显著,对木质素衍生抑制剂(如对苯醌和酚醛)的去除效率却十分有限。对苯醌在稀酸预处理和水解液中广泛存在,其高亲电性的醌结构和共轭二酮体系使其对酿酒酵母的毒性远高于典型的酚醛类化合物。完全去除木质素衍生抑制剂难度大,过度脱毒又会增加废水和工艺成本。因此,提升发酵菌株自身对苯醌的耐受能力,是降低脱毒成本、提高纤维素乙醇经济性的关键策略。
研究方法
2.1 原料及其生物炼制加工
玉米秸秆于2025年采自中国河南省。玉米芯残渣购自山东龙力生物科技股份有限公司(中国山东省)。水稻秸秆和小麦秸秆采自中国山东省,芦苇秆采自中国河北省。所有采集的生物质样品均用水彻底洗涤以去除杂质和盐分,随后在60 ℃烘箱中干燥。所有原料均参照先前报道的方法(Yan et al., 2022)采用稀硫酸预处理。简言之,将玉米秸秆与硫酸溶液混合,硫酸负载量为4.0 mg H₂SO₄/g干物质(DM)。混合物随后在175 ℃下孵育5分钟。预处理后,用20%(w/w)Ca(OH)₂悬浮液将浆液中和至pH 5.5。预处理后的生物质参照先前研究(Han et al., 2023)以4 mg蛋白/g原料的负载量使用纤维素酶进行酶解。所得水解液在9,168 × g下离心10分钟以去除不溶性固体。脱毒处理时,参照先前描述(Han et al., 2023),用Amorphotheca resinae ZN1处理原始玉米秸秆水解液以去除木质纤维素衍生抑制剂。生物脱毒后,糠醛、5-羟甲基糠醛(HMF)和乙酸降至检测限以下。相比之下,木质素衍生抑制剂对苯醌仅被部分去除,残留浓度为92.3 mg/L。
【数据】原料:玉米秸秆、玉米芯残渣、水稻秸秆、小麦秸秆、芦苇秆;硫酸负载量:4.0 mg H₂SO₄/g DM;预处理温度:175 ℃;预处理时间:5 min;中和pH:5.5;Ca(OH)₂浓度:20%(w/w);纤维素酶负载量:4 mg蛋白/g原料;离心条件:9,168 × g,10 min;脱毒菌株:Amorphotheca resinae ZN1;对苯醌残留浓度:92.3 mg/L
2.2 菌株与培养基
酿酒酵母DQ1是通过实验室诱变筛选获得的耐热和耐抑制剂突变株,已保藏于中国普通微生物菌种保藏管理中心(CGMCC,中国北京),保藏编号为CGMCC 2528(Chu et al., 2012; Qureshi et al., 2015)。DQ1此前已应用于木质纤维素乙醇发酵,在木质纤维素衍生抑制剂胁迫和高温条件下表现出稳健的性能(Chu et al., 2012; Yan et al., 2025)。进化菌株命名为酿酒酵母ZX100。种子培养时,将酵母菌株接种至含20 g/L葡萄糖、10 g/L酵母提取物和10 g/L蛋白胨的YPD(酵母提取物蛋白胨葡萄糖)培养基中。培养物在30 ℃、150 rpm下振荡培养12 h。所得种子培养液以10%(v/v)接种量转接至发酵培养基中,在30 ℃、150 rpm下培养。适应性进化和对苯醌耐受性实验中,细胞在含40 g/L葡萄糖并添加不同浓度对苯醌的YPD培养基中培养。对苯醌转化实验中,两株菌均接种至添加100 mg/L对苯醌的YPD培养基中。
【数据】菌株:酿酒酵母DQ1(CGMCC 2528)、进化菌株ZX100;种子培养基:YPD(20 g/L葡萄糖、10 g/L酵母提取物、10 g/L蛋白胨);种子培养温度:30 ℃;转速:150 rpm;种子培养时间:12 h;接种量:10%(v/v);耐受实验葡萄糖浓度:40 g/L;对苯醌转化实验浓度:100 mg/L
2.3 试剂
所有化学试剂均由麦克林生化科技有限公司(中国上海)提供。本研究所用商业纤维素酶制剂为Cellic® CTec3 HS,购自诺维信(中国北京)。
【数据】试剂供应商:麦克林生化科技有限公司;纤维素酶:Cellic® CTec3 HS(诺维信)
2.4 适应性进化
酿酒酵母DQ1的适应性进化在添加40 g/L葡萄糖和不同浓度对苯醌的YPD培养基中,采用单一进化群体进行。适应性进化过程包括八个连续阶段,在含20 mL培养基的100 mL锥形瓶中进行。每24 h在30°C、150 rpm振荡下进行连续传代培养。第一阶段,菌株在含80 mg/L对苯醌的培养基中以10%(v/v)接种量培养。待生长稳定后,将菌株依次转接至第二阶段和第三阶段,对苯醌浓度分别提高至100 mg/L和120 mg/L,同时保持相同接种量。第四阶段,对苯醌浓度进一步提高至140 mg/L,接种量调整为20%(v/v)。随后,第五至第八阶段分别在含140、160、180和200 mg/L对苯醌的培养基中进行,接种量始终维持在10%(v/v)。适应性进化过程中的细胞生长通过在每个转接点培养24 h后测定600 nm光密度(OD600)进行监测。进化过程结束时,取100 μL培养液进行梯度稀释(10⁻⁵‒10⁻⁶)并涂布于YPD琼脂平板。随机选取八个菌落进行表型评估,选择生长速率和对苯醌耐受性最高的菌株用于后续发酵实验。
【数据】进化阶段数:8个;培养基体积:20 mL;锥形瓶规格:100 mL;传代间隔:24 h;温度:30°C;转速:150 rpm;阶段I对苯醌浓度:80 mg/L;阶段II:100 mg/L;阶段III:120 mg/L;阶段IV:140 mg/L(接种量20%);阶段V:140 mg/L(接种量10%);阶段VI:160 mg/L;阶段VII:180 mg/L;阶段VIII:200 mg/L;接种量:10%(v/v)(阶段IV为20%);稀释梯度:10⁻⁵‒10⁻⁶;挑选菌落数:8个
2.5 进化菌株的对苯醌耐受性和纤维素乙醇发酵
为评估进化菌株酿酒酵母ZX100的对苯醌耐受性,将两株菌的种子培养液以相同初始OD600约2.0(对应约4 × 10⁷细胞/mL)接种至YPD培养基或生物脱毒玉米秸秆水解液中。YPD培养基中对苯醌浓度范围为0至200 mg/L。生物脱毒玉米秸秆水解液含有测试水解液中最高的对苯醌浓度,用作发酵底物。在指定时间点采集样品以评估发酵性能。
【数据】初始OD600:约2.0;初始细胞密度:约4 × 10⁷细胞/mL;YPD中对苯醌浓度范围:0–200 mg/L;发酵底物:生物脱毒玉米秸秆水解液
2.6 HPLC分析
葡萄糖、木糖、乙酸、糠醛、HMF和乙醇的浓度通过高效液相色谱(HPLC)分析,使用岛津LC-20AD系统(日本京都),配备示差折光检测器(RID-10A)和Aminex HPX-87H色谱柱(Bio-Rad,美国加州赫拉克勒斯)。色谱分离在65 ℃下进行,以5 mM H₂SO₄为流动相,流速0.6 mL/min,参照先前报道的方法(Yan et al., 2021)。对苯醌浓度使用反相HPLC系统(LC-20AT,岛津,日本京都)配备SPD-20A检测器,参照Yan et al.(2019)描述的方法测定。流动相A为0.1%(v/v)甲酸水溶液,流动相B为乙腈与异丙醇混合物(3:1,v/v)含0.1%(v/v)甲酸。洗脱程序如下:初始30%(v/v)B,9 min内升至40%,随后8 min内升至50%,然后在0.01 min内快速降至30%,最后在30%维持33 min。流速设定为0.25 mL/min,柱温维持在30 °C,检测波长为245 nm。所有实验均设三个平行,结果以平均值±标准差表示。两株菌在各对苯醌浓度下的统计学显著性采用Student's t检验评估。p值< 0.05视为统计学显著。
【数据】HPLC系统:岛津LC-20AD;检测器:RID-10A;色谱柱:Aminex HPX-87H;柱温:65 ℃;流动相:5 mM H₂SO₄;流速:0.6 mL/min;对苯醌检测系统:LC-20AT + SPD-20A;流动相A:0.1%甲酸水溶液;流动相B:乙腈:异丙醇(3:1,v/v)+0.1%甲酸;洗脱梯度:30%→40%(9 min)→50%(8 min)→30%(0.01 min)→30%(33 min);流速:0.25 mL/min;柱温:30 °C;检测波长:245 nm;平行数:3;显著性检验:Student's t检验;显著性阈值:p < 0.05
2.7 膜完整性和ROS分析
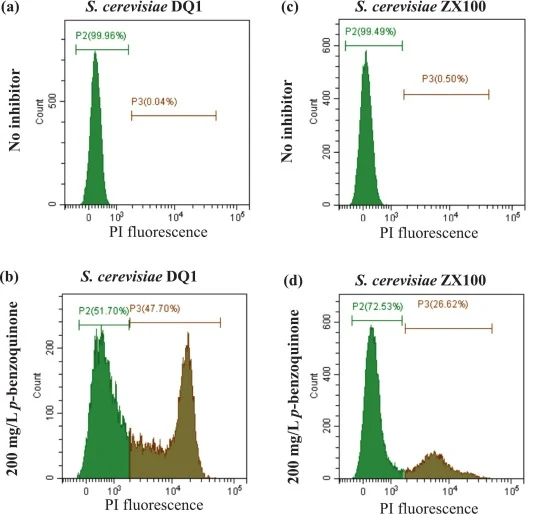
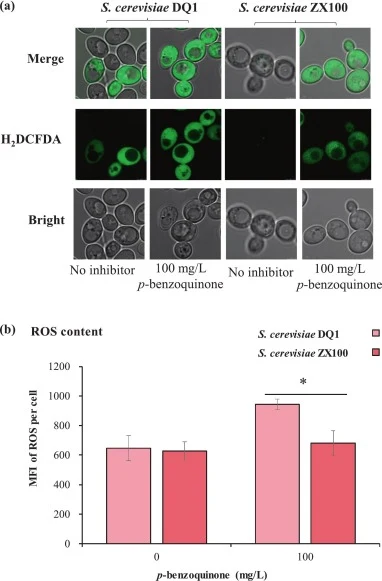
膜完整性评估时,酵母细胞首先培养4 h至细胞密度约1 × 10⁸细胞/mL。随后将细胞重悬于含200 mg/L对苯醌的磷酸盐缓冲液(PBS)中,孵育9 h。处理后,细胞用PBS洗涤两次,在黑暗中用10 μmol/L碘化丙啶(PI)染色15 min。随后使用CytoFLEX系统(贝克曼库尔特,美国加州布雷亚)配备488 nm激发激光和610/20 nm发射滤光片通过流式细胞术分析膜完整性。每个样品至少收集10,000个事件。数据处理使用CytExpert软件,根据前向和侧向散射参数排除细胞碎片。显示PI荧光的细胞视为膜损伤,无荧光的细胞归类为完整。计算PI阳性细胞百分比以量化膜损伤。酿酒酵母ZX100的荧光成像(原文此处中断)。
【数据】细胞培养时间:4 h;细胞密度:约1 × 10⁸细胞/mL;对苯醌浓度:200 mg/L;孵育时间:9 h;PBS洗涤次数:2次;PI浓度:10 μmol/L;染色时间:15 min;激发波长:488 nm;发射滤光片:610/20 nm;每样品收集事件数:≥10,000;流式细胞仪:CytoFLEX(贝克曼库尔特)
研究结果
3.1 对苯醌对酿酒酵母的抑制作用
根据先前研究,木质素衍生的对苯醌已在酸预处理木质纤维素原料(如玉米秸秆和小麦秸秆)中检测到,并对多种发酵微生物尤其是酿酒酵母表现出强烈抑制作用(Larsson et al., 2000; Stagge et al., 2015; Yan et al., 2019)。水解液中对苯醌浓度强烈依赖于原料类型、预处理强度、固体负载和脱毒条件。本研究中,稀酸预处理和高固体酶解后,不同木质纤维素水解液中对苯醌浓度范围为130至210 mg/L(图S1a)。对苯醌过度脱毒不仅导致额外废水产生,还增加工艺成本(He et al., 2016; Yan et al., 2019)。在含40 g/L葡萄糖和0–200 mg/L对苯醌的YPD培养基中进一步评估了对苯醌对酿酒酵母DQ1生长的抑制作用(图S1b)。在低于80 mg/L的浓度下,对苯醌对细胞生长仅有轻微抑制作用。与典型木质素衍生酚醛相比,对苯醌对酿酒酵母构成更严峻的挑战。在先前研究中,8 mM 4-羟基苯甲醛——三种代表性酚醛中测试的最具毒性单一化合物——仅抑制DQ1生长18.3%(Yan et al., 2025)。相比之下,本研究中100 mg/L对苯醌(约0.93 mM)导致68.5%的生长抑制,表明其基于摩尔浓度的毒性远高于前者。这些结果表明对苯醌对酿酒酵母表现出强烈的浓度依赖性抑制作用,抑制效果在80至100 mg/L之间急剧增加。在200 mg/L(约2 mM)时,对苯醌对酿酒酵母DQ1造成严重生长抑制,达91.4%。相比之下,其他木质素衍生酚类化合物包括4-羟基苯甲醛、香草醛和丁香醛在类似条件下仅表现出轻微抑制作用(Yan et al., 2025)。这些发现表明对苯醌的毒性显著高于典型酚醛,提示其可能是木质纤维素水解液中的关键抑制性化合物。对苯醌的高毒性可能归因于其高亲电性醌结构和共轭二酮体系,先前研究已表明含不饱和键和羰基取代基的酚类抑制剂对酿酒酵母表现出更强的抑制作用(Hou et al., 2018)。先前研究还表明木质素衍生酚酸通过破坏膜完整性抑制酵母生长,导致膜变形和结构损伤(Gu et al., 2019)。此外,混合酚醛可诱导膜变形并进一步损害膜完整性(Yan et al., 2025)。综上,这些观察支持以下假设:对苯醌的显著毒性与其对膜结构和功能的严重破坏密切相关,这可能是其对酿酒酵母抑制作用的核心机制。
【数据】水解液中对苯醌浓度范围:130–210 mg/L;YPD中测试浓度范围:0–200 mg/L;100 mg/L对苯醌生长抑制率:68.5%;200 mg/L对苯醌生长抑制率:91.4%;100 mg/L对苯醌对应摩尔浓度:约0.93 mM;200 mg/L对应:约2 mM;8 mM 4-羟基苯甲醛生长抑制率:18.3%;抑制急剧增加区间:80–100 mg/L
3.2 适应性进化增强酿酒酵母对苯醌耐受性
酿酒酵母DQ1的适应性进化在八个连续阶段中进行,对苯醌浓度逐步增加(图1)。在每个转接点培养24 h后监测细胞生长和乙醇发酵性能。第一阶段(80 mg/L对苯醌),细胞生长最初下降至OD600值12,但在19次转接后逐渐增加至14.3。第二阶段(100 mg/L),生长在24次转接后从OD600 13.8提高至15.8并随后稳定。第三阶段(120 mg/L),细胞生长稳定在OD600约15.2。第四阶段在140 mg/L对苯醌下进行,接种量增加至20%(v/v),细胞生长从OD600 12.3升至15.4。10%接种量允许在120 mg/L对苯醌下连续传代,但浓度提高至140 mg/L时生长受到严重抑制。因此,暂时将接种量提高至20%以维持活细胞,待群体适应更高胁迫后在第五阶段调回10%。第五阶段,在相同抑制剂浓度(140 mg/L)下以降低的接种量10%(v/v)进行连续传代,生长从OD600 12.3改善至15.7,同时残糖从2.4降至0.4 g/L。第六和第七阶段对苯醌浓度进一步提高(分别为160和180 mg/L),细胞生长维持在OD600约17.0和16.6。最终第八阶段(200 mg/L),细胞生长在11次转接后从OD600 13.0增加至16.3并保持稳定,残糖从3.2降至1.5 g/L。鉴于木质纤维素水解液中检测到的最高对苯醌浓度约为200 mg/L,达到此水平的耐受性可能足以使进化菌株承受实际木质纤维素水解液中遇到的抑制剂胁迫。因此,适应性进化过程在此阶段终止。经过约146次转接(对应约7.0 × 10³次细胞分裂)后,获得了稳健且稳定的进化菌株,命名为酿酒酵母ZX100。适应性进化后获得的八个分离株中,ZX100表现出最佳综合表型,包括在对苯醌胁迫下优异的细胞生长、葡萄糖消耗和乙醇生产,因此被选用于进一步的生理和转录组分析。在非选择性培养基中连续传代八次后,ZX100在200 mg/L对苯醌胁迫下维持稳定的生长和乙醇生产,表明增强的耐受表型在没有选择压力下也能稳定保持。适应性进化已成为提高发酵微生物抑制剂耐受性的有效策略(Fu et al., 2023; Chen et al., 2024; Menegon et al., 2022)。例如,Rhodococcus opacus MITXM-61对木质素衍生抑制剂(包括木质素、4-羟基苯甲醛和丁香醛)的适应性进化显著增强了其耐受性,抗性提高2–3倍,木质纤维素水解液中的滞后期显著缩短(Kurosawa et al., 2015)。类似地,Paecilomyces variotii在高抑制剂胁迫下的适应性进化提高了其生物脱毒能力,能够更高效地去除木质纤维素衍生抑制剂并增强下游发酵性能(Chen et al., 2024)。此外,进化的Y. lipolytica菌株通过上调还原酶和脱氢酶途径表现出对芳香醛抑制剂耐受性的增加,这与芳香醛向低毒性醇和酸的增强转化有关(Zhou et al., 2021)。
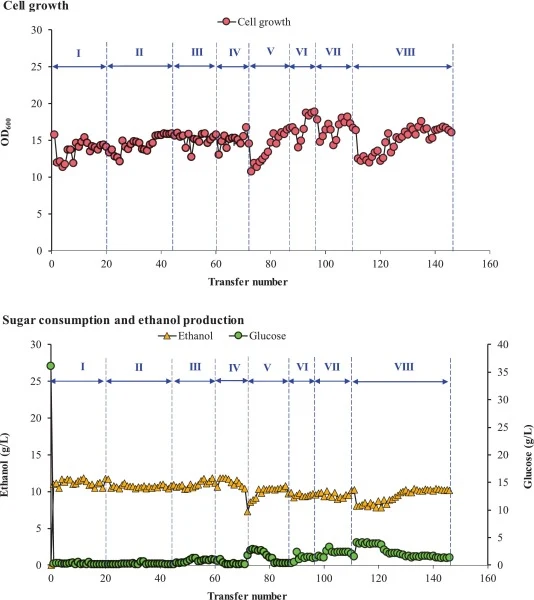
【数据】进化阶段数:8个;阶段I:80 mg/L,OD600从12→14.3(19次转接);阶段II:100 mg/L,OD600从13.8→15.8(24次转接);阶段III:120 mg/L,OD600稳定在约15.2;阶段IV:140 mg/L,接种量20%,OD600从12.3→15.4;阶段V:140 mg/L,接种量10%,OD600从12.3→15.7,残糖从2.4→0.4 g/L;阶段VI:160 mg/L,OD600约17.0;阶段VII:180 mg/L,OD600约16.6;阶段VIII:200 mg/L,OD600从13.0→16.3(11次转接),残糖从3.2→1.5 g/L;总转接次数:约146次;细胞分裂次数:约7.0 × 10³;非选择性传代次数:8次
3.3 ZX100增强的对苯醌耐受性和发酵性能
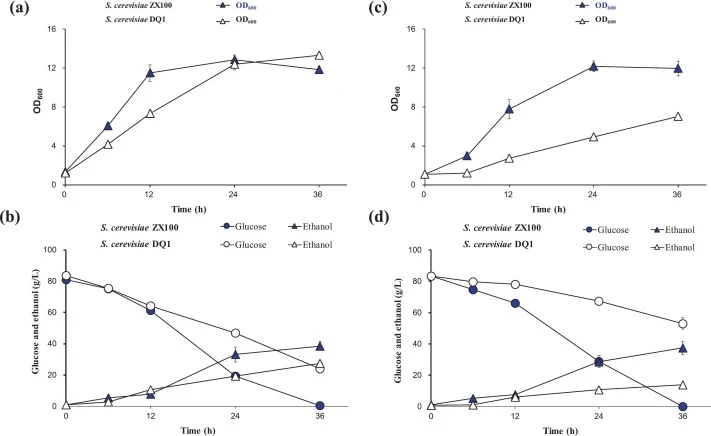
为系统评估进化菌株的对苯醌耐受性,酿酒酵母ZX100在含40 g/L葡萄糖和不同浓度对苯醌的YPD培养基以及生物脱毒玉米秸秆水解液中培养。如图2所示,在对苯醌浓度低于80 mg/L时,亲本菌株和进化菌株之间的生长或乙醇生产无显著差异。然而,当浓度增加至100 mg/L时,酿酒酵母DQ1的乙醇产量显著下降70.4%(原文此处中断)。
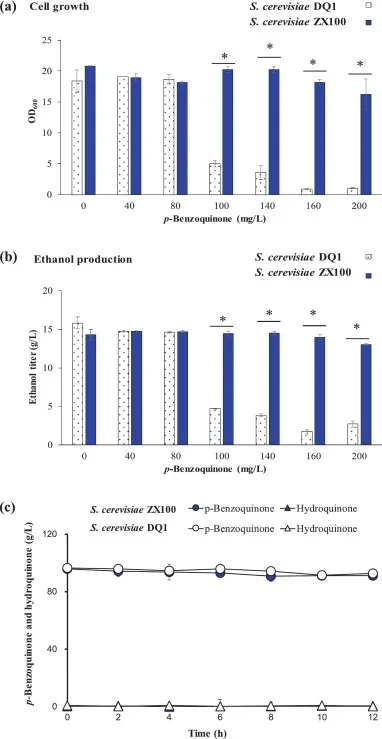
【数据】葡萄糖浓度:40 g/L;对苯醌浓度范围:0–200 mg/L;100 mg/L时亲本菌株乙醇产量下降:70.4%;<80 mg/L时无显著差异
3.4 膜完整性与ROS分析
(原文节选未提供此部分完整结果内容)
3.5 转录组分析
(原文节选未提供此部分完整结果内容)
讨论与解读
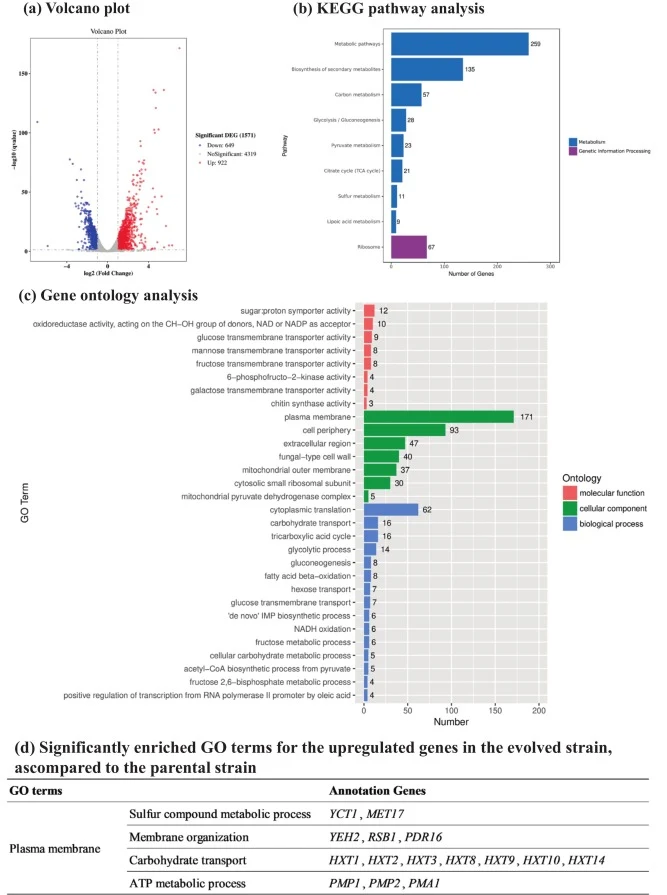
本研究通过对酿酒酵母DQ1进行为期八个阶段、约146次转接的渐进式适应性进化,成功获得了对苯醌耐受性显著增强的进化菌株ZX100。对苯醌作为稀酸预处理过程中产生的高毒性木质素衍生抑制剂,其摩尔毒性远高于典型酚醛类化合物——100 mg/L(约0.93 mM)即导致68.5%的生长抑制,而8 mM 4-羟基苯甲醛仅抑制18.3%。进化菌株在生物脱毒玉米秸秆水解液中乙醇产量约为亲本的2.7倍,在添加100 mg/L对苯醌条件下乙醇得率达0.43 g/g糖、葡萄糖消耗速率2.3 g/L/h、体积乙醇产率1.0 g/L/h。在生物脱毒水解液补充对苯醌条件下,ZX100的葡萄糖消耗和乙醇产量均为亲本的1.7倍。生理分析表明,耐受性提升与膜完整性增强和胞内ROS积累减少相关。转录组分析提示硫醇代谢、膜组织、ATP代谢和己糖转运相关基因的协同上调可能参与其中。高固体负载发酵是工业纤维素乙醇生产的重要策略,可提高乙醇滴度并降低下游蒸馏成本。
编译者解读:该研究采用经典适应性进化策略,无需外源基因导入即获得稳定遗传的耐受表型,在工业菌株改造中具有操作简便、监管友好的优势。方法上以渐进式浓度梯度结合接种量动态调整(20%→10%)维持活细胞群,设计务实。局限在于转录组仅提示关联基因,未通过基因编辑验证因果;且进化菌株在真实高固体水解液中的长期发酵稳定性尚需评估。对苯醌耐受基因靶点的后续验证将为理性工程改造提供直接工具。
参考来源
期刊:Bioresource Technology, 2027
DOI:10.1016/j.biortech.2026.135679
DOI: 10.1016/j.biortech.2026.135679