来源:Systematic metabolic engineering of Yarrowia lipolytica for highly efficient biosynthesis of mannitol from glucose(Bioresource Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
甘露醇在食品与医药领域用途广泛,但商业生产长期依赖化学合成,成本高、条件苛刻、纯化复杂。微生物法虽已有探索,却大多以果糖为底物,原料成本居高不下。本研究以解脂耶氏酵母为底盘,通过底盘优化、旁路阻断、异源甘露醇-1-磷酸脱氢酶表达与转运工程等系统代谢工程策略,构建出工程菌株Ylzy27。在3 L生物反应器补料分批培养中,该菌株产甘露醇220.22 ± 0.98 g/L,生产强度3.02 ± 0.01 g/(L·h),葡萄糖得率0.55 ± 0.01 g/g,为目前以葡萄糖为原料报道的最高值;经浓缩结晶直接获得纯度超过99.95%的甘露醇晶体。
研究背景
甘露醇是一种功能性糖醇,在食品工业中作为低热量甜味剂契合健康饮食趋势,在医药领域也有多种用途。凭借高效的渗透性脱水和利尿特性,甘露醇可快速降低颅内压和眼内压,用于治疗脑水肿。工业上甘露醇的生产依赖化学-酶法异构化、催化加氢和色谱分离,存在工艺复杂、反应条件严苛、生产成本高等问题。相比之下,微生物法因操作简单、产物特异性高、环境友好而被广泛认为是有前景的可持续路线,已在肠膜明串珠菌、谷氨酸棒杆菌、大肠杆菌和木兰假丝酵母等物种中实现工程化。但生物合成的大规模应用仍受两大限制,其中之一是现有研究多以果糖为底物,成本偏高。解脂耶氏酵母是常用底盘,能天然合成多种糖醇,本研究即以其为对象展开系统代谢工程改造。
研究方法
2.1 培养基与试剂
大肠杆菌菌株在Luria–Bertani液体培养基中、37 °C、220 rpm条件下培养,培养基补充100 mg/L氨苄青霉素。解脂耶氏酵母菌株在YPD培养基(20 g/L葡萄糖、10 g/L酵母提取物、5 g/L蛋白胨,pH 6.5)中生长。解脂耶氏酵母转化子的筛选按照已报道的培养基进行(Xu et al., 2025)。加入琼脂(20 g/L)制备固体培养基。使用一水葡萄糖作为葡萄糖来源,所有葡萄糖浓度均换算为无水葡萄糖当量。摇瓶培养时,YPNP培养基含8 g/L酵母提取物、2 g/L蛋白胨、2 g/L柠檬酸三铵(C6H17N3O7)和2 g/L磷酸氢二铵[(NH4)2HPO4],并补充200 g/L葡萄糖(C6H12O6)。3 L补料分批培养时,种子培养基含30 g/L葡萄糖、10 g/L酵母提取物和3 g/L蛋白胨。初始培养培养基含200 g/L葡萄糖、2 g/L蛋白胨、6 g/L酵母提取物、2 g/L磷酸氢二铵[(NH4)2HPO4]、2 g/L柠檬酸三铵(C6H17N3O7)、0.2 g/L七水硫酸镁(MgSO4·7H2O)和1 g/L磷酸二氢钾(KH2PO4)。补料使用700 g/L葡萄糖溶液。PCR扩增所用的Phanta Max Super-Fidelity DNA聚合酶和Green Taq Mix购自南京诺唯赞生物科技股份有限公司。EasyFusion Assembly Master Mix克隆试剂盒购自苏州NCM Biotech。DNA纯化和质粒提取试剂盒由广州美基生物提供。
【数据】大肠杆菌培养温度:37 °C;转速:220 rpm;氨苄青霉素:100 mg/L;YPD培养基:20 g/L葡萄糖、10 g/L酵母提取物、5 g/L蛋白胨,pH 6.5;琼脂:20 g/L;YPNP培养基:8 g/L酵母提取物、2 g/L蛋白胨、2 g/L柠檬酸三铵、2 g/L磷酸氢二铵;摇瓶葡萄糖:200 g/L;种子培养基:30 g/L葡萄糖、10 g/L酵母提取物、3 g/L蛋白胨;初始培养基:200 g/L葡萄糖、2 g/L蛋白胨、6 g/L酵母提取物、2 g/L磷酸氢二铵、2 g/L柠檬酸三铵、0.2 g/L七水硫酸镁、1 g/L磷酸二氢钾;补料葡萄糖:700 g/L
2.2 菌株与质粒构建
本研究使用的所有菌株和质粒分别列于补充材料(表S1–S2)。用于构建敲除和表达载体以及菌株筛选的引物列于补充材料(表S3–S5)。敲除载体构建的示意图见补充材料(图S1)。质粒构建的详细方案见补充材料(方法)。所有引物由苏州金唯智合成,PCR产物和质粒的DNA测序由北京擎科生物科技有限公司完成。所有异源目标基因均针对解脂耶氏酵母进行密码子优化,并由广州呈源生物科技有限公司合成。解脂耶氏酵母中的基因敲除和整合按照Xu et al.(2025)所述方法进行。酵母转化按照Wang et al.(2020)所述方案进行。
【数据】氨苄青霉素:100 mg/L;引物合成:金唯智(苏州);测序:擎科生物(北京);基因合成:呈源生物(广州);原文未详述其他具体参数
2.3 摇瓶与3 L补料分批培养
摇瓶培养在购自四川蜀玻有限公司的250 mL挡板摇瓶中进行。每个摇瓶装30 mL培养基,培养条件维持35 °C、220 rpm。使用挡板摇瓶以增强氧传递和混合效率。混合效率的提高改善了解脂耶氏酵母的氧可利用性,与非挡板摇瓶相比支持更稳定的生长和代谢物生产。3 L补料分批培养时,将工程菌株接种到含200 mL第2.1节所述种子培养基的2 L摇瓶中。30 °C孵育12 h后,将种子培养液转移到含1.3 L第2.1节所述初始培养培养基的3 L生物反应器中。培养在35 °C下进行,搅拌转速700 rpm,通气速率2 vvm,初始pH 5.0。后续培养过程中pH不维持在恒定值。当葡萄糖浓度降至20 g/L以下时,增量添加第2.1节所述的700 g/L葡萄糖溶液,整个培养过程共供应600 g葡萄糖。根据需要补充聚二甲基硅氧烷消泡剂(购自美国DOWSIL)以控制培养过程中的起泡。
【数据】摇瓶:250 mL挡板摇瓶,装液30 mL,35 °C,220 rpm;种子培养:30 °C,12 h,200 mL;生物反应器:3 L,装液1.3 L,35 °C,700 rpm,2 vvm,初始pH 5.0;补料触发:葡萄糖<20 g/L;总补糖:600 g;补料浓度:700 g/L
2.4 从3 L生物反应器培养液中分离纯化甘露醇
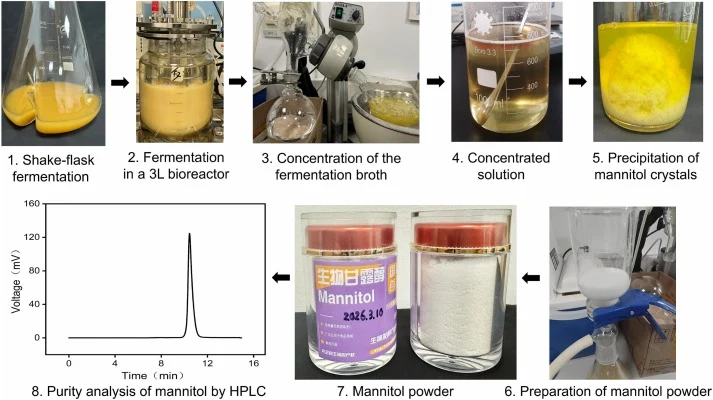
3 L生物反应器培养结束后,培养液以13,000g离心20 min去除细胞和不溶性残渣,收集上清液。上清液在70 °C下减压浓缩。浓缩液随后冷却至4 °C静置结晶。所得甘露醇晶体通过真空过滤收集,并用90%(v/v)冷乙醇洗涤两次。晶体随后在70 °C下干燥,获得白色结晶粉末。
【数据】离心:13,000g,20 min;浓缩温度:70 °C;结晶温度:4 °C;洗涤:90%(v/v)冷乙醇,2次;干燥温度:70 °C
2.5 玉米芯水解液的制备
玉米芯水解液按照Zou et al.(2015)报道的方法制备。纤维素酶(10,000 U/g)和木聚糖酶(10,000 U/g)购自上海阿拉丁生化科技股份有限公司。酶解液通过离心收集,上清液在70 °C下真空浓缩至最终糖浓度约200 g/L。含葡萄糖(118.95 g/L)、木糖(46.85 g/L)、阿拉伯糖(12.58 g/L)和低聚糖(21.45 g/L)的水解液用作主要碳源。水解液中还检测到乙酸(5.32 g/L),来源于预处理过程中半纤维素的脱乙酰化。
【数据】纤维素酶:10,000 U/g;木聚糖酶:10,000 U/g;浓缩温度:70 °C;最终糖浓度:约200 g/L;葡萄糖:118.95 g/L;木糖:46.85 g/L;阿拉伯糖:12.58 g/L;低聚糖:21.45 g/L;乙酸:5.32 g/L
2.6 分析方法
酵母细胞形态在光学显微镜下以640倍放大观察。细胞生长使用UV-7504分光光度计在600 nm波长下监测(OD600)。最大光密度(ODmax)定义为培养期间记录的最高OD600值。干细胞重(DCW)根据OD600值、按照先前报道的解脂耶氏酵母转换因子估算。具体而言,1 mL OD600为1的细胞悬液对应0.25 mg DCW(Xu et al., 2024)。培养液中的葡萄糖、果糖和多元醇按照Wang et al.(2020)所述方法通过高效液相色谱(HPLC)分析。培养期间每12小时取样一次,分析前离心去除细胞。培养液pH在取样后立即使用校准的pH计离线测量。
【数据】显微镜放大:640×;OD检测波长:600 nm;DCW转换因子:OD600=1对应0.25 mg DCW/mL;取样间隔:12 h;HPLC:葡萄糖、果糖、多元醇
2.7 统计分析
本研究呈现的所有数据代表三次独立生物学重复的平均值和标准差。采用双样本t检验确定显著性差异。统计显著性定义如下:0.01 < p < 0.05(),p < 0.01(),p < 0.001()。
【数据】重复数:3次独立生物学重复;显著性:0.01
研究结果
3.1 构建甘露醇生产的最优底盘菌株
解脂耶氏酵母最适生长温度为28–30 °C,对温度高度敏感。超过34 °C会显著抑制其细胞生长、活力和糖醇合成(Kubiak et al., 2021)。大规模微生物培养会产生代谢热,需要冷却至约30 °C,增加能耗。此外,胁迫条件下甘露醇的积累常与菌株胁迫耐受性改善相关(Rodrigues et al., 2023)。本研究在30 °C和35 °C、200 g/L葡萄糖条件下评估了耐热菌株HRC(Y. lipolytica CGMCC7326∷HSP90)(图1A)。在30 °C下,HRC的最大OD600和多元醇产量与野生型(WT)菌株相当。OD600用于监测培养过程中的细胞生长,DCW根据材料与方法中所述的转换因子由OD600估算。基于估算的DCW,WT和HRC的比多元醇产量分别为7.91 ± 0.04和7.90 ± 0.11 g多元醇/g DCW。在35 °C下,WT的最大OD600显著降低至15.43 ± 1.12,比多元醇产量降至1.09 ± 0.11 g多元醇/g DCW。相比之下,HRC的最大OD600达到52.63 ± 0.47,比多元醇产量维持在7.37 ± 0.18 g多元醇/g DCW。同时,HRC的甘露醇滴度从30 °C的16.93 ± 0.45 g/L增加到35 °C的46.50 ± 0.72 g/L(图1A)。这些结果表明,HRC在35 °C下表现出显著增强的甘露醇生产,同时维持高OD600,支持选择35 °C用于后续培养。
【数据】温度:30 °C和35 °C;葡萄糖:200 g/L;WT 30 °C比多元醇产量:7.91 ± 0.04 g/g DCW;HRC 30 °C比多元醇产量:7.90 ± 0.11 g/g DCW;WT 35 °C最大OD600:15.43 ± 1.12;WT 35 °C比多元醇产量:1.09 ± 0.11 g/g DCW;HRC 35 °C最大OD600:52.63 ± 0.47;HRC 35 °C比多元醇产量:7.37 ± 0.18 g/g DCW;HRC甘露醇滴度:30 °C为16.93 ± 0.45 g/L,35 °C为46.50 ± 0.72 g/L
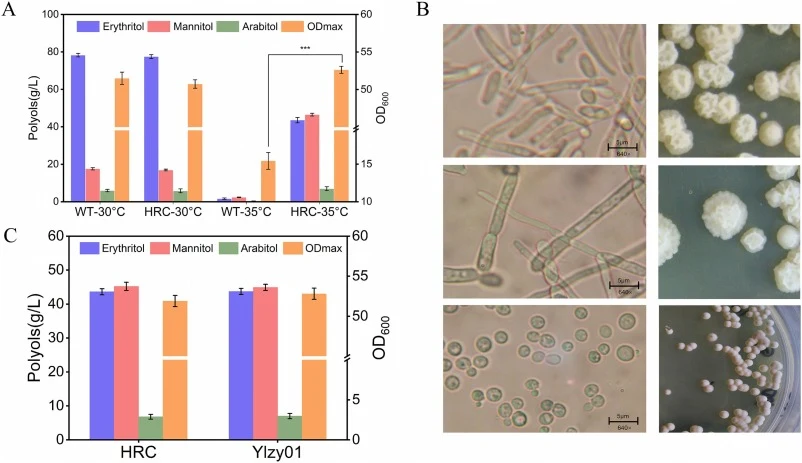
为便于通过Cre/loxP系统回收利用guaB/hph筛选标记(Chen et al., 2023),首先在亲本菌株HRC中表达Cre重组酶。为提高遗传修饰效率,首先敲除Ku70(GenBank: YALI0C08701g)——非同源末端连接(NHEJ)途径的关键组分——以增强同源重组效率,获得中间菌株YlzyKu70(HRC∷CreΔKu70)。解脂耶氏酵母是二态性酵母,丝状生长会使其培养复杂化(Konzock & Norbeck, 2020)。随后,从YlzyKu70中敲除Mhy1(GenBank: YALI0B21582g)——解脂耶氏酵母二态转变的关键调控因子——以减少丝状生长并维持更接近酵母样的形态,获得工程菌株Ylzy01(HRC∷CreΔKu70ΔMhy1)(Konzock & Norbeck, 2020; Verbeke et al., 2013)。显微镜观察显示,HRC和YlzyKu70在培养2天后表现出明显的丝状生长,而Ylzy01主要呈现酵母样形态,无明显丝状生长(图1B)。此外,在测试条件下,HRC和Ylzy01在赤藓糖醇、甘露醇和d-阿拉伯糖醇滴度以及最大OD600方面未观察到显著差异(图1C)。这些结果表明,Mhy1敲除有效减少了丝状生长,且未显著影响多元醇生产。基于上述改造,成功构建了工程菌株Ylzy01(HRC∷CreΔKu70ΔMhy1),为后续甘露醇合成途径的代谢工程提供了理想底盘菌株。
【数据】菌株:HRC(Y. lipolytica CGMCC7326∷HSP90)、YlzyKu70(HRC∷CreΔKu70)、Ylzy01(HRC∷CreΔKu70ΔMhy1);基因:Ku70(YALI0C08701g)、Mhy1(YALI0B21582g);培养时间:2天;原文未详述其他具体数值
3.2 阻断副产物合成途径
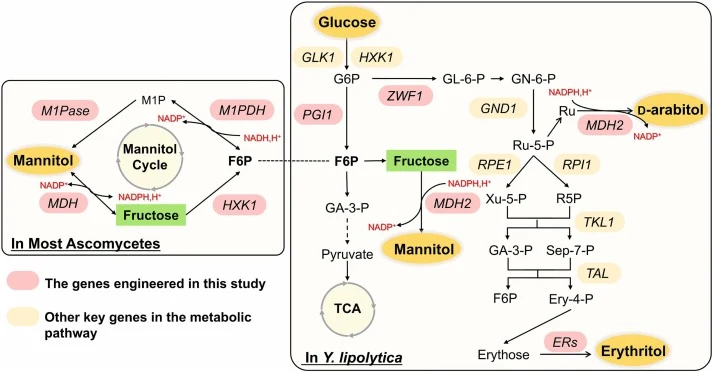
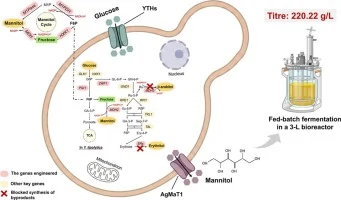
在解脂耶氏酵母中,多元醇的生物合成以途径通量显著分流为特征,如图2所示。赤藓糖醇和d-阿拉伯糖醇主要通过磷酸戊糖途径(PPP)合成,而甘露醇天然通过糖酵解途径产生。先前研究已阐明赤藓糖醇生物合成的关键步骤,其末端步骤由NAD(P)H依赖性赤藓糖还原酶(ERs)催化(Cheng et al., 2018; Xu et al., 2025; Mironczuk et al., 2017)。对于d-阿拉伯糖醇生物合成,来自PPP的核酮糖-5-磷酸(R5P)首先去磷酸化为核酮糖,随后被还原为d-阿拉伯糖醇。甘露醇-1-磷酸脱氢酶(M1PDH)将果糖-6-磷酸(F6P)转化为甘露醇-1-磷酸(M1P),进而转化为甘露醇,广泛存在于子囊菌中但解脂耶氏酵母中缺失(Dulermo et al., 2015)。相反,解脂耶氏酵母中的甘露醇生物合成仅通过甘露醇-2-脱氢酶(MDH2)催化的还原途径进行(Wang et al., 2020)。
#### 3.2.1 敲除赤藓糖醇合成关键基因
为特异性抑制赤藓糖醇生物合成途径,本研究聚焦于删除可能参与赤藓糖醇形成的基因。先前研究表明,解脂耶氏酵母基因组包含四个可能参与赤藓糖醇合成的推定赤藓糖还原酶基因,即ER10(GenBank: YALI0D07634g)、ER16(GenBank: YALI0B07117g)、ER25(GenBank: YALI0C13508g)、ER27(GenBank: YALI0F18590g),以及五个醛/酮还原酶基因:GCY1(GenBank: YALI0D04092g)、GCY13(GenBank: YALI0A15906g)、GCY14(GenBank: YALI0E18348g)、GCY16(GenBank: YALI0B21780g)和ARA13(GenBank: YALI0C09119g)(Cheng et al., 2018; Szczepańczyk et al., 2023)。据此,以底盘菌株Ylzy01为亲本,采用顺序迭代敲除策略删除上述九个基因,每个所得菌株作为后续基因删除的亲本。构建了从单基因敲除菌株Ylzy02到九基因敲除菌株Ylzy10的一系列基因缺失逐步累积的突变体。此外,首次系统评估了这九个基因对解脂耶氏酵母赤藓糖醇生物合成的各自贡献(表1)。菌株Ylzy02–Ylzy10之间培养时长的差异可归因于基因依赖性的赤藓糖醇生物合成和细胞代谢效应。比较底盘菌株Ylzy01(OD600: 45.20 ± 1.76;培养时间:48 h)与工程菌株的生长和培养时长表明,所有菌株维持相似的OD600值。Ylzy02(Ylzy01ΔER27)的培养时长与Ylzy01相当,而Ylzy03(Ylzy02ΔER16)的培养时长比Ylzy02延长约8 h。随后,Ylzy04(Ylzy03ΔER25)的培养时间与Ylzy03一致。敲除ER10和GCY16基因后,所得菌株Ylzy05(Ylzy04ΔER10)和Ylzy06(Ylzy05ΔGCY16)的培养时长分别比其直接前一工程菌株延长约2 h。随后敲除GCY14、GCY1、GCY13和ARA13基因产生工程菌株Ylzy07–Ylzy10(Ylzy06ΔGCY14、Ylzy07ΔGCY1、Ylzy08ΔGCY13、Ylzy09ΔARA13),与前一菌株相比无显著变化(表1)。培养过程中OD600和葡萄糖消耗的时间进程见图S2。基于摇瓶培养性能,敲除全部九个基因的Ylzy10菌株产赤藓糖醇2.29 ± 0.15 g/L,仅为底盘菌株Ylzy01(43.73 ± 0.85 g/L)产量的5.23%。Ylzy10中残留的赤藓糖醇生产表明赤藓糖醇生物合成未被完全消除,其他具有赤藓糖还原活性的酶可能贡献了剩余的赤藓糖醇形成。相比之下,甘露醇产量比Ylzy01(45.97 ± 0.95 g/L)增加20.45%,达到55.37 ± 0.76 g/L。此外,d-阿拉伯糖醇积累从7.07 ± 0.80 g/L升至28.07 ± 0.45 g/L,增加约三倍。随着基因被顺序删除,通过比较所得菌株评估了每个基因删除的效果。
【数据】菌株:Ylzy01至Ylzy10;基因:ER10、ER16、ER25、ER27、GCY1、GCY13、GCY14、GCY16、ARA13;Ylzy01 OD600:45.20 ± 1.76;Ylzy01培养时间:48 h;Ylzy03培养时长延长:约8 h;Ylzy05/Ylzy06培养时长延长:约2 h;Ylzy10赤藓糖醇:2.29 ± 0.15 g/L(为Ylzy01的5.23%);Ylzy01赤藓糖醇:43.73 ± 0.85 g/L;Ylzy10甘露醇:55.37 ± 0.76 g/L(比Ylzy01增加20.45%);Ylzy01甘露醇:45.97 ± 0.95 g/L;d-阿拉伯糖醇:从7.07 ± 0.80 g/L升至28.07 ± 0.45 g/L(约三倍)
3.2.2 阻断d-阿拉伯糖醇合成途径
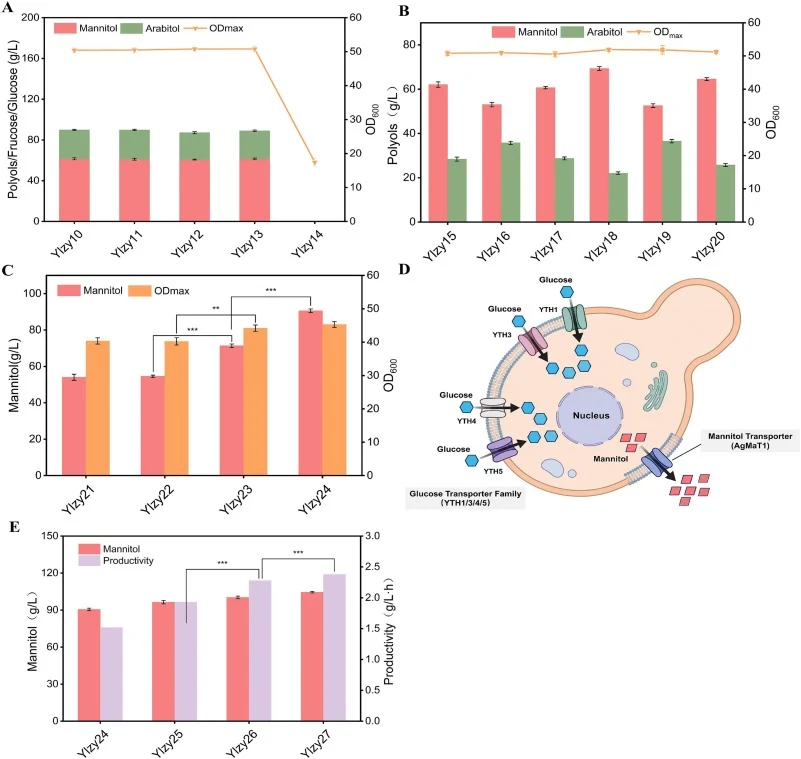
为消除d-阿拉伯糖醇积累,本研究进一步删除了参与d-阿拉伯糖醇合成的基因。在解脂耶氏酵母中,d-阿拉伯糖醇由核酮糖还原形成,该反应由NADPH依赖性脱氢酶催化。先前研究报道了多个候选基因。本研究以Ylzy10为亲本,删除了涉及d-阿拉伯糖醇合成的基因,构建了菌株Ylzy11至Ylzy14。摇瓶培养结果显示,随着这些基因的逐步删除,d-阿拉伯糖醇产量逐步降低。其中,Ylzy14菌株的d-阿拉伯糖醇产量降至最低水平。同时,甘露醇产量进一步提高。这些结果表明,阻断d-阿拉伯糖醇合成途径有效减少了副产物积累,并将碳通量重定向至甘露醇合成。
【数据】菌株:Ylzy10至Ylzy14;原文未详述具体基因名称及具体数值
3.2.3 M1PDH途径的构建与优化
在阻断副产物途径后,本研究在Ylzy14菌株中引入了异源M1PDH途径以实现甘露醇特异性生物合成。M1PDH基因来自子囊菌,经密码子优化后整合到解脂耶氏酵母基因组中。构建了菌株Ylzy15至Ylzy20,通过摇瓶培养评估了不同M1PDH基因来源和表达策略对甘露醇生产的影响(图3)。结果显示,不同M1PDH基因对甘露醇产量有显著影响。其中,Ylzy20菌株表现出最高的甘露醇产量。此外,研究还评估了前体供应增强对甘露醇合成的影响。通过过表达磷酸葡萄糖异构酶等基因增强F6P供应,进一步提高了甘露醇产量。
【数据】菌株:Ylzy15至Ylzy20;原文未详述具体M1PDH基因名称及具体数值
3.2.4 转运系统工程
为进一步提高甘露醇产量,本研究对转运系统进行了工程改造。通过过表达或敲除特定的转运蛋白基因,改善了甘露醇的分泌和葡萄糖的摄取。构建了最终工程菌株Ylzy27,其在摇瓶培养中表现出优异的甘露醇生产能力。
【数据】菌株:Ylzy27;原文未详述具体转运蛋白基因及具体数值
3.3 3 L生物反应器补料分批培养
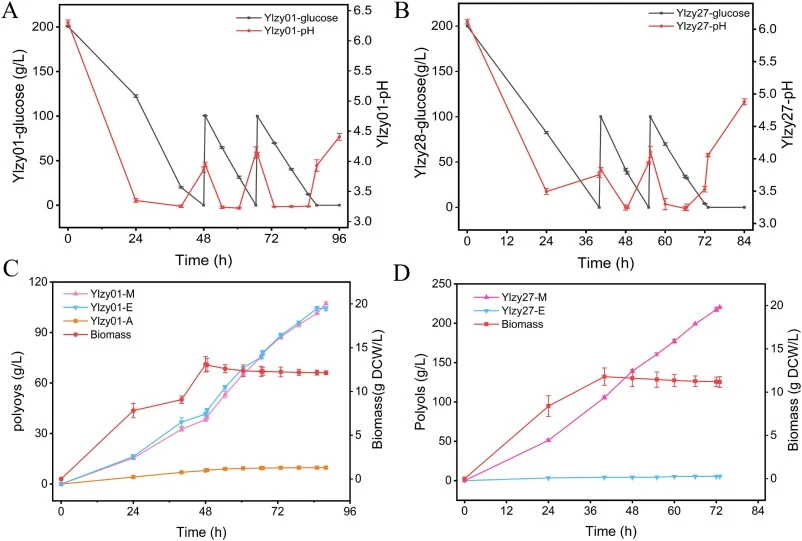
为评估工程菌株Ylzy27的工业应用潜力,在3 L生物反应器中进行了补料分批培养(图4)。培养过程按照第2.3节所述条件进行。Ylzy01和Ylzy27的时间进程曲线如图5所示。Ylzy01的葡萄糖浓度和pH变化见图5A,Ylzy27的葡萄糖浓度和pH变化见图5B。Ylzy01的甘露醇、赤藓糖醇、d-阿拉伯糖醇和生物量生产见图5C,Ylzy27的甘露醇、赤藓糖醇和生物量生产见图5D。在整个补料分批培养过程中,Ylzy27共产甘露醇220.22 ± 0.98 g/L,生产强度为3.02 ± 0.01 g/(L·h),葡萄糖得率为0.55 ± 0.01 g/g。这是目前以葡萄糖为原料报道的最高甘露醇产量。
【数据】反应器:3 L;甘露醇产量:220.22 ± 0.98 g/L;生产强度:3.02 ± 0.01 g/(L·h);葡萄糖得率:0.55 ± 0.01 g/g
3.4 甘露醇的分离纯化
培养结束后,按照第2.4节所述方法从培养液中分离纯化甘露醇。通过浓缩和结晶直接获得纯度超过99.95%的甘露醇晶体。该方法操作简单,无需复杂的色谱分离步骤,降低了纯化成本。
【数据】甘露醇晶体纯度:>99.95%;原文未详述其他具体数值
3.5 玉米芯水解液作为替代碳源
为评估工程菌株利用廉价原料的能力,本研究以玉米芯水解液作为主要碳源进行了培养实验。水解液含葡萄糖118.95 g/L、木糖46.85 g/L、阿拉伯糖12.58 g/L、低聚糖21.45 g/L和乙酸5.32 g/L。工程菌株Ylzy27在玉米芯水解液中表现出良好的甘露醇生产能力,表明该菌株具有利用木质纤维素水解液生产甘露醇的潜力。
【数据】玉米芯水解液:葡萄糖118.95 g/L、木糖46.85 g/L、阿拉伯糖12.58 g/L、低聚糖21.45 g/L、乙酸5.32 g/L;原文未详述甘露醇具体产量
讨论与解读
本研究通过系统代谢工程策略成功构建了高效生产甘露醇的解脂耶氏酵母工程菌株Ylzy27。研究涵盖底盘优化、副产物抑制、M1PDH途径重构、前体增强和转运系统改善五个层面。底盘优化方面,选用耐热菌株HRC并在35 °C下培养,同时敲除Ku70提高同源重组效率、敲除Mhy1减少丝状生长。副产物抑制方面,系统评估了九个赤藓糖醇合成相关基因的贡献,并进一步阻断了d-阿拉伯糖醇合成途径。通过引入异源M1PDH途径实现了甘露醇特异性生物合成,并增强了前体供应和转运能力。最终在3 L生物反应器中,Ylzy27产甘露醇220.22 ± 0.98 g/L,生产强度3.02 ± 0.01 g/(L·h),得率0.55 ± 0.01 g/g葡萄糖,为目前以葡萄糖为原料报道的最高值。该研究还实现了甘露醇的直接结晶,纯度超过99.95%,为甘露醇和其他多元醇的经济性生物合成提供了支持。
编译者解读:该研究的方法选择体现了"先堵后疏"的经典代谢工程逻辑——先系统敲除竞争途径减少副产物分流,再引入异源M1PDH途径将碳通量定向导入甘露醇合成。以葡萄糖替代果糖作为底物是成本控制的关键突破,220 g/L的产量和0.55 g/g的得率在已报道的葡萄糖基甘露醇合成中处于领先水平。直接结晶获得99.95%纯度产品,省去了色谱分离步骤,显著简化了下游工艺。局限在于,Ylzy10中仍有2.29 g/L赤藓糖醇残留,说明赤藓糖醇合成途径未被完全阻断,可能存在未知的赤藓糖还原酶;此外,玉米芯水解液实验的具体产量数据在节选中未详述,其工业化原料适配性仍需更多数据支撑。
参考来源
期刊:Bioresource Technology, 2027
DOI: 10.1016/j.biortech.2026.135846
DOI: 10.1016/j.biortech.2026.135846