来源:Metabolic engineering of Taxus chinensis suspension cell lines for overproduction of paclitaxel reveals insights into pathway regulation(Metabolic Engineering)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
紫杉醇是临床广泛使用的化疗药物,目前主要依赖红豆杉植物细胞培养进行工业生产。尽管通过诱导子调控次生代谢的策略已被广泛研究,但利用遗传工程手段改造红豆杉细胞代谢的报道仍然有限。本研究在中国红豆杉悬浮细胞中组成型过表达紫杉醇生物合成通路的四个关键基因——TASY、DBAT、BAPT和DBTNBT,发现每个基因的过表达均使紫杉醇积累量提升2至8倍,其中DBAT过表达效果最为显著。研究进一步揭示DBAT是紫杉醇及其他紫杉烷类化合物生物合成的关键限速步骤,且其调控方式与通路中其他基因明显不同。
研究背景
植物产生的天然产物对社会具有重要价值。目前FDA批准的许多药物直接来源于植物天然产物或受其启发,包括源自甜艾草的抗疟药青蒿素、源自柳树化合物的阿司匹林,以及最初从太平洋紫杉树皮中分离的化疗药物紫杉醇。复杂植物天然产物的大规模可持续生产面临困难,原因在于其众多手性中心以及冗长且常未被表征的生物合成通路。因此,植物细胞培养(PCC)正成为复杂植物天然产物生物合成的有前景的选择,紫杉醇目前主要就是通过红豆杉属植物细胞培养供应的。
与从植物原料中提取不同,PCC生物工艺高度可持续且可规模化,供应链简单可靠。此外,利用PCC生产天然产物本质上不需要对完整天然生物合成通路进行表征——这些通路包含15至20个以上的酶促步骤,且往往高度特异、为各植物物种所独有。然而,PCC技术的发展在很大程度上受限于对生物学的根本认识不足以及理性代谢工程工具的缺乏。此前虽有研究在红豆杉植物细胞培养中过表达单个紫杉烷生物合成相关基因,但尚无研究使用同一来源细胞系直接比较不同基因过表达的效果。
研究方法
4.1 植物细胞系的建立与维持
中国红豆杉细胞系48.82A.3s由哈佛大学阿诺德植物园(马萨诸塞州剑桥市)的48-82*A号树建立,方法如先前所述(Brzycki Newton et al., 2023)。健康浅绿色针叶样品通过以下方式表面消毒:在室温下于10%漂白剂溶液中孵育10分钟,然后用无菌水冲洗3次。用无菌解剖刀将针叶纵向切开,接种于固体愈伤组织诱导培养基上,培养基含20 g/L蔗糖(Caisson Labs)、4 g/L Gelzan(Phytotechnology Laboratories)、3.21 g/L Gamborg B5基础培养基(Caisson Labs)、0.5 g/L酪蛋白氨基酸(Fisher BioReagents)、2.4 mg/L毒莠定(TCI America)和2 μg/L 6-苄氨基嘌呤(Sigma Life Sciences),pH 5.5。培养皿在23°C黑暗条件下孵育约4至6周,直至形成松散愈伤组织。用无菌刮刀将愈伤组织从针叶上轻轻分离,每4周转移至新鲜制备的愈伤组织诱导培养基,直至获得足够生物量转入悬浮培养。
约3 g湿重生物量接种至50 mL红豆杉生长培养基(20 g/L蔗糖、0.5 mg/L萘乙酸、22.5 μg/L 6-苄氨基嘌呤、3.21 g/L Gamborg B5基础培养基,pH 5.5)中,并添加5% v/v无菌过滤抗氧化剂溶液(20倍浓缩抗氧化剂溶液 = 2.5 g/L抗坏血酸、2.5 g/L柠檬酸、14.6 g/L L-谷氨酰胺)。培养物转移至23°C、125 rpm的孵育摇床中,按先前所述通过每两周继代培养维持悬浮状态(Kolewe et al., 2011)。
【数据】细胞系:Taxus chinensis 48.82A.3s;蔗糖:20 g/L;Gelzan:4 g/L;Gamborg B5:3.21 g/L;酪蛋白氨基酸:0.5 g/L;毒莠定:2.4 mg/L;6-苄氨基嘌呤:2 μg/L(诱导培养基)/22.5 μg/L(生长培养基);pH:5.5;诱导温度:23°C;诱导时间:4-6周;抗氧化剂:5% v/v;摇床转速:125 rpm;继代周期:每两周
4.2 克隆与转化
含有pCambia1301衍生双元载体的E. coli克隆菌株购自VectorBuilder(芝加哥,IL),这些载体在CaMV35S启动子和NOS终止子控制下表达BAPT、DBAT、DBTNBT和TASY(补充表S1),以及一个空载体对照。甘油菌种划线接种于含50 mg/mL卡那霉素的LB平板,37°C过夜孵育至菌落形成。从平板上挑取菌落接种至5 mL含50 mg/mL卡那霉素的LB中,37°C旋转鼓中过夜孵育。使用Zyppy质粒小提试剂盒(Zymo)分离质粒DNA,并按制造商推荐方案转化至电感受态根癌农杆菌EHA105菌株(GoldBio)中。转基因中国红豆杉48.82A.3s株系通过这些农杆菌菌株的稳定转化产生,方法如先前所述(Brzycki Newton et al., 2023)。转入悬浮培养后,转基因细胞系通过每3周继代培养至标准培养基(第4.1节)中维持,并添加300 mg/L头孢噻肟和10 mg/mL潮霉素。在悬浮培养的前两个继代周期后去除头孢噻肟。
【数据】抗生素:卡那霉素50 mg/mL;农杆菌菌株:EHA105;启动子:CaMV35S;终止子:NOS;头孢噻肟:300 mg/L;潮霉素:10 mg/mL;继代周期:每3周;培养温度:37°C(细菌)
4.3 通过ddPCR测定HygR拷贝数
使用微滴数字PCR通过测量作为选择标记的HygR基因拷贝数,确定整合到转基因红豆杉细胞系基因组中的T-DNA近似拷贝数。在转基因红豆杉细胞系接种至含潮霉素的悬浮培养约5个月后,从五个转基因细胞系以及一个野生型(未转化)对照中各取1 mL混合均匀的培养样品(约相当于200 mg湿重),设三个重复。细胞静置数分钟沉降至管底,随后用移液管移除培养基,样品保存于−80°C。使用Wizard HMW DNA提取试剂盒(Promega)按制造商植物组织分离说明从各细胞系中提取基因组DNA。不使用液氮匀浆,而是向每个细胞样品中加入约350 μL填充体积的ZR 2 mm BashingBeads(Zymo),使用Bullet Blender(Next Advance)以速度8匀浆冷冻细胞组织两个5分钟循环。使用IDT PrimerQuest设计工具为肌动蛋白(推定单拷贝基因组靶标)和潮霉素抗性基因HygR设计PrimeTime qPCR探针检测(补充表S2)。肌动蛋白标记HEX荧光基团,HygR标记FAM荧光基团以实现孔内多重检测。ddPCR反应体系包含11 μL 2x ddPCR Supermix for Probes(Bio-Rad)、1.1 μL 20x肌动蛋白探针、1.1 μL 20x HygR探针、1 μL BbsI(在Cutsmart缓冲液中稀释至3 U/μL)、2 μL稀释至10 ng/μL浓度的gDNA,以及5.8 μL无核酸酶水。平板用箔热封,涡旋并短暂离心,然后使用AutoDG自动微滴生成仪(Bio-Rad)按制造商说明生成微滴。使用QX200微滴读取仪(Bio-Rad)进行PCR和微滴读取。使用QX Manager软件(Bio-Rad)进行拷贝数分析。
【数据】样品量:1 mL培养物(约200 mg湿重);重复数:3;保存温度:−80°C;BashingBeads:350 μL;匀浆速度:8;匀浆时间:2×5 min;gDNA浓度:10 ng/μL;BbsI:3 U/μL;荧光基团:肌动蛋白-HEX,HygR-FAM;培养时间:约5个月
4.4 代谢活性测定
使用基于刃天青的测定法测量转基因细胞系相对于未转化对照(含10 μg/mL潮霉素)的代谢活性。对每个细胞系,在接种至含潮霉素选择培养基21天后取1 mL混合均匀的培养样品,设三个重复。样品静置数分钟后用移液管移除上清液,样品用PBS洗涤两次。洗涤后,将细胞重悬于PBS中的10 mg/L刃天青(Alfa Aesar)中,23°C黑暗孵育1小时。细胞以10,000 ×g离心2分钟,每个样品取200 μL上清液设三个重复加入96孔板。使用Synergy H1酶标仪(BioTek Instruments)测量荧光,激发波长560 nm,发射波长590 nm。代谢活性以每毫克干重生物量的相对荧光单位(RFU)报告。
【数据】潮霉素:10 μg/mL;采样时间:接种后21天;刃天青浓度:10 mg/L;孵育温度:23°C;孵育时间:1 h;离心:10,000 ×g,2 min;激发波长:560 nm;发射波长:590 nm;重复数:3
4.5 通过UPLC定量紫杉烷
紫杉烷(包括紫杉醇、巴卡亭III、10-脱乙酰紫杉醇、头孢曼宁和10-脱乙酰巴卡亭III)的提取和定量使用先前描述的方法(Brzycki Newton et al., 2023)。在接种至选择培养基21天后,从转基因细胞系取1 mL混合均匀的培养样品,设三个重复。样品在蒸发离心机中过夜干燥,然后保存于−80°C。干燥细胞样品重悬于1 mL酸化甲醇(甲醇中含0.01%乙酸)中,用金属刮刀破碎,然后在超声浴中超声处理三次,每次20分钟。当沉淀被均匀充分粉碎至均一的砂状颗粒后,通过20,000 ×g离心10分钟将未溶解的细胞物质与甲醇提取物分离。提取物用蒸发离心机蒸发,样品重悬于100 μL 25/35/40%(v/v)甲醇/乙腈/水。使用配备1.7 mm Acquity UPLC BEH C18柱的Waters Acquity UPLC H-Class系统定量紫杉烷。分离采用10 μL进样,以30-80%乙腈水溶液梯度在4分钟内完成,流速0.35 mL/min。以228 nm处峰面积通过与市售标准品比较确定各紫杉烷浓度。
【数据】采样时间:接种后21天;酸化甲醇:0.01%乙酸;超声:3次×20 min;离心:20,000 ×g,10 min;重悬体积:100 μL;甲醇/乙腈/水比例:25/35/40%(v/v);进样量:10 μL;乙腈梯度:30-80%;梯度时间:4 min;流速:0.35 mL/min;检测波长:228 nm;重复数:3
4.6 通过RT-qPCR定量基因表达
为测定转基因细胞系中的基因表达,在接种至选择培养基21天后从每个细胞系取1 mL混合均匀的培养样品,设三个重复。细胞静置数分钟后用移液管移除培养基,样品保存于−80°C。使用Quick-RNA Plant Kit(Zymo)提取总RNA,按第4.3节所述在Bullet Blender中匀浆。RNA提取后立即合成cDNA。
【数据】采样时间:接种后21天;保存温度:−80°C;重复数:3;RNA提取试剂盒:Quick-RNA Plant Kit
研究结果
2.1 转基因细胞系的产生与表征
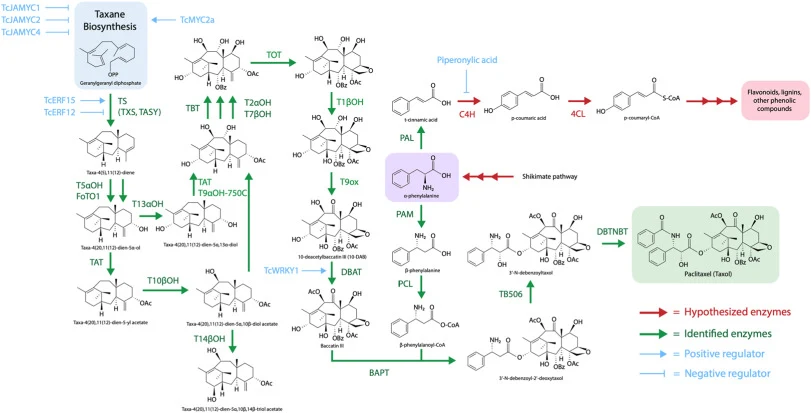
候选基因因其在紫杉醇生物合成通路中的多样角色而被选择(图1),以阐明在不同潜在瓶颈点增加通量的效果。本研究选择四个不同基因进行上调:TASY、DBAT、BAPT和DBTNBT,基于它们在控制紫杉烷生物合成通量中的推定作用。它们在细胞内的区室化定位也不同——TASY与前提MEP通路一起定位于质体,而DBAT、BAPT和DBTNBT均位于细胞质。
表达四个紫杉烷生物合成通路基因(在CaMV35S启动子和NOS终止子控制下)的转基因中国红豆杉细胞系以及空载体对照按方法(第4.2节)所述产生。由于红豆杉愈伤组织培养物不像其他植物物种那样有时会形成视觉上明显的转化细胞"菌落"(Arya et al., 2022),因此采用了几种其他方法并行确认转化(图2)。首先,在转基因红豆杉细胞系接种至悬浮培养后,我们比较了转基因和非转基因细胞系在选择性标记潮霉素处理下的表型(图2a)。虽然在愈伤组织培养再生阶段(添加潮霉素之前)未观察到表型差异,但在选择压力下暴露21天后,我们观察到明显的表型差异。未转化(野生型,WT)细胞系不加潮霉素时呈浅黄色,这是该特定细胞系健康有活力培养物的指示。当同一WT细胞系用10 μg/mL潮霉素处理时,培养物变为深棕色,这通常与酚类物质产生和细胞活力下降相关(Wilson et al., 2018)。转基因红豆杉细胞系经潮霉素处理后显示中间表型,表明部分未转化细胞死亡,但也有相当比例的细胞因潮霉素抗性基因转化而在选择中存活。
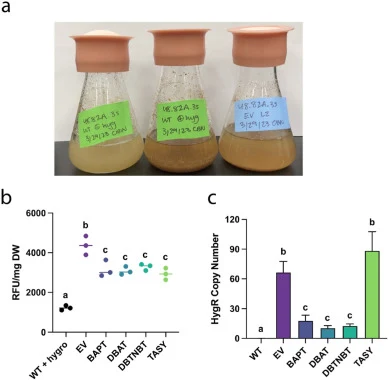
这些观察结果通过转基因细胞系代谢活性(与细胞活力直接相关)的测量得到证实(图2b)。所有转化细胞系的代谢活性均显著高于经潮霉素处理的未转化细胞系,其中空载体对照的活性也显著高于其他四个转基因株系。这可能归因于过表达通路基因的株系代谢负担增加,特别是因为所有基因都在非常强的组成型启动子控制下表达。为确定转化稳定性,这些转基因细胞系在选择压力下连续继代培养约五个月(7次转移,每21天一次),然后按第4.3节所述取样通过ddPCR测量HygR拷贝数(图2c)。正如预期,WT对照中的扩增几乎检测不到(HygR拷贝数<0.05),而所有转基因细胞系的拷贝数较高,根据细胞系不同约为10至85。这种大量且可变的基因组整合数对于非定位于特定基因组位点的农杆菌转化是常见的,特别是对于高效整合T-DNA的现代农杆菌菌株(Gelvin, 2003)。变异性高还因为与具有一致基因型的整株转基因植物不同,植物细胞培养物本质上由异质性细胞群体组成。因此,每个单独转化细胞可能具有独特的T-DNA整合模式,因为常规农杆菌转化中T-DNA以不同拷贝数整合到半随机位置(Gelvin, 2003)。尽管存在这种异质性,这些结果确实证实T-DNA整合足够稳定,可在选择压力下维持至少五个月,这与先前在红豆杉属中报道的结果一致(Zhang et al., 2011; Wilson et al., 2018)。
【数据】潮霉素浓度:10 μg/mL;选择时间:21天;继代培养时间:约5个月;转移次数:7次;转移间隔:每21天;WT HygR拷贝数:<0.05;转基因株系HygR拷贝数:约10-85;代谢活性单位:RFU/mg干重
2.2 红豆杉细胞系的代谢工程调控紫杉烷滴度和选择性
接下来,我们试图了解这四个通路基因过表达对紫杉烷积累的影响。转基因红豆杉细胞系在接种至选择培养基21天后取样,检测五种紫杉烷产物的积累:10-脱乙酰巴卡亭III(10-DAB)、巴卡亭III、10-脱乙酰紫杉醇(10-DAT)、头孢曼宁和紫杉醇(图3)。10-DAB和巴卡亭III是经典紫杉醇生物合成通路的中间体,而10-DAT和头孢曼宁是数十种"紫杉烷杂质"中的两种,其生物合成通路目前尚不清楚(Brzycki Newton et al., 2023)。通过研究这些产物和中间体的积累模式,我们可以深入了解其生物合成的调控。
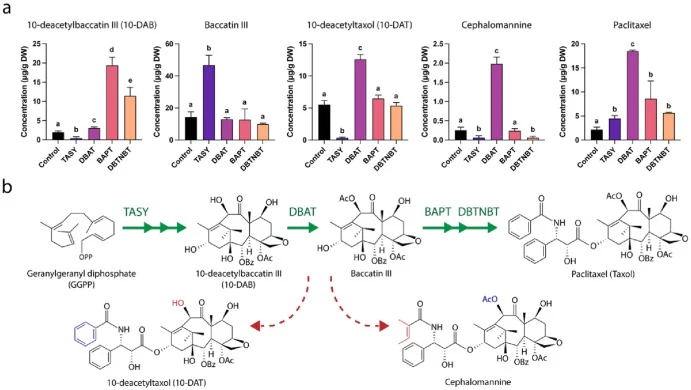
过表达四个通路基因(TASY、DBAT、BAPT和DBTNBT)中的每一个都对紫杉烷代谢产生了复杂且出乎意料的影响(图3a)。对于10-DAB,我们发现TASY过表达显著降低了积累,DBAT过表达导致轻微增加,而BAPT和DBTNBT过表达均导致该中间体积累大幅增加超过5倍。有趣的是,BAPT和DBTNBT转基因株系积累了最大量的10-DAB,而10-DAB是这些过表达酶的前体。这一结果与直觉相反,因为我们最初假设通过上调通路中较后步骤的基因表达,10-DAB积累要么保持不变,要么因10-DAB向后期中间体转化增加而减少。可能的情况是,改变这些后期通路基因的表达导致了正反馈循环,即这些基因表达增加引起通路中较早基因的表达上调,从而导致10-DAB积累。然而,仅从这些数据难以推断这种上调的确切机制。
对于后期前体巴卡亭III,我们观察到过表达TASY的细胞系积累显著增加,但其他细胞系均无显著变化。这一结果表明,对于过表达TASY的细胞系,通过前馈机制10-DAB向巴卡亭III的转化增加,但巴卡亭III向后期代谢物的转化仍然是瓶颈。最值得注意的是,四个通路基因中任何一个的过表达都导致紫杉醇显著增加,从TASY过表达的约2倍增加到DBAT过表达的超过8倍。我们还观察到这些细胞系中紫杉烷杂质10-DAT和头孢曼宁产生的有趣影响。TASY过表达导致10-DAT和头孢曼宁的积累均显著低于空载体对照——与该细胞系中10-DAB观察到的积累模式相似。显然,10-DAB的积累在控制这两种紫杉烷杂质积累中起重要作用,表明它们可能从该中间体合成。此外,这一结果表明,虽然TASY过表达导致的紫杉醇积累增加不如其他基因过表达那么大,但相对于其他紫杉烷杂质,紫杉醇的选择性可能增加。这与DBAT过表达观察到的情况相反,DBAT过表达导致紫杉醇积累增加约8倍,但10-DAT也增加约2倍,头孢曼宁增加约10倍。
【数据】采样时间:接种后21天;紫杉醇增加倍数:2倍(TASY)至8倍以上(DBAT);10-DAB增加:BAPT和DBTNBT过表达>5倍;10-DAB降低:TASY过表达显著降低;巴卡亭III增加:TASY过表达显著增加;10-DAT增加:DBAT过表达约2倍;头孢曼宁增加:DBAT过表达约10倍;检测波长:228 nm
2.3 转基因细胞系的代谢物谱分析
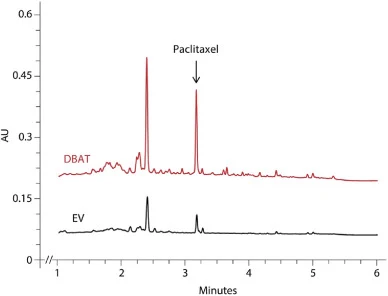
为进一步检查DBAT过表达如何影响紫杉烷代谢,我们比较了空载体对照和DBAT过表达细胞系的代表性UPLC色谱图(图4)。DBAT过表达细胞系的色谱图(红色)与空载体对照(黑色)相比,紫杉醇峰(保留时间约3.2分钟)明显增大。
【数据】紫杉醇保留时间:约3.2 min;检测波长:228 nm;色谱柱:Acquity UPLC BEH C18(1.7 mm)
2.4 转基因细胞系中紫杉烷生物合成通路基因和调控因子的表达
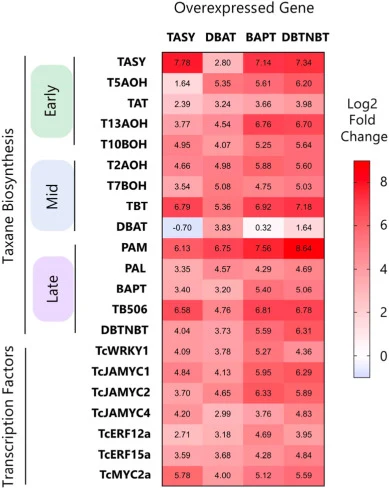
使用RT-qPCR测量四个转基因细胞系(列)以及空载体对照中紫杉烷代谢相关基因的表达(图5)。每个单元格中的数字代表相对于空载体对照的表达倍数变化。
【数据】检测方法:RT-qPCR;采样时间:接种后21天;重复数:3
2.5 基因-基因和基因-代谢物相关性分析
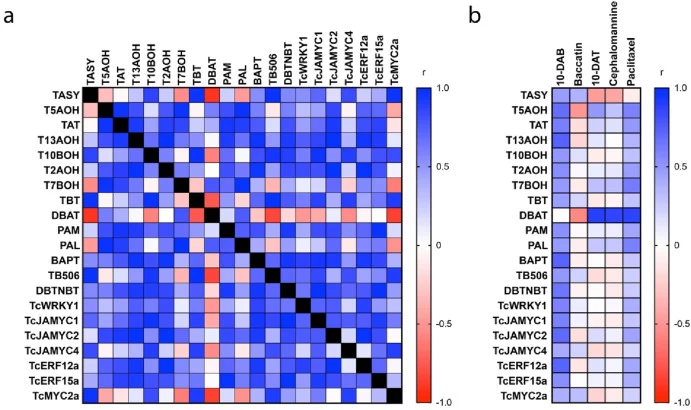
通过计算图5中报告的四个转基因细胞系中各基因表达log2倍数变化值之间的Pearson相关系数(r),生成基因-基因相关性图(图6a)。黑色方块表示...
【数据】统计方法:Pearson相关系数;数据类型:log2倍数变化值;样本数:4个转基因细胞系
讨论与解读
植物细胞培养正迅速发展为社会相关化合物的生产平台,包括小分子药物、治疗性蛋白和食品添加剂(Karki et al., 2021; Hasnain et al., 2022)。然而,PCC技术的发展在很大程度上受限于对生物学的根本认识不足以及理性代谢工程工具的缺乏。此前虽有研究在红豆杉植物细胞培养中过表达单个紫杉烷生物合成相关基因(Zhang et al., 2011; Li et al., 2012),但尚无研究使用同一来源细胞系直接比较不同基因过表达的效果。本研究表明,通过在中国红豆杉PCC中过表达紫杉烷生物合成通路的四个不同基因,我们既能提高对该物种基因调控的基础生物学认识,也能产生紫杉醇产量提高2至8倍的转基因细胞系。
本研究还产生了若干重要发现,不仅可指导红豆杉属代谢工程的未来工作,也可为更广泛的PCC系统提供参考。我们发现整合转基因的平均表达在所有转基因细胞系中差异很大。这种由整合方法引起的变异使我们的分析复杂化,因为我们观察到的转基因细胞系之间的差异至少部分是由于每个株系中转基因整合到基因组的不同位置所致。
本研究的关键发现之一是DBAT作为紫杉醇及其他紫杉烷类化合物生物合成的关键限速步骤。DBAT过表达不仅使紫杉醇产量增加最多(超过8倍),还导致紫杉烷杂质10-DAT增加约2倍、头孢曼宁增加约10倍。这表明DBAT在控制代谢通量分配中起核心作用。另一个重要发现是DBAT的调控方式与通路中其他基因明显不同——表达谱分析显示所有四个转基因细胞系中几乎全部通路基因和转录因子均被协同激活上调,但DBAT是显著例外,仅在其特异性靶向的细胞系中上调,表明DBAT可能受到比其他通路基因更紧密的不同调控。
编译者解读
该研究在合成生物学层面具有双重价值。方法上,采用组成型强启动子过表达策略虽简单直接,但HygR拷贝数在10至85之间的巨大变异提示农杆菌介导的随机整合带来了显著的表达异质性——这既是局限也是机遇:未来可结合CRISPR定向整合或诱导型启动子实现更精准的调控。发现DBAT作为关键限速节点且受独特调控,为理性设计紫杉醇高产细胞工厂提供了明确靶点。然而,植物细胞培养的异质性群体特性使得单细胞水平的调控逻辑仍难以精确解析,这也是该平台走向可预测工程化的核心挑战。
DOI: 10.1016/j.ymben.2026.102524