来源:In situ spatiotemporal tracking of endogenous protein dynamics with allosteric genetically encoded biosensor in living cells(Biosensors and Bioelectronics)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
蛋白质的功能由其丰度和亚细胞定位决定,但现有成像方法依赖过表达或基因组编辑,仅适用于外源或修饰蛋白,且可能引入伪影。本文报道了一种名为Step(时空追踪内源蛋白)的变构生物传感器,由靶蛋白识别适配体和双锁定荧光适配体模块组成。环状Step(circStep)系统将单次POI-适配体结合事件转化为变构开关,同时解锁两个笼状荧光适配体M18,恢复其活性构象并产生稳健荧光信号,实现对天然POI定位和丰度波动的高保真实时追踪。
研究背景
蛋白质丰度和分布受到严格调控,异常表达和定位与多种疾病相关。在活细胞内可视化蛋白质的定位和动态,对理解其生命周期过程——包括表达、运输、相互作用和降解——以及整体功能至关重要。免疫荧光(IF)最常用于固定细胞中目标蛋白的可视化,但传统IF技术不适合追踪活细胞中的蛋白质。基于荧光的策略,从基因编码标签到化学探针,已革新了活细胞蛋白质可视化。其中,基因编码标签如荧光蛋白(FP)融合、多种自标记蛋白标签和肽标签,已被广泛用于活细胞中追踪蛋白质。尽管这些成熟的遗传操作策略很有价值,但它们通常依赖过表达,且仅限于在N端或C端或柔性环内融合标签,可能破坏目标蛋白的天然细胞环境、折叠、定位和功能,并在下游分析中引入伪影。
研究方法
2.1 一般信息
T7 RNA聚合酶购自Novoprotein公司(中国上海)。Phanta Max超保真DNA聚合酶购自Vazyme(中国南京)。RevertAid逆转录酶、DNase I、RiboLock RNase抑制剂、链霉亲和素偶联的T1 Dynabeads、青霉素-链霉素和dNTP套装购自Thermo Fisher Scientific(美国马萨诸塞州沃尔瑟姆)。NTP混合物、焦碳酸二乙酯(DEPC)处理水和DMSO购自生工生物(中国上海)。生物素-16-UTP购自APExBIO(美国休斯顿)。限制性内切酶(Age I和EcoR I、HindⅢ和Nhe I)、10×NEBuffer™ 2和T4 DNA连接酶购自New England Biolabs有限公司(美国马萨诸塞州伊普斯维奇)。RNAiso Plus试剂购自Takara(日本)。LipoMax™试剂购自Sudgen(中国南京)。Hoechst 33342、Cell Counting Kit-8购自碧云天(中国上海)。HBC514、TNF-α、BAY 11-7082和Poly (I:C)购自MedChemExpress(美国新泽西州蒙茅斯 Junction)。Real-time PCR Easy™-SYBR Green I和ECL化学发光底物购自Foregene(中国成都)。小鼠单克隆ADAR1 p150抗体(sc-73408)购自Santa Cruz Biotechnology(美国德克萨斯州)。小鼠多克隆ADAR1抗体(14330-1-AP)购自Proteintech(美国罗斯蒙特)。NF-κB p65多克隆抗体、Histone H3多克隆抗体、GAPDH多克隆抗体和HRP偶联Affinipure山羊抗小鼠IgG(H + L)购自Proteintech(美国罗斯蒙特)。所有细胞培养基购自BasalMedia(中国上海)。胎牛血清(FBS)购自Excell Bio(中国上海)。所有寡核苷酸由生工生物(中国上海)合成,序列列于表S1–2和表S4–5。
【数据】试剂来源:T7 RNA聚合酶(Novoprotein);Phanta Max超保真DNA聚合酶(Vazyme);RevertAid逆转录酶、DNase I、RiboLock RNase抑制剂、链霉亲和素T1 Dynabeads、青霉素-链霉素、dNTP套装(Thermo Fisher Scientific);NTP混合物、DEPC水、DMSO(生工生物);生物素-16-UTP(APExBIO);限制性内切酶Age I、EcoR I、HindⅢ、Nhe I、10×NEBuffer™ 2、T4 DNA连接酶(New England Biolabs);RNAiso Plus(Takara);LipoMax™(Sudgen);Hoechst 33342、CCK-8(碧云天);HBC514、TNF-α、BAY 11-7082、Poly (I:C)(MedChemExpress);Real-time PCR Easy™-SYBR Green I、ECL底物(Foregene);ADAR1 p150抗体sc-73408(Santa Cruz);ADAR1抗体14330-1-AP、NF-κB p65抗体、Histone H3抗体、GAPDH抗体、HRP偶联山羊抗小鼠IgG(Proteintech);细胞培养基(BasalMedia);FBS(Excell Bio);寡核苷酸(生工生物)
2.2 光谱测量
纯化的Step(1 μM)与其同源POI(1 μM)在20 μL的1× NEB Buffer 2(50 mM NaCl、10 mM Tris-HCl、10 mM MgCl₂、1 mM DTT,25 °C时pH 7.9)中于37 °C孵育30分钟。然后将该混合物加入含HBC514(1 μM)的1× HBC反应缓冲液(40 mM HEPES pH 7.5、100 mM KCl、5 mM MgCl₂)中,最终体积为100 μL荧光检测体系。随后样品在37 °C孵育10分钟,加入黑色底96孔板。最后在室温下用Bio-Tek Synergy H1测量荧光强度(激发=460 nm,发射=514 nm)。对于荧光扫描光谱,激发波长为460 nm,发射波长设为490–600 nm范围,狭缝宽度为10 nm。
【数据】Step浓度:1 μM;POI浓度:1 μM;缓冲液:1× NEB Buffer 2(50 mM NaCl、10 mM Tris-HCl、10 mM MgCl₂、1 mM DTT,pH 7.9);孵育温度:37°C;孵育时间:30 min;HBC反应缓冲液:40 mM HEPES pH 7.5、100 mM KCl、5 mM MgCl₂;HBC514浓度:1 μM;终体积:100 μL;二次孵育温度:37°C;二次孵育时间:10 min;激发波长:460 nm;发射波长:514 nm;扫描范围:490–600 nm;狭缝宽度:10 nm
2.3 活细胞共聚焦显微镜成像
对于活细胞中所有目标的共聚焦显微镜成像,circStep质粒转染24小时后,将细胞接种于玻璃底激光共聚焦培养皿中,确保次日细胞汇合度约为60%。成像前,细胞用1×PBS洗涤两次,然后用Hoechst 33342溶液在37 °C染色10分钟。弃去染色液后,细胞用1×PBS洗涤两次,然后与荧光团染色缓冲液(终浓度2 μM HBC或100 μM DFHBI-1T荧光团,用含5% FBS的1×PBS细胞维持液稀释)在37 °C孵育10分钟。使用转盘显微镜拍摄细胞显微照片。不同荧光通道的参数根据细胞荧光实际情况确定(Hoechst 33342:λex = 405 nm,λem = 415–475 nm,蓝色通道;HBC514/DFHBI-1T:λex = 488 nm,λem = 500–550 nm,绿色通道;HBC620:λex = 568 nm,λem = 580–620 nm,红色通道)。所有图像由配备100×(或63×油镜)物镜的转盘共聚焦显微镜(Zeiss CELL Observer SD)拍摄。所有样品在相同参数下拍摄。数据用“ZEN”软件分析。对于3D成像,细胞转染circStep(NF-κB)质粒24小时,接种于玻璃底培养皿中培养至50%汇合。Hoechst 33342和HBC514荧光团染色后,用转盘共聚焦显微镜以1 μm间隔的不同z轴间距扫描z-stack图像的实时3D投影,并用ZEN软件进行3D重建处理。
【数据】转染时间:24 h;细胞汇合度:约60%;Hoechst 33342染色温度:37°C;染色时间:10 min;HBC终浓度:2 μM;DFHBI-1T终浓度:100 μM;荧光团孵育温度:37°C;孵育时间:10 min;Hoechst 33342通道:λex = 405 nm,λem = 415–475 nm;HBC514/DFHBI-1T通道:λex = 488 nm,λem = 500–550 nm;HBC620通道:λex = 568 nm,λem = 580–620 nm;物镜:100×或63×油镜;3D成像z轴间距:1 μm;3D成像细胞汇合度:50%
2.4 活细胞中蛋白质动态的实时追踪
对于使用circStep实时监测蛋白质动态,HeLa细胞转染circStep(ADAR1)质粒24小时,用Poly (I:C)(500 ng/mL)刺激预定时间。然后染色细胞,使用转盘共聚焦显微镜(Zeiss CELL Observer SD)连续观察和成像一段时间(拍摄延时图像,每5分钟一帧)。对于监测蛋白质NF-κB核或质转位的时空动态,HeLa细胞转染circStep(NF-κB)质粒24小时,接种于玻璃底培养皿中,次日细胞汇合度达60%。然后加入TNF-α刺激细胞中NF-κB的核转位。随后染色细胞,使用转盘共聚焦显微镜连续观察和成像(拍摄延时图像,每30秒一帧)。此外,在动态成像中,细胞培养皿最初置于载物台上并聚焦,然后固定位置直至整个拍摄过程完成。
【数据】转染时间:24 h;Poly (I:C)浓度:500 ng/mL;延时拍摄间隔(ADAR1):每5 min一帧;细胞汇合度(NF-κB):60%;延时拍摄间隔(NF-κB):每30 s一帧
2.5 流式细胞术分析
对于转染circStep质粒细胞的荧光强度流式细胞术分析,不同细胞转染相应circStep质粒48小时。然后消化细胞,1000 g、4 °C离心5分钟,弃上清,用冷1×PBS洗涤细胞,重悬于适当体积的细胞维持液(含5% FBS的1×PBS)中。随后向细胞悬液中加入HBC514(200 nM),轻轻混匀,置于37 °C培养箱中20分钟。孵育后,将细胞悬液置于冰上,用流式细胞仪(BD FACScalibur,美国)分析每样品10,000个细胞的荧光强度。所有待测样品在相同参数下操作。数据用“FlowJo”软件(V10,BD)处理和分析。
【数据】转染时间:48 h;离心条件:1000 g、4°C、5 min;HBC514浓度:200 nM;孵育温度:37°C;孵育时间:20 min;分析细胞数:10,000个/样品;流式细胞仪:BD FACScalibur;分析软件:FlowJo V10
研究结果
3.1 使用微孔-SELEX鉴定靶向ADAR1蛋白的RNA适配体
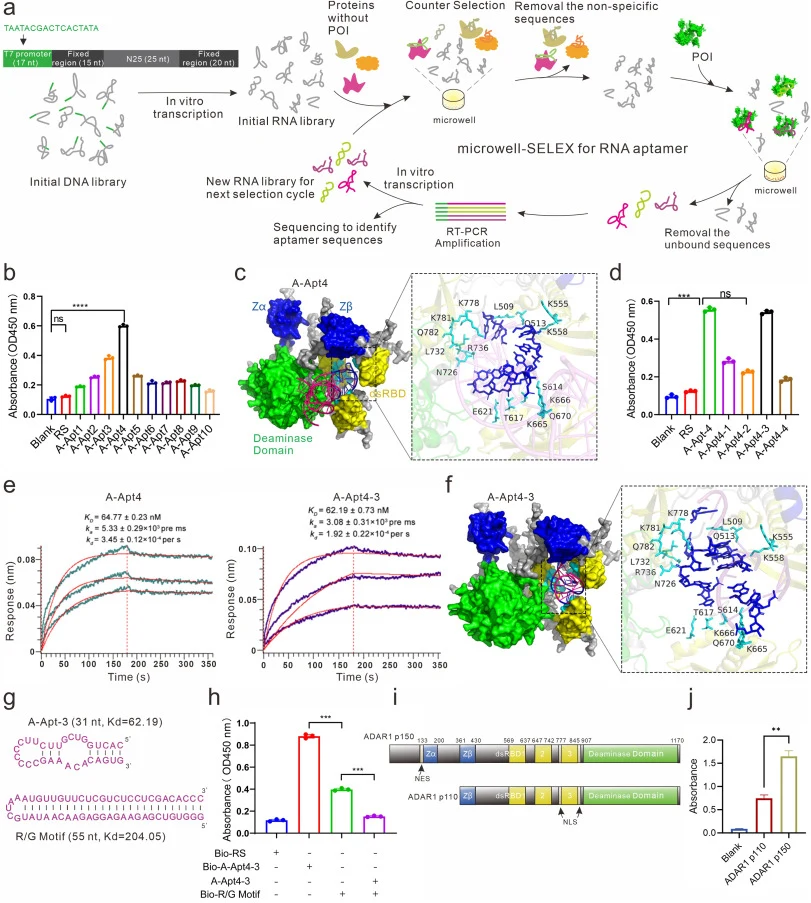
ADAR1(腺苷脱氨酶,RNA特异性1)通过将双链RNA中的腺苷转化为肌苷来调控RNA诱导的免疫反应。基于ADAR1已开发了一系列RNA单碱基编辑技术。它也是衰老和免疫的重要调节因子。然而,过表达ADAR1会引发广泛的脱靶RNA编辑,使传统融合蛋白成像与ADAR1不兼容,阻碍了对其真实功能的研究。因此,选择ADAR1作为概念验证靶标来开发Step。首先,为分离靶向ADAR1并作为POI传感模块的RNA适配体,以HEK-293T细胞产生的ADAR1 p150蛋白(图S1a)为靶标,进行本课题组建立的微孔-SELEX实验(Wang et al., 2024)。在本工作中,我们升级了微孔-SELEX:将先前用于DNA适配体筛选的策略改造为RNA适配体筛选(图1a)。简言之,ssDNA文库包含众多片段,每个片段含有一个25 nt随机核心,两侧为确定的恒定区,5′端含有T7启动子用于体外转录。微孔板用ADAR1 p150蛋白(全长)包被,与体外转录RNA文库孵育进行SELEX。为减少非特异性结合RNA,从第六轮后开始引入ADAR1 p150敲低HEK-293T细胞的总蛋白作为负靶标进行反筛选。经过额外十二轮筛选后,富集的适配体池通过下一代测序分析。其中,酶联免疫吸附测定(ELISA)确认A-Apt4为最高亲和力变体,被选为候选适配体(图1b)。ADAR1 p150除脱氨酶结构域(绿色)外,含有两个左手Z-核酸(Z-RNA)结合结构域(Zα和Zβ,蓝色)和三个dsRNA结合结构域(RBD-I、RBD-II和RBD-III,黄色)(Chen et al., 2025;Rehwinkel和Mehdipour, 2025)。我们用RNA composer分析了A-Apt4的3D结构,并进行分子对接模拟,揭示蓝色标记的核碱基参与与RBDs的结合(图1c),暗示A-Apt4不太可能干扰ADAR1的脱氨酶活性。根据结构和对接结果,对A-Apt4的非必需区域进行截短和优化,包括A-Apt4-1、A-Apt4-2、A-Apt4-3和A-Apt4-4,分别去除5′和3′端序列中潜在的非必需序列(图S1b)。截短变体适配体A-Apt4-3明显优于其余变体,因其高亲和力水平与A-Apt4相当(图1d,图S1c)。尽管A-Apt4-1和A-Apt4-2含有A-Apt4-3的序列,但其结合亲和力显著低于A-Apt4-3,暗示额外序列也可能干扰RNA构象的正确折叠。这种结合能力通过流式细胞术和荧光图像进一步确认(图S1d–e)。结合动力学通过生物层干涉术(BLI)测定,A-Apt4-3的解离常数(Kd)为62.19 nM,与A-Apt4(64.77 nM)相当,证明其高亲和力(图1e)。此外,适配体A-Apt4-3的分子对接模拟与适配体A-Apt4高度一致(图1f)。总体而言,这些结果表明RNA适配体A-Apt4-3具有优越的靶向ADAR1 p150蛋白的结合能力。随后,为基准评估A-Apt4-3的结合亲和力及其在p150上的表位,我们采用充分表征的R/G基序(55 nt)作为阳性对照(Merkle et al., 2019;Reautschnig et al., 2022)。这个20-bp的不完美发夹已知可招募内源性ADARs并指导位点特异性RNA编辑。BLI分析显示R/G基序的Kd为204.05 nM,表明A-Apt4-3的亲和力比R/G基序高3倍以上(图1g,图S1f)。竞争性ELISA结果显示适配体A-Apt4-3和R/G基序结合ADAR1蛋白的同一表位(图1h)。分子动力学模拟进一步确认不干扰脱氨酶活性的R/G基序也结合ADAR1 p150的RBDs,这与RNA适配体A-Apt4-3一致(图S1g),表明适配体A-Apt4-3既不阻碍也不改变ADAR1的脱氨酶活性。此外,选择性是另一个非常重要的性能。我们评估了适配体A-Apt4-3与表达不同量ADAR1 p150的细胞裂解液的结合能力。ELISA分析显示荧光与ADAR1 p150的表达呈正相关(图S1h–i)。进一步,我们探究适配体A-Apt4-3是否能区分ADAR1的两个剪接变体p150和p110:两者均含Zβ结构域,但仅ADAR1 p150携带额外的Zα结构域和核输出信号(NES)(图1i)。我们进一步对p110和适配体A-Apt4-3进行分子对接模拟,发现p110和p150的蛋白质折叠构象不完全相同,表明Zα结构域对蛋白质构象折叠有适度影响。此外,分子对接模拟揭示尽管适配体A-Apt4-3也结合ADAR1 p110的RBD区域,但结合位点显著减少(图S1j)。同时,ELISA分析显示适配体A-Apt4-3同时结合p150和p110,但对p150的亲和力明显更高(图1j),这与分子对接模拟结果一致。总的来说,这些结果表明已成功分离出A-Apt4-3——一种高亲和力抗ADAR1 RNA适配体,不扰动ADAR1的脱氨酶活性,适合下游研究。特异性必须在后续Step设计中明确工程化。
【数据】ssDNA文库随机核心:25 nt;反筛选起始轮次:第六轮后;额外筛选轮次:12轮;A-Apt4-3 Kd:62.19 nM;A-Apt4 Kd:64.77 nM;R/G基序长度:55 nt;R/G基序Kd:204.05 nM;亲和力倍数:A-Apt4-3比R/G基序高3倍以上;ADAR1 p150结构域:2个Z-RNA结合结构域(Zα和Zβ)、3个dsRNA结合结构域(RBD-I、RBD-II、RBD-III)、1个脱氨酶结构域;p150 vs p110差异:p150含额外Zα结构域和NES
3.2 变构Step的设计与性能优化
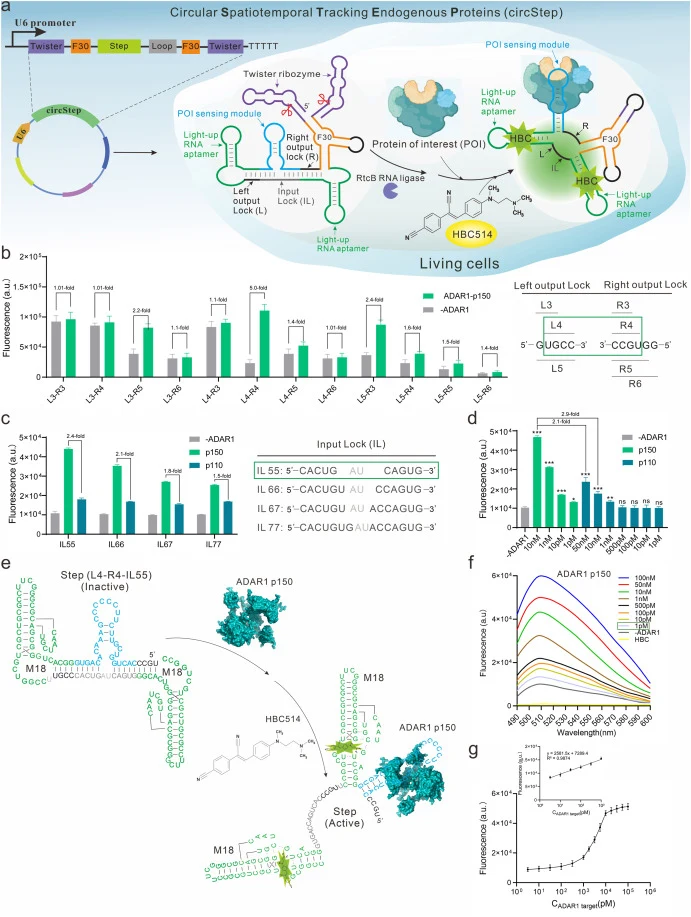
变构Step的设计如图2a所示。为使Step能够在活细胞中原位追踪天然蛋白质,我们引入tornado表达系统产生无5′和3′端的环状Step(circStep),可有效防止外切核酸酶降解(Litke和Jaffrey, 2019)。如我们先前的研究(Yuan et al., 2025;Zheng et al., 2022),我们通过将线性Step和F30支架(橙色)融合体两侧连接两个twister核酶(紫色)来工程化circStep;自催化切割产生互补末端,由内源性RNA连接酶RtcB密封形成circStep。其中,Step包含四个功能模块:1)一个POI传感模块(蓝色),本质上是一个特异性结合POI的适配体,作为输入信号识别元件;2)两个发光RNA适配体模块(M18,绿色)作为荧光报告元件;3)双锁定模块(左输出锁和右输出锁,黑色),与M18部分互补以关闭输出信号M18;4)输入锁(绿色),与POI传感模块部分配对以封闭输入信号。在POI不存在时,Step被输入和输出锁模块锁定为非活性、排除荧光染料的构象,隔离两个M18适配体。与适配体结构域结合后,蛋白质触发构象开关,恢复活性结构,释放M18片段进入其活性折叠,捕获荧光染料并点燃明亮、可检测的荧光。总体而言,Step将单次POI-适配体结合事件转化为变构开关,同时激活两个荧光适配体,实现定量POI分析。
【数据】circStep组成:线性Step + F30支架 + 2个twister核酶;Step功能模块:1个POI传感模块(适配体)、2个发光RNA适配体模块(M18)、2个双锁定模块(左输出锁和右输出锁)、1个输入锁;密封酶:内源性RNA连接酶RtcB
3.3 构建环状Step以可视化活细胞中的天然ADAR1
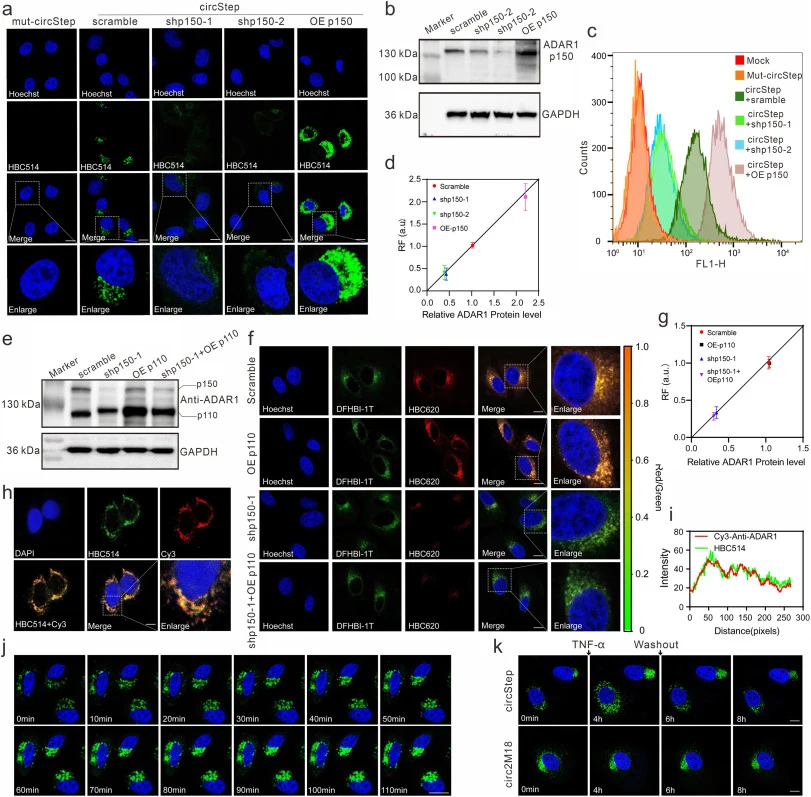
为验证circStep在活细胞中可视化天然ADAR1的能力,我们进行了共聚焦荧光成像。HeLa细胞转染编码circStep的质粒48小时,使用转盘共聚焦显微镜拍摄。Mut-Step:具有突变POI传感模块的circStep,无法结合靶标。如图3a所示,转染circStep(ADAR1)的HeLa细胞在绿色通道中显示强荧光信号,而转染Mut-Step的细胞显示可忽略的荧光,证明circStep对ADAR1的特异性响应。此外,circStep(ADAR1)的荧光信号主要定位于细胞质,与ADAR1 p150的已知亚细胞定位一致。为确认circStep检测的是内源性ADAR1而非外源表达蛋白,我们使用ADAR1特异性siRNA敲低ADAR1。如图3b所示,ADAR1敲低后circStep荧光信号显著降低,而对照siRNA处理的细胞保持强荧光,证明circStep确实检测内源性ADAR1。我们进一步测试了circStep是否影响ADAR1的脱氨酶活性。进行RNA编辑实验,结果显示circStep表达不影响ADAR1介导的RNA编辑效率(图S2),确认circStep不干扰ADAR1功能。此外,我们评估了circStep的灵敏度。用不同量circStep质粒转染HeLa细胞,观察到荧光强度呈质粒剂量依赖性增加(图3c)。流式细胞术分析进一步确认circStep荧光强度与ADAR1表达水平正相关(图3d)。这些结果表明circStep能够以高特异性和灵敏度可视化活细胞中的天然ADAR1。
【数据】转染时间:48 h;成像设备:转盘共聚焦显微镜;Mut-Step:突变POI传感模块,无法结合靶标;circStep(ADAR1)荧光定位:细胞质;敲低方法:ADAR1特异性siRNA;检测目标:内源性ADAR1;RNA编辑实验:circStep表达不影响ADAR1介导的RNA编辑效率;灵敏度:荧光强度呈质粒剂量依赖性增加;流式细胞术:荧光强度与ADAR1表达水平正相关
3.4 监测NF-κB核转位的时空动态
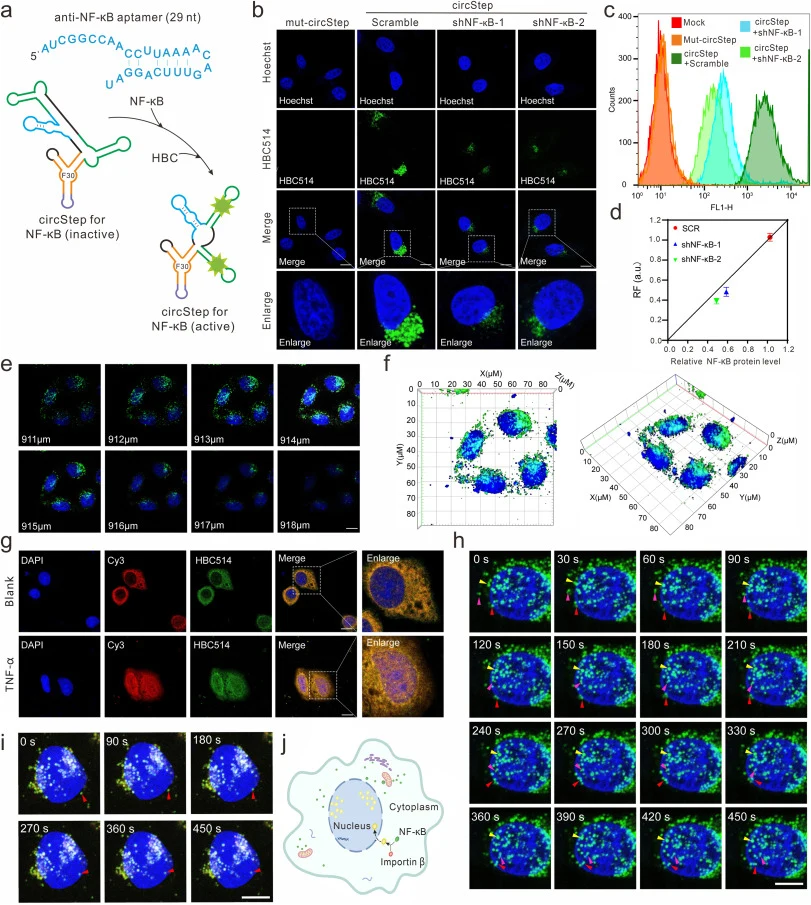
为展示circStep监测蛋白质转位的时空动态能力,我们构建了靶向NF-κB的circStep。NF-κB是一种转录因子,在静息状态下主要定位于细胞质,在TNF-α等刺激下迅速转位至细胞核。circStep(NF-κB)的结构如图4a所示,NF-κB传感适配体的序列信息也一并展示。我们首先验证了circStep(NF-κB)在活HeLa细胞中的性能。如图4b所示,转染circStep(NF-κB)的HeLa细胞在绿色通道中显示荧光信号,主要定位于细胞质。用TNF-α刺激后,circStep(NF-κB)荧光信号迅速从细胞质转位至细胞核,与NF-κB的已知行为一致。相反,转染Mut-circStep的细胞在TNF-α刺激后未显示荧光转位,证明circStep(NF-κB)特异性检测NF-κB。为实时追踪NF-κB核转位,我们每30秒拍摄延时图像。如图4c所示,TNF-α刺激后circStep(NF-κB)荧光信号在约5分钟内从细胞质转位至细胞核,并在约15分钟后返回细胞质。这一动态过程通过共聚焦显微镜清晰捕捉。此外,我们使用BAY 11-7082(一种NF-κB抑制剂)预处理细胞,观察到BAY 11-7082显著抑制TNF-α诱导的NF-κB核转位(图4d),证明circStep可用于监测NF-κB转位的药理学调控。我们还进行了3D成像以可视化NF-κB的核转位。如图4e所示,z-stack图像和3D重建清晰显示NF-κB从细胞质到细胞核的转位。这些结果表明circStep能够实时、动态地追踪活细胞中蛋白质的核转位。
【数据】靶标:NF-κB;静息状态定位:细胞质;刺激物:TNF-α;转位时间:约5 min从细胞质到细胞核;返回时间:约15 min后返回细胞质;延时拍摄间隔:每30 s一帧;抑制剂:BAY 11-7082;3D成像z轴间距:1 μm;Mut-circStep:无荧光转位
3.5 基于成像的高通量筛选重编程蛋白质核质定位的调控因子
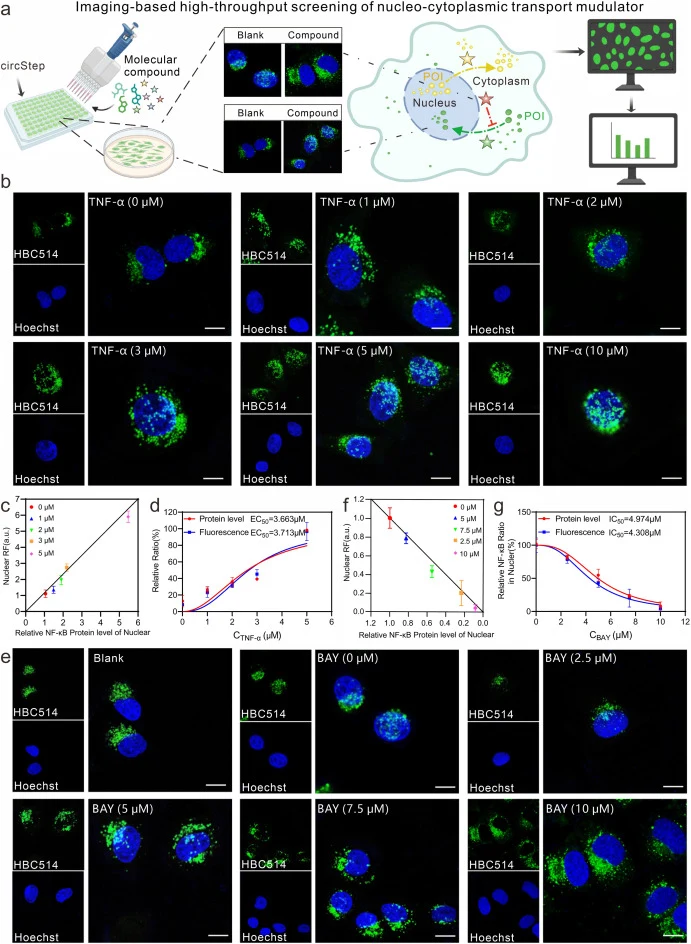
基于circStep平台,我们建立了基于成像的高通量筛选平台,用于鉴定重编程蛋白质核质定位的调控因子。工作流程如图5a所示:使用circStep在转盘共聚焦显微镜上进行基于成像的高通量筛选。该平台利用circStep监测POI的核质定位变化,通过自动化成像和图像分析筛选化合物或基因。我们使用circStep(NF-κB)作为概念验证进行筛选。用化合物库处理转染circStep(NF-κB)的HeLa细胞,然后TNF-α刺激,通过自动化共聚焦显微镜成像,分析NF-κB的核质定位。如图5b所示,筛选鉴定出多个调控NF-κB核转位的化合物。其中,BAY 11-7082(已知NF-κB抑制剂)被鉴定为阳性对照,验证了筛选平台的可靠性。此外,筛选还鉴定出其他调控NF-κB定位的化合物,证明该平台可用于高通量筛选重编程蛋白质定位的调控因子。这些结果表明circStep平台不仅能够追踪内源蛋白质动态,还可扩展为强大的高通量筛选工具,用于药物发现,特别是重编程蛋白质定位的疗法。
【数据】筛选平台:基于成像的高通量筛选;靶标:NF-κB;刺激物:TNF-α;阳性对照:BAY 11-7082;筛选结果:鉴定出多个调控NF-κB核转位的化合物
讨论与解读
蛋白质功能与其丰度和独特的亚细胞定位相关。在生物学条件下进行蛋白质分析对于理解其功能不可或缺。迄今为止,活细胞中工程化或修饰蛋白质的分布和动态成像技术已有应用。这些方法通常需要过表达POI或操作基因组,可能导致错误结论。本文工程化了一种变构生物传感器,将单次POI-适配体结合事件转化为变构开关,用于荧光POI检测,抗POI适配体作为识别结构域,发光适配体作为信号报告器。circStep能够原位捕获和实时监测天然POI,可视化其定位、浓度动态和运动。这不仅为阐明活细胞中真实功能提供了强大工具,还建立了强大的高内涵平台,用于按需重编程蛋白质再定位。与需要过表达并报告外源蛋白的荧光蛋白融合相比,circStep使用POI特异性适配体感知内源性天然蛋白质——更好地反映其真实生理状态。不同于依赖编辑效率的基因组编辑平台,circStep既不编辑DNA也不编辑RNA,规避了编辑效率限制。
编译者解读:本研究核心创新在于将适配体从单纯的识别元件升级为变构开关,通过双锁定M18设计实现"单次结合、双倍信号"的输出逻辑,显著降低背景并提高特异性。circStep的"即插即用"特性使其可快速适配不同POI,仅需替换传感适配体序列。然而,该技术目前依赖外源递送circStep质粒,体内应用的递送效率和免疫原性仍需评估;适配体的筛选周期和亲和力仍是限速步骤。总体而言,该平台为内源蛋白动态研究提供了不干扰生理状态的新范式,在药物筛选中具有转化潜力。
参考来源
期刊:Biosensors and Bioelectronics, 2026
DOI: 10.1016/j.bios.2026.118829
DOI: 10.1016/j.bios.2026.118829