来源:From mutation to optimization: Adaptive codon usage in Ocimum chloroplasts and implications for metabolic engineering(Ecological Genetics and Genomics)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
叶绿体基因组中同义密码子的使用并不均等,这种现象被称为密码子使用偏性(CUB),它直接影响翻译效率与准确性。本研究系统分析了五种罗勒属植物——美洲罗勒、罗勒、丁香罗勒、非洲罗勒和圣罗勒——完整叶绿体基因组的CUB模式。所有基因组均呈现保守的四分体结构,且表现出明显的A/T偏好,同义第三位GC含量仅为28.1%–28.5%。RSCU分析显示所有物种强烈偏好以A或U结尾的密码子。ENC值介于47.81–48.20之间,表明偏性较弱至中等。多维分析一致表明,自然选择与突变压力共同塑造了这些叶绿体基因组的CUB格局。该研究为罗勒属叶绿体工程与遗传改良提供了密码子使用框架。
研究背景
在植物中,遗传信息由密码子编码——密码子是蛋白质合成过程中指定氨基酸的三联体核苷酸。虽然大多数氨基酸由多个同义密码子编码,但这些密码子的使用频率极少相等,这一现象即密码子使用偏性(CUB)。尽管同义密码子指定相同的氨基酸序列,但来自核糖体图谱、蛋白质组学和功能研究的证据表明,密码子选择显著影响翻译效率、翻译速率与准确性、mRNA稳定性以及共翻译蛋白质折叠动力学。密码子最优性直接决定核糖体翻译的速度与精度:最优密码子解码更快更高效,而非最优密码子翻译更慢,且更易诱导核糖体暂停。当非最优密码子成簇出现时,这些暂停会被放大,改变核糖体沿mRNA的移动。此类暂停常与局部mRNA二级结构相互作用,既可促进新生多肽链的正确折叠,也可能阻碍高效蛋白质合成。叶绿体基因组在光合作用中发挥核心作用,因其结构保守、母系遗传和重组率低而表现出相对稳定的CUB模式,使其成为研究进化力量和遗传多样性的理想模型,其大小通常为120–160 kb。
研究方法
2.1 基因组与序列数据收集
本研究聚焦于唇形科罗勒属的五个物种:美洲罗勒(Ocimum americanum)、罗勒(Ocimum basilicum)、丁香罗勒(Ocimum gratissimum)、非洲罗勒(Ocimum kilimandscharicum)和圣罗勒(Ocimum tenuiflorum)。这五个特定物种被精心选择用于分析,因为它们代表了NCBI RefSeq数据库中该属最完整、高质量且完全注释的叶绿体组装序列(NCBI; http://www.ncbi.nlm.nih.gov/),登录号列于表1。仅满足以下标准的蛋白质编码基因被纳入分析:存在有效的起始密码子(ATG);以标准终止密码子(TAA、TAG或TGA)终止;无内部终止密码子;为消除统计循环性并确保参考模型准确性,所有源自反向重复(IR)区域的重复序列被严格合并为单一代表性条目。由此生成了每个物种62至68个独特功能基因的生物学纯化去冗余参考集。每个CDS数据集在下游分析前按物种进行整理。
【数据】物种数:5;数据库:NCBI RefSeq;纳入基因数:62–68个/物种;起始密码子:ATG;终止密码子:TAA/TAG/TGA;IR重复处理:合并为单一代表条目
2.2 核苷酸组成与GC含量分析
对每个CDS计算核苷酸组成(A、T、G和C频率)。GC含量在第一(GC1)、第二(GC2)和第三(GC3)密码子位置以及总GC含量(GC total)水平进行估算。这些参数使用Python脚本计算。
【数据】分析指标:A/T/G/C频率、GC1、GC2、GC3、GC total;计算工具:Python脚本
2.3 二核苷酸相对丰度(Pxy)分析
为评估突变偏性和选择压力是否在单核苷酸水平之上影响碱基组成,计算了所有16种二核苷酸组合的二核苷酸相对丰度(Pxy)。二核苷酸的期望频率是其组成单核苷酸频率的乘积。相对丰度使用标准比值比公式计算:Pxy = fxy/(fx × fy),其中fxy是二核苷酸XY的观测频率,fx和fy是单个核苷酸X和Y的观测频率。按照标准生物学阈值,Pxy ≥ 1.23的二核苷酸被认为显著过表达(富集),而Pxy ≤ 0.78的被认为显著低表达(缺失)。
【数据】计算公式:Pxy = fxy/(fx × fy);富集阈值:Pxy ≥ 1.23;缺失阈值:Pxy ≤ 0.78;分析组合数:16种二核苷酸
2.4 有效密码子数(ENC)分析
计算有效密码子数(ENC)以量化基因内密码子使用偏性程度。ENC值范围为20(极端偏性,每个氨基酸仅一个密码子)至61(无偏性,同义密码子等量使用)。ENC值使用自定义Python脚本程序化计算,并根据偏性程度对基因进行分类。较低的ENC值表示较强的密码子使用偏好。
【数据】ENC范围:20(极端偏性)–61(无偏性);计算工具:自定义Python脚本
2.5 相对同义密码子使用度(RSCU)分析
计算相对同义密码子使用度(RSCU)值以确定独立于氨基酸组成的密码子偏好。RSCU定义为观测密码子频率与假设同义密码子等量使用时的期望频率之比。RSCU >1.0表示偏好使用,RSCU <1.0表示使用不足。生成物种特异性RSCU谱并在罗勒属物种间进行比较。
【数据】RSCU阈值:>1.0为偏好使用,<1.0为使用不足;比较方式:物种间RSCU谱比较
2.6 推定最优密码子的确定
为消除按GC3或ENC对基因排序所固有的循环推理,使用生物学验证的参考集确定最优密码子。从每个物种中提取八个高表达核心光合基因(psbA、rbcL、atpA、atpB、rps14、ycf3、petA、psbC)作为标准参考集。采用双阈值方法严格鉴定最优密码子:功能性RSCU >1.0(表示偏好使用)和ΔRSCU ≥0.08(通过从参考集RSCU中减去全基因组RSCU计算)。这确保所鉴定的密码子代表推定的翻译选择而非背景突变噪声。
【数据】参考基因集:psbA、rbcL、atpA、atpB、rps14、ycf3、petA、psbC(共8个);阈值1:RSCU >1.0;阈值2:ΔRSCU ≥0.08;ΔRSCU计算:参考集RSCU − 全基因组RSCU
2.7 密码子适应指数(CAI)
计算密码子适应指数(CAI)值以评估基因的翻译效率。CAI使用源自各物种高表达基因的参考集计算。CAI值范围为0至1,较高值表示对偏好密码子的更强适应。CAI值使用从去冗余参考集导出的相对适应性权重程序化计算。
【数据】CAI范围:0–1;参考集来源:各物种高表达基因;计算基础:去冗余参考集的相对适应性权重
2.8 ENC-plot分析
通过将ENC值对GC3含量作图进行ENC-plot分析,以评估突变压力和自然选择的相对贡献,排除色氨酸(Trp)和甲硫氨酸(Met)——它们不具有同义密码子。期望ENC值根据Wright提出的标准方程推导:ENC = 2 + GC3s + 29/[GC3s² + (1−GC3s)²]。位于期望曲线附近的基因被推断为主要受突变压力影响,而显著偏离曲线下方的基因提示翻译选择的作用。ENC比率定义为观测与期望ENC值之间的相对差异:ENC ratio = (ENCexp − ENCobs)/ENCexp。
【数据】排除密码子:Trp、Met(无同义密码子);期望ENC公式:ENC = 2 + GC3s + 29/[GC3s² + (1−GC3s)²];ENC比率公式:(ENCexp − ENCobs)/ENCexp
2.9 中性绘图分析
通过将GC12(GC1和GC2的平均值)对GC3作图进行中性绘图分析,以检验突变与选择之间的平衡。进行回归分析,回归线斜率用于估计突变压力的相对影响。斜率接近1表示突变主导,斜率接近0表示强选择约束。
【数据】GC12定义:GC1与GC2的平均值;斜率接近1:突变主导;斜率接近0:强选择约束
2.10 奇偶规则(PR2)偏性绘图分析
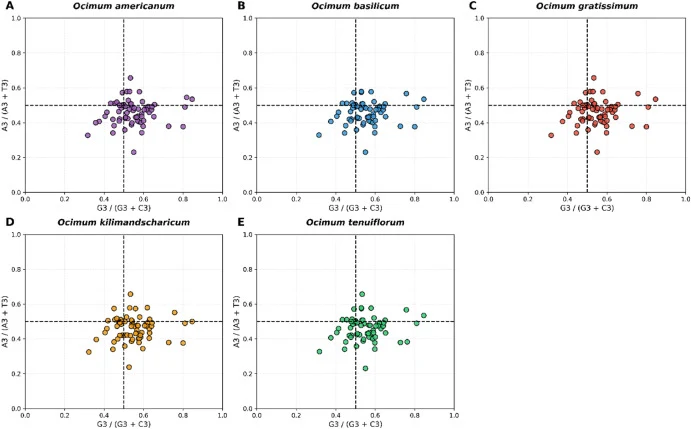
生成奇偶规则2(PR2)偏性图以评估第三密码子位置互补核苷酸之间的平衡。PR2图以A3/(A3+T3)为y轴、G3/(G3+C3)为x轴构建。图的中心是A = U且G = C的位置,显示突变压力与自然选择在密码子使用上无偏差。偏离中心(0.5, 0.5)被解释为选择压力和非对称突变偏性影响密码子使用的证据。
【数据】y轴:A3/(A3+T3);x轴:G3/(G3+C3);中心点:(0.5, 0.5);偏离中心解释:选择压力+非对称突变偏性
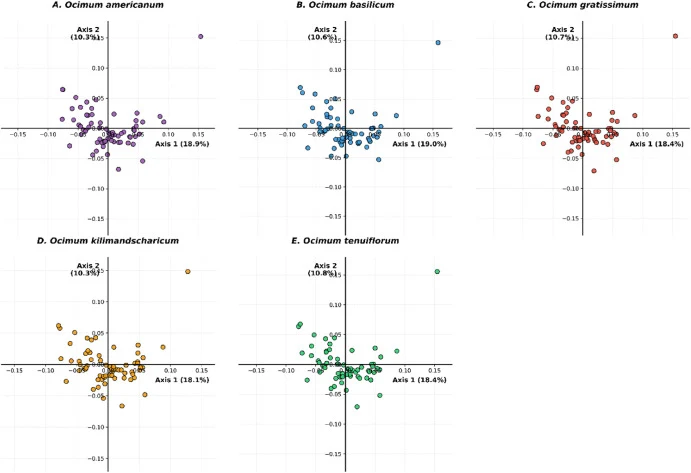
2.11 对应分析(COA)
基于RSCU值进行多变量对应分析(COA),以鉴定基因和物种间密码子使用的主要趋势和变异来源。COA将多维密码子使用数据降维为主轴,第一轴代表最显著的变异来源。为准确确定主要进化驱动因素的绝对方差解释量,相对惯性是针对真实的59维向量空间(排除Met、Trp和终止密码子)计算的,而非强制进行二维聚类。每个基因表示为一个59维向量,每个维度对应每个有义密码子的RSCU值。
【数据】向量维度:59维(排除Met、Trp和终止密码子);每个维度对应:各密码子的RSCU值;第一轴:最显著变异来源
研究结果
3.1 叶绿体基因组组织
五个罗勒属叶绿体基因组呈现典型的四分体结构,具有高度的结构保守性——这是唇形科的特征模式,也与被子植物叶绿体组织一致。LSC区域变化范围狭窄,从82,782 bp(O. kilimandscharicum)到83,470 bp(O. gratissimum),而SSC长度范围为17,587 bp至17,624 bp,每个IR在所有物种中约为25.7 kb,表明罗勒属内叶绿体结构具有强保守性。这种主要由LSC和SSC的扩张/收缩而非IR破坏驱动的小幅大小波动模式,与其他唇形科和被子植物叶绿体基因组的观察一致——IR长度通常是最保守的组分。相关属如香科科属(同属唇形科)的叶绿体基因组比较分析表明,IR区域通常为25.3至25.4 kb,将罗勒属置于该科的预期范围内。
【数据】LSC范围:82,782 bp(O. kilimandscharicum)–83,470 bp(O. gratissimum);SSC范围:17,587–17,624 bp;IR长度:约25.7 kb;香科科属IR参考:25.3–25.4 kb
3.1.1 基因含量、GC组成与核苷酸组成
五个叶绿体基因组编码130–134个基因,包括36–37个tRNA基因、8个rRNA基因和85–90个蛋白质编码基因,表明基因含量基本保守,同属物种间仅在蛋白质编码基因和tRNA基因数量上有微小差异。基因库的这种有限变异是光合陆生植物叶绿体基因组的典型特征,提示罗勒属中大多数结构进化是通过细微变化(如基因丢失/重复或假基因化)而非大规模基因获得或缺失进行的。总GC含量高度保守,窄幅范围为38.13%至38.33%,表明被子植物质体典型的显著A/T富集基因组背景。GC含量的位置分析揭示了非均匀分布。第一(GC1)和第二(GC2)位置的GC含量平均分别为46.5%和39.8%,见表2。相比之下,同义第三位(GC3)的GC含量显著降至28.16%–28.58%。所有罗勒属物种中一致的GC1 > GC2 > GC3模式反映了第一和第二密码子位置受到更强的进化约束——这些位置的替换常改变氨基酸——而第三位置频繁允许同义变化。因此,第三位置积累了更多A/T核苷酸,表现出更大的组成灵活性。同时,第三位置被A/T核苷酸严重主导,A3%和T3%平均分别为32.8%和38.7%。这种差异表明罗勒属叶绿体基因组中存在有利于A/T结尾密码子的强突变偏性。这种对A/T结尾密码子的偏好——其中T优于A、G优于C——是植物叶绿体基因组的特征,已在不同植物科中广泛报道。该模式源于突变偏性和翻译选择的联合效应。叶绿体基因组倾向于积累A/T核苷酸,因为 underlying 突变和修复过程偏好A/T而非G/C。同时,通过RSCU分析鉴定的偏好密码子表明存在微弱但有意义的选择,偏好与有限叶绿体tRNA池匹配的密码子。由于叶绿体含有的tRNA种类少于细胞质,某些A/T结尾密码子被偏好以提高翻译效率和准确性。此外,不同功能基因群显示出不同的密码子偏好,反映了它们特定的翻译需求。
【数据】基因总数:130–134;tRNA基因:36–37;rRNA基因:8;蛋白质编码基因:85–90;总GC含量:38.13%–38.33%;GC1平均:46.5%;GC2平均:39.8%;GC3范围:28.16%–28.58%;A3%平均:32.8%;T3%平均:38.7%
3.2 二核苷酸相对丰度约束
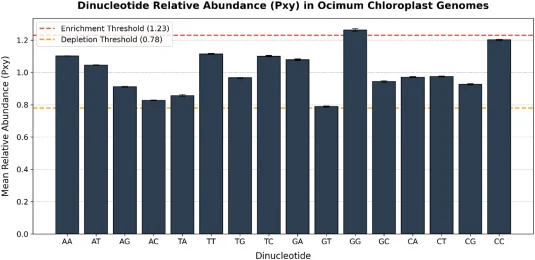
二核苷酸相对丰度(Pxy)分析揭示了所有五个罗勒属物种中高度非随机的组成模式,表明在mRNA水平存在功能约束(图1)。二核苷酸GpG(GG)普遍且显著过表达,平均Pxy值超过富集阈值(1.27)。类似地,CpC(CC)显示出强富集趋势(1.20)。相反,GpT(GT)二核苷酸表现出最低的相对丰度,达到严重缺失阈值(0.78)。值得注意的是,TpA(TA)二核苷酸也持续使用不足(Pxy – 0.86)。这些二核苷酸丰度模式在整个属中的严格保守性表明,密码子选择受到二核苷酸结构约束的强烈过滤,独立于整体A/T富集的基因组背景。二核苷酸的高度非随机分布提供了间接证据,表明罗勒属叶绿体中的密码子使用受功能选择支配,直接回应了纯描述性CUB研究中的一个常见局限。TpA(TA)二核苷酸的持续缺失(Pxy 0.86)是mRNA稳定性进化选择的经典标志。UpA(DNA中的TpA)二核苷酸已知极易被细胞核糖核酸酶(RNases)切割。此外,TpA构成三个通用终止密码子中两个(TAA、TAG)的结构核心。其在罗勒属质体中的主动回避可能服务于双重功能目的:最小化自发无义突变的风险,并延长高表达光合转录本抵抗核酸酶降解的半衰期。同时,GpG(GG)的显著过表达(Pxy – 1.27)提示对结构性RNA元件或翻译调控基序的正选择,例如与叶绿体核糖体抗Shine-Dalgarno序列相互作用的下游元件。这些二核苷酸模式表明,密码子选择不仅由tRNA可用性决定,还受到mRNA转录本物理和热力学稳定性要求的复杂约束。
【数据】GpG平均Pxy:>1.27(富集);CpC Pxy:1.20(富集);GpT Pxy:0.78(缺失);TpA Pxy:0.86(使用不足);富集阈值:≥1.23;缺失阈值:≤0.78
3.3 有效密码子数
有效密码子数(ENC)窄幅范围为47.81至48.20,表明其叶绿体蛋白质编码基因中密码子使用偏性相对较弱至中等。去除冗余IR序列后,ENC值证明保留重复序列可人为扩大表观密码子随机性。同属物种间一致的中等偏性表明 underlying 突变压力与翻译选择之间的平衡,而非紧凑病毒或细菌基因组中所见的极端密码子约束。这些ENC值是陆生植物叶绿体基因组的典型值,表明尽管同义密码子并非均匀使用,但基因组未表现出极端密码子限制,暗示突变压力与翻译选择之间的平衡。
【数据】ENC范围:47.81–48.20;偏性程度:弱至中等;参考范围:20(极端偏性)–61(无偏性)
3.4 RSCU模式与偏好密码子
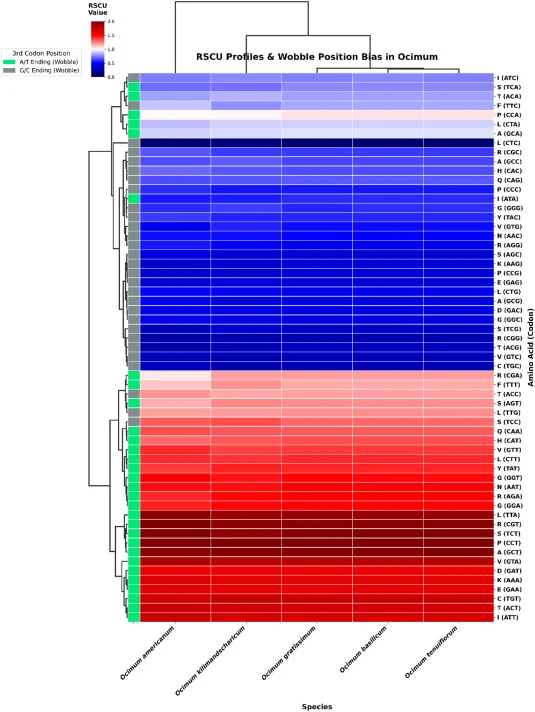
RSCU值揭示,在所有五个物种中,最频繁使用的密码子以A或U结尾(图2),如AAA(Lys)、AAT(Asn)、ACT(Thr)、AGA(Arg)、ATT(Ile)、CAA(Gln)、CAT(His)、CCA(Pro)、GAT(Asp)、GCT(Ala)、GGA(Gly)、GTA(Val)、GTT(Val)、TAT(Tyr)、TCA/TCT(Ser)、TGT(Cys)、TTA/TTG(Leu)和TTT(Phe),这些密码子的RSCU均>1。相反,G/C结尾的同义密码子(如AAC、ACC、AGC、GCC、GGC、CGC、CTC)通常显示RSCU <1,反映GC结尾密码子的使用不足,与叶绿体CDS整体A/T富集的核苷酸组成一致。同属物种间一致的A/U结尾偏好支持以下观点:对A/T的突变偏性,加上对叶绿体翻译系统中特定tRNA–密码子相互作用的选择,在罗勒属叶绿体进化过程中塑造了密码子使用。对物种(列)和59个有义密码子(行)使用欧几里得距离进行层次聚类。高对比度颜色梯度以RSCU值1.0(中性使用,白色)为中心,红色表示偏好使用(RSCU >1.0),蓝色表示使用不足(RSCU <1.0)。最左侧垂直注释条表示第三位核苷酸身份。
【数据】偏好密码子(RSCU >1):AAA、AAT、ACT、AGA、ATT、CAA、CAT、CCA、GAT、GCT、GGA、GTA、GTT、TAT、TCA/TCT、TGT、TTA/TTG、TTT;非偏好密码子(RSCU <1):AAC、ACC、AGC、GCC、GGC、CGC、CTC;聚类方法:欧几里得距离;颜色中心:RSCU = 1.0
3.5 ENC-GC3绘图分析
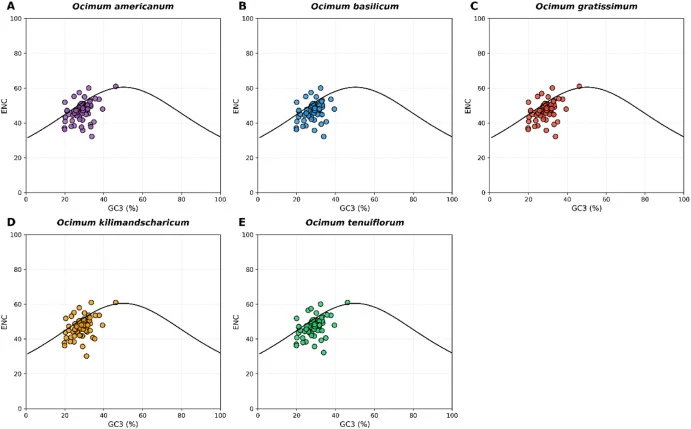
ENC-GC3绘图用于评估突变压力和自然选择的相对贡献。图3显示了五个罗勒属物种的ENC对GC3的分布。大多数基因位于期望曲线下方,表明翻译选择在其密码子使用模式中起重要作用。然而,相当一部分基因也位于期望曲线附近,表明突变压力对某些基因仍有影响。这种分布模式——基因散布在期望曲线下方和附近——是同属物种中突变压力和选择共同作用的典型特征。
【数据】分析方式:ENC对GC3作图;主要分布:期望曲线下方(翻译选择);部分分布:期望曲线附近(突变压力)
3.6 中性绘图分析
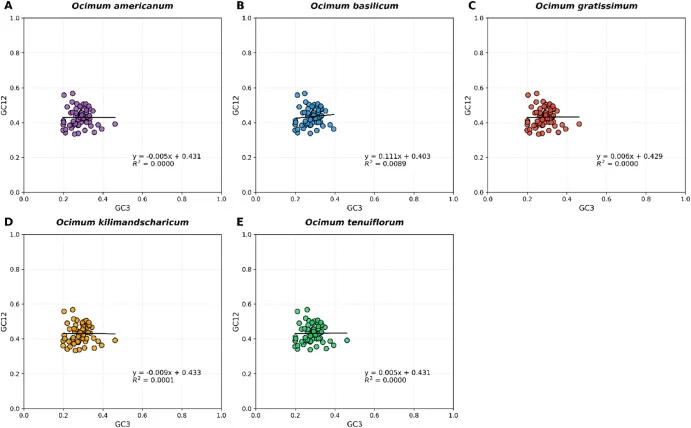
中性绘图分析通过将GC12对GC3作图来检验突变和选择的相对重要性。五个物种的回归斜率范围为−0.009至0.111(图4)。这些接近零的斜率表明自然选择在塑造罗勒属叶绿体基因组的密码子使用中起主导作用,而非突变压力。如果突变压力是主要力量,斜率将接近1。观察到的接近零的斜率表明GC12和GC3之间几乎无相关性,支持选择约束的显著影响。
【数据】回归斜率范围:−0.009至0.111;斜率接近0:选择主导;斜率接近1:突变主导
3.7 PR2偏性绘图分析
PR2偏性图用于评估第三密码子位置互补核苷酸之间的平衡。图5显示了A3/(A3+T3)对G3/(G3+C3)的分布。大多数基因偏离中心(0.5, 0.5),表明突变压力和自然选择均影响密码子使用。分布模式揭示了A/T和G/C之间的不对称性,与观察到的A/T结尾密码子偏好一致。这种偏离中心的分布进一步支持选择压力在塑造罗勒属叶绿体密码子使用中的作用。
【数据】中心点:(0.5, 0.5);分布:大多数基因偏离中心;解释:突变压力+自然选择共同影响
3.8 对应分析
基于RSCU值进行对应分析(COA)以鉴定密码子使用变异的主要趋势。第一轴代表最显著的变异来源。COA揭示了罗勒属物种间密码子使用的高度保守性,仅有微小的种间变异。值得注意的是,O. tenuiflorum显示出扩展的最优密码子集,这与推定的生态适应一致。这种扩展可能反映了该物种特定的翻译需求或生态适应策略。COA结果进一步支持了选择在塑造罗勒属叶绿体密码子使用中的重要作用,同时表明属内存在一定程度的种间分化。
【数据】分析基础:RSCU值;第一轴:最显著变异来源;种间变异:微小;O. tenuiflorum:扩展的最优密码子集
讨论与解读
罗勒属叶绿体基因组中的密码子使用偏性(CUB)不仅仅是突变的中性副产物,而是由推定的翻译优化进化选择所塑造的。尽管具有保守的AT富集基因组组成和属内中等程度的A/T结尾密码子偏好,但多条证据线——包括ENC-GC3图中的系统性偏离、中性绘图斜率(−0.009至0.111)以及PR2偏性图中的不对称性——均与自然选择对突变压力的显著影响一致。这种选择约束被解释为对叶绿体独特翻译机器的适应,校准核心光合和代谢基因的表达。通过整合严格的序列去冗余、多维方差校正和二核苷酸丰度追踪,本研究提供了独立的功能证据,表明罗勒属中的密码子选择不仅针对tRNA匹配进行优化,还针对mRNA结构稳定性(如TpA缺失)进行优化。这些数学定义的约束代表了罗勒属叶绿体的推定翻译框架,为药用植物生物技术中转基因的合成设计提供了严格的遗传框架。
编译者解读
该研究的方法论亮点在于用去冗余IR序列和59维向量空间校正,避免了传统CUB分析中常见的统计循环性——这是许多密码子偏好研究容易忽视的陷阱。双阈值最优密码子鉴定(RSCU >1.0且ΔRSCU ≥0.08)也提高了推定的可靠性。不过,研究完全基于生物信息学预测,缺乏翻译效率或蛋白表达量的实验验证,最优密码子集的实际效果仍需体内实验确认。对合成生物学而言,该框架可直接用于罗勒属药用次生代谢途径的叶绿体表达优化,但跨物种适用性需谨慎评估。
参考来源
期刊:Ecological Genetics and Genomics, 2026
DOI: 10.1016/j.egg.2026.100515
DOI: 10.1016/j.egg.2026.100515