来源:High-level soluble production of firefly luciferase in E. coli via promoter engineering(Protein Expression and Purification)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
萤火虫荧光素酶(FLuc)广泛应用于食品安全、环境监测和生物医学领域,但其在大肠杆菌中的可溶性表达差、产量低,严重制约了实际应用。本研究通过筛选大肠杆菌21种内源启动子,发现pgi启动子具有优越的蛋白表达调控潜力;进而对pgi启动子−35区进行随机突变,鉴定关键功能位点,并优化发酵条件,最终将FLuc产量提升至0.3 mg/mL,较初始产量提高354%,可溶性比例提高52.06%,为目前报道的最高表达水平。
研究背景
荧光素酶是一类在自然界中催化生物发光的酶。其中,萤火虫荧光素酶(FLuc)因其高灵敏度、强穿透性、商业可及性和广泛兼容性,已成为食品毒性评估、食品微生物检测、报告基因分析和遗传研究中不可或缺的工具。FLuc是一种分子量约为60–64 kDa的球状蛋白。传统上,FLuc通过直接从活体生物中提取获得,但该方法受季节和地域限制,培养周期长,劳动强度大,育种成本高。因此,通过基因工程在微生物中异源表达已成为FLuc生产的主要方法。大肠杆菌表达系统因其遗传背景清晰、表达能力强、易于调控、成本低和发酵周期短,是重组蛋白生产中使用最广泛的平台之一。然而,FLuc是一种较大(约61 kDa)且结构复杂的真核蛋白,其在大肠杆菌中的异源表达常受到低表达水平和严重包涵体形成的制约。这些局限性限制了其大规模制备和下游应用。T7表达系统广泛用于重组蛋白表达,但由于其固有的高表达强度,包涵体比例仍然较高。
研究方法
2.1 化学试剂
IPTG(异丙基-β-D-硫代半乳糖苷)、卡那霉素(Kan)和氯霉素(Cm)购自MREDA Technology(中国北京)。L-阿拉伯糖购自Macklin Biochemical(中国上海)。所有其他化学品和培养基均为分析纯且可商业获得。本研究使用的发酵培养基及其组成列于表1。
【数据】试剂:IPTG、卡那霉素、氯霉素(MREDA Technology);L-阿拉伯糖(Macklin Biochemical);培养基组成:原文未详述(列于表1)
2.2 菌株和质粒
大肠杆菌BL21(DE3)用作基因克隆和基因表达的宿主菌株。质粒pGro7和pKJE7购自Takara Bio Inc.。质粒pET28a-FLuc为本实验室构建。本研究中使用的所有菌株和质粒列于补充表1和补充表2。本研究中使用的所有引物列于补充表3。
【数据】菌株:大肠杆菌BL21(DE3);质粒:pGro7、pKJE7(Takara Bio Inc.)、pET28a-FLuc(本实验室构建);引物:列于补充表3
2.3 重组质粒和菌株的构建
本研究构建的所有重组质粒均使用ClonExpress® II One Step Cloning Kit(Vazyme Biotech,中国南京)通过标准化一步克隆方法组装。首先通过反向PCR将载体骨架线性化。插入片段用含有同源臂的引物扩增。经琼脂糖凝胶电泳确认预期条带后,纯化并以1:3的摩尔比(载体:插入片段)混合进行一步克隆。然后将重组产物转化到大肠杆菌BL21(DE3)感受态细胞中。阳性转化子通过菌落PCR和Sanger测序验证。
【数据】克隆方法:ClonExpress® II一步克隆;载体:插入片段摩尔比:1:3;验证方法:菌落PCR、Sanger测序;试剂盒来源:Vazyme Biotech(中国南京)
2.4 重组FLuc在大肠杆菌BL21(DE3)中的表达
本研究采用的FLuc蛋白序列参考Shi等人的报道,最初来源于北美萤火虫。该基因针对大肠杆菌表达进行了密码子优化,由Sangon Biotech(中国上海)合成。首先,将甘油菌种大肠杆菌BL21(DE3)/pET28a-FLuc划线接种到含50 μg/mL Kan的LB琼脂平板上,37°C培养12 h。然后挑取单菌落接种到5 mL含50 μg/mL Kan的LB培养基中,37°C、200 rpm振荡培养10 h。将种子培养液(2%,v/v)转移到含50 mL LB培养基的250 mL烧瓶中,37°C培养至OD600达到0.8。加入0.4 mM IPTG后,培养物在20°C、200 rpm下继续培养20 h。
【数据】菌株:大肠杆菌BL21(DE3)/pET28a-FLuc;Kan浓度:50 μg/mL;划线培养:37°C、12 h;种子培养:5 mL LB、37°C、200 rpm、10 h;接种量:2%(v/v);诱导OD600:0.8;IPTG浓度:0.4 mM;诱导条件:20°C、200 rpm、20 h
2.5 大肠杆菌内源启动子的筛选
含有不同启动子的转化子划线接种到含50 μg/mL Kan的LB琼脂平板上,37°C培养12 h。挑取单菌落接种到5 mL含50 μg/mL Kan的LB培养基中,37°C、200 rpm振荡培养10.5 h。将种子培养液(2%,v/v)转移到50 mL含50 μg/mL Kan的LB培养基中,在三种条件下培养:(1)37°C培养至OD600达到0.8,加入0.4 mM IPTG后,在20°C、200 rpm下继续培养20 h(PT7/Plac/Ptac/Ptrc);(2)37°C培养至OD600达到0.8,加入0.5 mg/mL L-阿拉伯糖后,在20°C、200 rpm下继续培养20 h(ParaB);(3)37°C、200 rpm振荡培养12 h(组成型启动子)。随后进行如下文(2.10和2.11)所述的FLuc活性测定和SDS-PAGE分析。
【数据】Kan浓度:50 μg/mL;种子培养:37°C、200 rpm、10.5 h;接种量:2%(v/v);条件1:37°C至OD600 0.8,0.4 mM IPTG,20°C、200 rpm、20 h;条件2:37°C至OD600 0.8,0.5 mg/mL L-阿拉伯糖,20°C、200 rpm、20 h;条件3:37°C、200 rpm、12 h
2.6 pgi突变体库的构建和表征
使用针对pgi启动子−35区的简并引物F-JB/R-JB-arm通过PCR扩增含有启动子的短片段。将转化子随机挑取到含每孔600 μL LB的96孔深孔板中,37°C培养12 h。使用TG20KR-D冷冻高速离心机(DongWong Instrument,中国长沙)在4000 rpm、4°C下离心10 min收集培养细胞。将沉淀重悬于200 μL含0.5 mg/mL溶菌酶的200 mM Tris-HCl缓冲液(pH 7.4)中,37°C、200 rpm振荡孵育30 min。通过第二次离心(4000 rpm、4°C、15 min)收集上清液。取100 μL上清液用于FLuc活性测定。选择表现出高FLuc活性的菌株在摇瓶规模进行二次验证。
【数据】培养基:LB(600 μL/孔,96孔深孔板);培养:37°C、12 h;离心:4000 rpm、4°C、10 min;重悬缓冲液:200 mM Tris-HCl(pH 7.4)+ 0.5 mg/mL溶菌酶;孵育:37°C、200 rpm、30 min;二次离心:4000 rpm、4°C、15 min;活性测定上清液:100 μL
2.7 分子伴侣与FLuc的共表达
将分子伴侣质粒和FLuc质粒共转化到大肠杆菌BL21(DE3)感受态细胞中。在含双抗生素(Kan + Cm)的LB琼脂平板上选择阳性转化子。将共表达菌株划线接种到含50 μg/mL Kan和20 μg/mL Cm的LB琼脂平板上,37°C培养12 h。挑取单菌落接种到5 mL含50 μg/mL Kan和20 μg/mL Cm的LB培养基中,37°C、200 rpm振荡培养10.5 h。将种子培养液(2%,v/v)转移到50 mL含50 μg/mL Kan和20 μg/mL Cm的LB培养基中,补充0.5 mg/mL L-阿拉伯糖,在两种条件下培养:(1)37°C培养至OD600达到0.8,加入0.4 mM IPTG后,在20°C、200 rpm下继续培养20 h(诱导型启动子);(2)37°C、200 rpm振荡培养12 h(组成型启动子)。
【数据】抗生素:50 μg/mL Kan + 20 μg/mL Cm;划线培养:37°C、12 h;种子培养:5 mL LB、37°C、200 rpm、10.5 h;接种量:2%(v/v);L-阿拉伯糖:0.5 mg/mL;条件1:37°C至OD600 0.8,0.4 mM IPTG,20°C、200 rpm、20 h;条件2:37°C、200 rpm、12 h
2.8 发酵条件优化
依次优化培养基类型、L-阿拉伯糖诱导时机、发酵温度和持续时间、接种量、IPTG浓度和L-阿拉伯糖浓度,每个后续条件基于前一条件的结果进行优化。发酵过程和FLuc活性测定参照2.5和2.7。
【数据】优化参数:培养基类型、L-阿拉伯糖诱导时机、发酵温度、发酵时间、接种量、IPTG浓度、L-阿拉伯糖浓度;优化策略:序贯优化
2.9 重组FLuc的纯化
通过离心(10000 rpm、4°C、10 min)收集培养细胞,重悬于200 mM Tris-HCl缓冲液(pH 7.4)中。在冰水浴中使用微型超声破碎仪(XO-900D,最大功率900W)以50%振幅、2 s开3 s关的模式超声15 min裂解细胞。通过离心(10000 rpm、4°C、30 min)去除细胞碎片,所得上清液通过Ni-NTA亲和层析进行纯化。装载粗酶的His-Trap FF柱(Beyotime,中国上海)先用含50 mM和100 mM咪唑的缓冲液洗涤以初步去除杂质蛋白。然后使用含500 mM咪唑的洗脱缓冲液洗脱FLuc。
【数据】离心收集:10000 rpm、4°C、10 min;重悬缓冲液:200 mM Tris-HCl(pH 7.4);超声条件:XO-900D、900W、50%振幅、2 s开3 s关、15 min、冰水浴;离心去碎片:10000 rpm、4°C、30 min;纯化方法:Ni-NTA亲和层析(His-Trap FF柱);洗涤咪唑浓度:50 mM、100 mM;洗脱咪唑浓度:500 mM
2.10 FLuc活性测定
取5 mL发酵培养液通过离心(8000 rpm、4°C、5 min)收集。将细胞沉淀重悬于200 mM Tris-HCl缓冲液(pH 7.4)中。在冰水浴中使用微型超声破碎仪(XO-900D,最大功率900W)以50%振幅、2 s开3 s关的模式超声5 min裂解细胞。取1 mL裂解液离心(12000 rpm、2 min),所得上清液和沉淀分别对应可溶性酶和包涵体。进一步通过FLuc活性测定和SDS-PAGE分析。FLuc活性使用KeyTec Ultra Luciferase Detection Kit(VKEY Bio,中国上海)测定。首先,将100 μL粗酶与100 μL预混试剂在黑色壁96孔微孔板中混合。然后将微孔板转移到EnSight多模式微孔板读数仪(PerkinElmer,美国Waltham)中,在37°C下以400 rpm线性振荡(20 s开、15 s关)孵育5.5 min。最后读取总发光信号(相对光单位,RLU)。所有测量一式三份进行。可溶性FLuc的比例通过SDS-PAGE分析。
【数据】离心收集:8000 rpm、4°C、5 min;重悬缓冲液:200 mM Tris-HCl(pH 7.4);超声条件:XO-900D、900W、50%振幅、2 s开3 s关、5 min、冰水浴;离心:12000 rpm、2 min;检测试剂盒:KeyTec Ultra Luciferase Detection Kit(VKEY Bio);粗酶体积:100 μL;预混试剂:100 μL;孵育:37°C、400 rpm线性振荡(20 s开15 s关)、5.5 min;读数仪:EnSight(PerkinElmer);重复:一式三份
2.11 SDS-PAGE分析
取1 mL裂解液在12000 rpm下离心2 min,所得上清液含可溶性FLuc。将沉淀重悬于1 mL 200 mM Tris-HCl缓冲液(pH 7.4)中。制备SDS-PAGE样品时,将10 μL上清液或重悬沉淀与10 μL 2×(原文此处截断)
【数据】离心:12000 rpm、2 min;重悬缓冲液:200 mM Tris-HCl(pH 7.4)、1 mL;SDS-PAGE样品:10 μL上清液或重悬沉淀 + 10 μL 2×上样缓冲液(原文截断)
研究结果
3.1 FLuc表达载体的构建及在大肠杆菌BL21(DE3)中的初步表达
编码萤火虫荧光素酶(FLuc)的基因被扩增并克隆到pET28a中以构建表达载体(图1A),然后转化到大肠杆菌BL21(DE3)中进行FLuc表达。为评估FLuc的可溶性表达,通过超声破碎大肠杆菌细胞并进行SDS-PAGE分析。观察到分子量约为65 kDa的胞内蛋白条带,与FLuc的预期大小一致(图1B)。
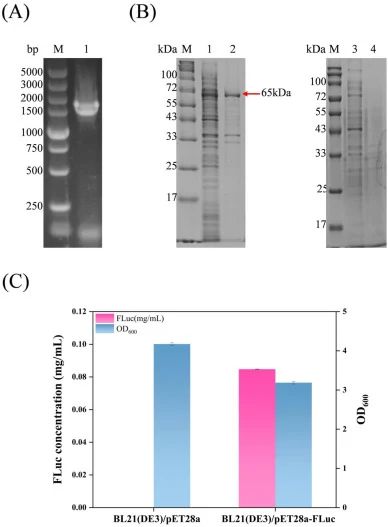
为定量FLuc浓度,测量了不同FLuc浓度对应的相对光单位(RLU)值,并进行线性回归分析。如补充图1所示,信号与FLuc量在8个数量级范围内呈线性比例关系。决定系数(R²)为0.9961,表明与线性回归模型拟合良好。在0.4 mM IPTG、20°C诱导20 h的条件下,FLuc的可溶性产量测定为0.085 mg/mL,表明FLuc基因成功表达(图1C)。
【数据】蛋白分子量:约65 kDa;FLuc基因大小:1632 bp;R²:0.9961;线性范围:8个数量级;IPTG浓度:0.4 mM;诱导温度:20°C;诱导时间:20 h;可溶性产量:0.085 mg/mL
3.2 大肠杆菌内源启动子的筛选
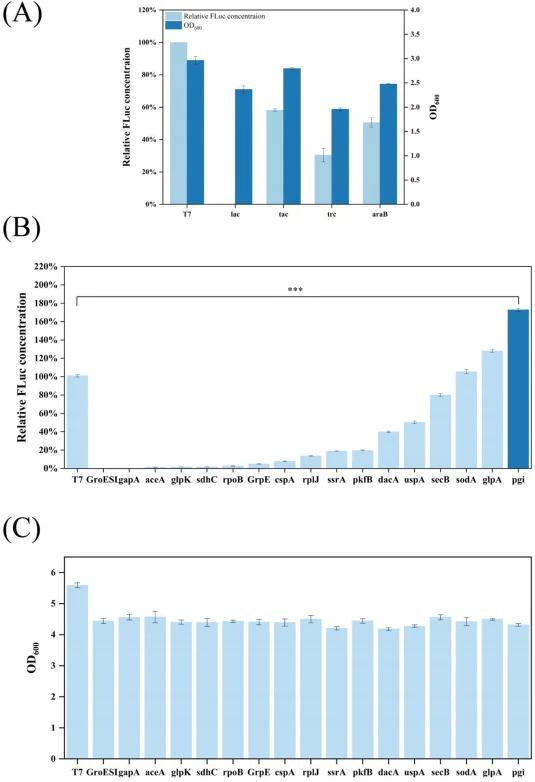
启动子是位于结构基因上游的DNA序列,能特异性识别和结合RNA聚合酶,从而显著影响目标基因的转录时机和强度。由于T7启动子系统固有的高表达强度,包涵体比例仍然较高。因此,本研究从蛋白质折叠和质量控制、代谢和能量供应以及基因转录调控等关键途径中选取了17个组成型启动子(表2),并筛选了4个常用的诱导型启动子。用这些启动子替换T7启动子,评估它们对FLuc可溶性表达和总产量的影响。不同启动子对FLuc产量产生了不同的影响。在20°C发酵20 h后,四个诱导型启动子调控的FLuc产量均低于T7启动子(图2A)。在37°C培养12 h时,三个组成型启动子(PsodA/PglpA/Ppgi)调控的FLuc可溶性表达高于T7启动子(图2B)。其中,Ppgi效果最为显著,产量比T7启动子高1.72倍。组成型启动子在细胞生长过程中持续驱动目标基因表达。其持续且适度的表达模式为FLuc提供了足够的正确折叠时间,防止新生多肽链的过度局部积累,并减少了错误分子间相互作用的可能性。此外,组成型表达无需诱导剂,从而简化了发酵过程并降低了生产成本——这一特性与工业应用的需求高度契合。
【数据】筛选启动子数量:21个(17个组成型 + 4个诱导型);诱导型启动子发酵条件:20°C、20 h;组成型启动子发酵条件:37°C、12 h;Ppgi产量比T7启动子高:1.72倍;组成型启动子:PsodA、PglpA、Ppgi
3.3 启动子突变库的构建
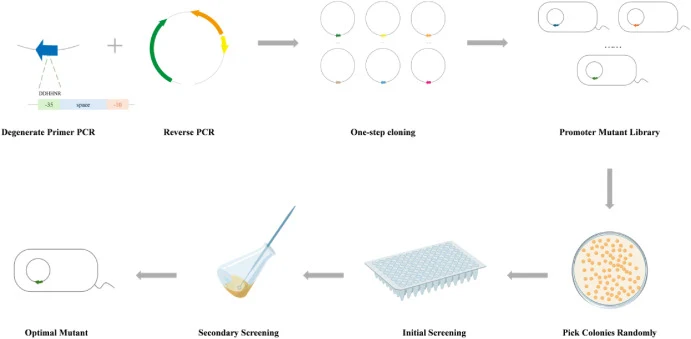
启动子强度受其保守区域(如−35和−10框)的序列组成和空间构型影响。−35区作为RNA聚合酶识别和结合的核心位点,具有通过序列优化进一步增强重组蛋白生产的潜力。我们设计了简并引物对pgi启动子的−35区进行随机突变。在生成一系列pgi启动子突变体后,利用高通量筛选平台鉴定高FLuc产量的菌株(图3)。
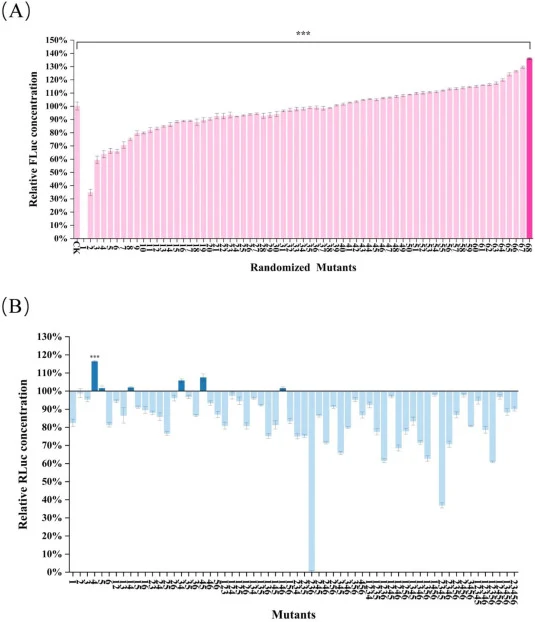
−35框内的碱基变化显著影响FLuc表达水平(图4A)。最优突变体(GAACCG)的产量比对照(CTGTGA)高36%,两个序列在全部六个位置均不同。为解析每个突变位点对启动子活性的贡献,采用了“6位点子集回复”策略,理论上产生2⁶ = 64种组合(表3)。发现位点4的突变被鉴定为关键正功能位点,使FLuc产量提高15%(图4B)。
【数据】最优突变体序列:GAACCG;对照序列:CTGTGA;最优突变体产量提高:36%;序列差异位点数:6个;子集回复组合数:2⁶ = 64种;关键正功能位点:位点4;位点4突变产量提高:15%
3.4 分子伴侣对FLuc表达的影响
分子伴侣协助新生重组蛋白的正确折叠,从而提高其可溶性表达。为增强FLuc的高水平生产,分子伴侣与FLuc共表达是一种可行策略。使用了商业质粒pGro7(携带GroES和GroEL)和pKJE7(携带GrpE、DnaK和DnaJ)。为研究单个分子伴侣对FLuc表达的影响,通过一步克隆将各自的分子伴侣基因克隆到pGro7骨架中,构建了编码单个分子伴侣的重组质粒。GroEL、GroES、DnaK、DnaJ和GrpE基因的菌落PCR扩增产物显示出预期的分子量(图5A)。通过SDS-PAGE验证了分子伴侣的表达,分别观察到对应GroEL(60 kDa)、GroES(10 kDa)、DnaK(70 kDa)、DnaJ(40 kDa)和GrpE(22 kDa)的明显条带(图5B)。将分子伴侣质粒和FLuc质粒共转化到大肠杆菌BL21(DE3)中进行共表达。共表达菌株在37°C发酵12 h后,由pgi启动子调控的分子伴侣与FLuc共表达对FLuc生产没有积极作用(图5C)。当蛋白质合成速率与内源折叠能力基本匹配时,引入外源分子伴侣不仅可能占用翻译和能量资源,还可能增加代谢负担,从而可能抑制重组蛋白本身的表达。共表达菌株在20°C发酵20 h后,发现GroES和DnaJ相比单独表达FLuc(由T7启动子调控)提高了FLuc的产量和可溶性(图5D)。GroES表现出更明显的有利效果,这与Pang的发现一致。相比之下,商业分子伴侣组合Gro7和KJE7在相同实验条件下未表现出可检测的优势。尽管分子伴侣通常被认为能增强蛋白质可溶性表达,但其效果并非普遍适用。不同分子伴侣在识别不同底物蛋白时表现出选择性。GroEL/GroES系统主要作用于球状蛋白,而DnaK系统优先结合含有疏水片段的延伸肽链。例如,pKJE7促进了r-XynB的可溶性表达,但未能改善TtSPase的折叠。因此,针对特定目标蛋白进行分子伴侣的个案筛选对于最大化目标蛋白产量至关重要。为进一步促进FLuc的高效表达,将对GroES-FLuc共表达菌株的发酵参数进行优化。
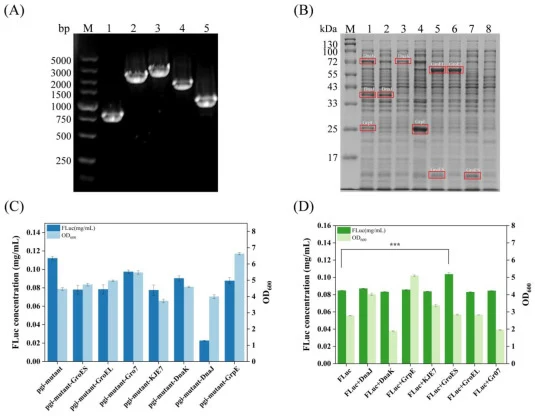
【数据】分子伴侣基因大小:GroES 827 bp、GroEL 2180 bp、DnaK 2450 bp、DnaJ 166 bp(原文截断);蛋白分子量:GroEL 60 kDa、GroES 10 kDa、DnaK 70 kDa、DnaJ 40 kDa、GrpE 22 kDa;共表达发酵条件1:37°C、12 h;共表达发酵条件2:20°C、20 h;有效分子伴侣:GroES、DnaJ(T7启动子调控下);GroES效果最显著
3.5 优化发酵条件以提高大肠杆菌BL21(DE3)/pET28a-FLuc/pGroES中FLuc的表达
培养基组成显著影响重组蛋白表达。为确定FLuc表达的最佳培养基,比较了LB、自诱导和TB培养基。这些培养基对FLuc表达表现出不同的效果,其中TB产量最高。对比分析表明,TB培养基含有丰富的氮源和碳源以及磷酸盐缓冲系统,有利于pH稳定和生物量积累(图6A)。L-阿拉伯糖在本研究中用作分子伴侣的诱导剂。L-阿拉伯糖和IPTG(FLuc的诱导剂)的添加顺序可能影响伴侣辅助折叠的程度。然而,添加顺序对FLuc产量没有显著影响。值得注意的是,当L-阿拉伯糖在IPTG诱导后30 min添加时,FLuc产量略高于其他两种方案(图6B)。
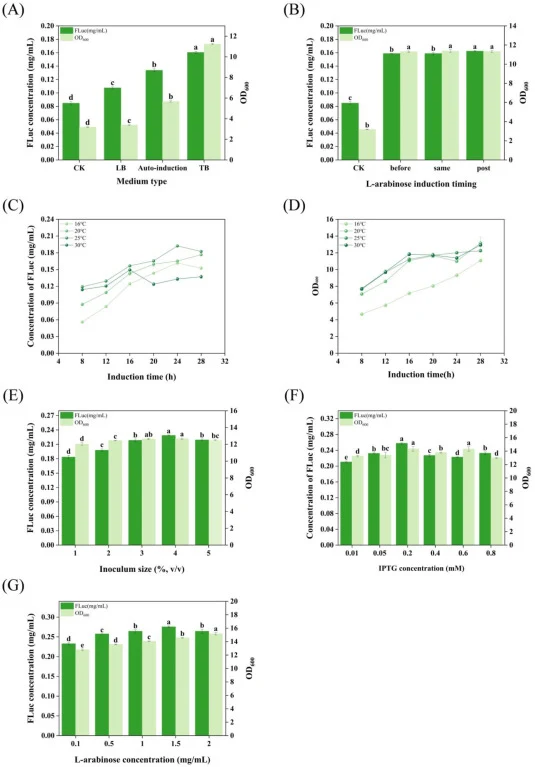
【数据】比较培养基:LB、自诱导、TB;最佳培养基:TB;TB优势:丰富氮碳源、磷酸盐缓冲系统、pH稳定、生物量积累;L-阿拉伯糖添加时机:IPTG诱导后30 min效果略优;添加顺序对FLuc产量:无显著影响
3.6 pgi启动子调控下发酵条件对FLuc表达的影响
(原文此处节选截断,以下内容基于图7图注信息)
对大肠杆菌BL21(DE3)/pET28a-Mpgi-FLuc中FLuc表达的发酵条件进行了优化,包括培养基类型(图7A)、发酵温度和持续时间(图7B-C)、接种量(图7D)。除非另有说明,下一条件的优化在前一条件优化结果的基础上进行。
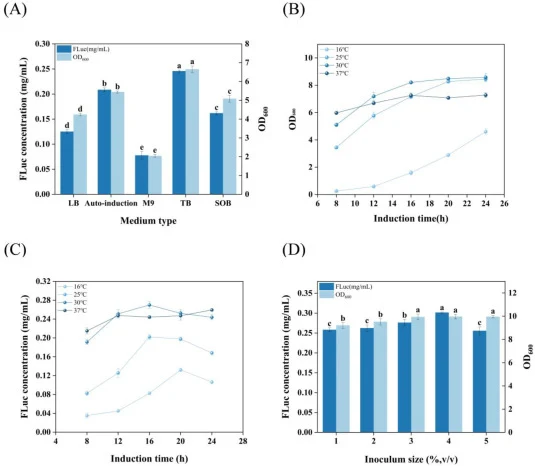
【数据】优化条件:培养基类型、发酵温度、发酵时间、接种量;优化策略:序贯优化;具体数值:原文未详述
讨论与解读
本研究成功利用大肠杆菌T7表达系统实现了萤火虫荧光素酶(FLuc)的异源表达。然而,T7启动子驱动的FLuc表达倾向于形成大量包涵体,降低了可溶性蛋白的总体产量。为解决这一问题,研究者考察了启动子工程对FLuc表达水平的影响。首先筛选了大肠杆菌中的21种内源启动子,其中pgi启动子表现出优越的蛋白表达调控潜力。随后,对pgi启动子−35区进行随机突变使FLuc产量提高两倍,并鉴定出位点4为关键正功能位点。最终通过发酵条件优化,FLuc产量达到0.3 mg/mL,可溶性比例提高约50%,总体产量提高3.5倍。值得关注的是,分子伴侣在诱导型和组成型表达中效果不同:在T7启动子调控下,GroES共表达增强了可溶性FLuc产量,发酵优化后FLuc产量达到0.275 mg/mL;而在pgi启动子调控下,分子伴侣对FLuc的可溶性产量无显著影响。总体而言,该优化策略显著增强了FLuc的可溶性表达,并消除了对诱导剂的需求,可降低生产成本。
编译者解读: 该研究以启动子工程为核心切入点,用pgi组成型启动子替换高强度的T7系统,思路清晰且切中要害——通过降低转录强度来匹配胞内折叠能力,从源头减少包涵体。−35区简并突变结合高通量筛选的策略在合成生物学中具有通用性,但仅聚焦单一启动子区域,未涉及RBS、拷贝数等翻译层面的协同调控。此外,分子伴侣在组成型表达下失效的现象提示:当表达速率已与折叠能力匹配时,额外引入伴侣蛋白反而增加代谢负担。该策略的工业价值在于无IPTG诱导、成本可控,但0.3 mg/mL的产量距大规模生产仍有提升空间。
参考来源
期刊:Protein Expression and Purification, 2026
DOI: 10.1016/j.pep.2026.106968
DOI: 10.1016/j.pep.2026.106968