来源:Improved S-adenosylmethionine and glutathione biosynthesis in Candida utilis via elevated endogenous sulfur-containing amino acid supply(Food Bioscience)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
S-腺苷甲硫氨酸(SAM)和谷胱甘肽(GSH)是功能食品制造中广泛使用的两种重要含硫生物活性成分。本研究在产朊假丝酵母中对硫代谢核心基因MET15进行代谢工程改造,构建了基因敲除(met15Δ)、过表达(MET15-OE)和回补(met15Δ::MET15)三株工程菌。过表达菌株显著提升了胞内L-甲硫氨酸和L-半胱氨酸水平,增强了关键酶活性,重塑了碳通量并强化了胞内能量再生。补料分批培养中MET15-OE最高细胞干重达69.04 g/L,SAM与GSH协同产量达2,242.7 mg/L,较亲本菌株提高49.1%。
研究背景
SAM是体内主要的甲基供体,参与DNA、RNA、蛋白质和脂质的甲基化反应,调控细胞增殖、表观遗传修饰和代谢稳态。GSH则是细胞内主要的抗氧化剂,负责清除活性氧、减轻氧化损伤,并参与细胞解毒和免疫调节。凭借多样的生物学功能,SAM和GSH在功能食品、制药和化妆品行业得到广泛应用。
SAM和GSH的生物合成与硫代谢网络及含硫氨基酸合成途径紧密耦合,L-甲硫氨酸和L-半胱氨酸是核心前体和关键调控节点。SAM由L-甲硫氨酸和ATP经甲硫氨酸腺苷转移酶(MAT)催化一步合成。GSH的合成则涉及两步连续的ATP依赖型酶促反应,由γ-谷氨酰半胱氨酸合成酶(γ-GCS)和谷胱甘肽合成酶依次催化。在食品级微生物细胞工厂的选择上,产朊假丝酵母相比酿酒酵母具有细胞增殖快、无机硫同化能力强且无致病风险等优势,更适合SAM和GSH的大规模协同生产。然而,传统代谢调控研究多局限于工艺参数优化或能量供给强化,未能从根本上解决上游含硫氨基酸合成通量不足的代谢瓶颈。
研究方法
2.1 微生物、培养基与培养条件
以野生型产朊假丝酵母C. utilis CCTCC M 209298为亲本菌株(PS)。通过同源重组构建了三株工程菌:MET15敲除株(met15Δ)、MET15过表达株(MET15-OE)和MET15回补株(met15Δ::MET15)。
种子培养在500 mL锥形瓶中进行,含酵母提取物-蛋白胨-葡萄糖(YPD)培养基(20 g/L葡萄糖、10 g/L酵母提取物、20 g/L蛋白胨,pH 6.0),于30°C、200 rpm旋转摇床培养24 h。
摇瓶培养在发酵培养基(35 g/L葡萄糖、10 g/L (NH4)2SO4、12.3 g/L KH2PO4、0.05 g/L MgSO4,pH 5.0)中进行,相同温度和振荡条件下培养72 h。需要时,分别在0 h和15 h添加60 mmol/L L-甲硫氨酸和/或30 mmol/L L-半胱氨酸。
分批培养在5 L生物反应器(Minifors, Infors HT, Basel, Switzerland)中进行,将10%(v/v)种子培养液接种至3 L发酵培养基。生物反应器运行条件为30°C、350 rpm、通气量3 L/min。
补料分批培养在12 h至28 h期间采用多项式补料策略补加浓缩发酵培养基,总葡萄糖浓度设定为150 g/L。溶解氧水平使用Mettler-Toledo O2传感器(InPro6800/12/220, Greifensee, Zürich, Switzerland)实时监测,在补料分批培养期间通过手动调节搅拌速率(350–900 rpm)维持≥30%饱和度。
【数据】菌株:C. utilis CCTCC M 209298(PS)、met15Δ、MET15-OE、met15Δ::MET15;YPD培养基:20 g/L葡萄糖、10 g/L酵母提取物、20 g/L蛋白胨,pH 6.0;种子培养温度:30°C;转速:200 rpm;时间:24 h;发酵培养基:35 g/L葡萄糖、10 g/L (NH4)2SO4、12.3 g/L KH2PO4、0.05 g/L MgSO4,pH 5.0;摇瓶培养时间:72 h;L-甲硫氨酸添加量:60 mmol/L(0 h);L-半胱氨酸添加量:30 mmol/L(15 h);分批培养接种量:10%(v/v);分批培养体积:3 L;分批培养温度:30°C;分批培养转速:350 rpm;通气量:3 L/min;补料时间:12–28 h;总葡萄糖浓度:150 g/L;溶解氧:≥30%饱和度;补料期搅拌速率:350–900 rpm
2.2 基因工程酵母菌株的构建
产朊假丝酵母CCTCC M 209298中MET15基因的遗传操作通过同源重组进行,方法如前所述。简言之,MET15敲除载体通过使用特异性引物(表S1)从C. utilis基因组中扩增MET15上下游各约500 bp的同源臂构建,以遗传霉素(G418)抗性基因作为筛选标记(图S1)。MET15过表达载体携带潮霉素B抗性基因(hyg),通过将MET15编码序列插入酵母表达载体pMD19T-18S构建,基因表达由GAPDH启动子驱动(图S2)。
随后,将重组载体与感受态酵母细胞(OD600 = 2.5)混合,转移至预冷的0.2 cm电击杯中。使用Gene Pulser Xcell系统(Bio-Rad, USA)在750 V和200 Ω条件下进行电穿孔。在含100 μg/mL G418的YPD平板上恢复生长的转化子命名为met15Δ,而在含100 μg/mL潮霉素B平板上生长的转化子定义为MET15-OE。对于MET15回补株(met15Δ::MET15),将过表达载体转化至met15Δ突变体,随后在潮霉素B平板上筛选。
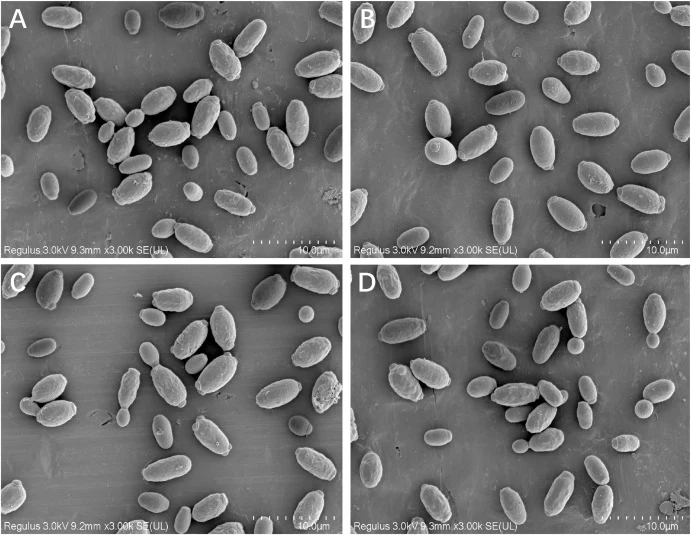
所有阳性重组克隆通过菌落PCR验证(图S3–S5),敲除基因使用引物G418-F/R,过表达基因使用引物18S-F/R。酵母细胞形态在18 h时使用光学显微镜(Olympus BX53, Tokyo, Japan)在400×放大倍数下检查,并使用扫描电子显微镜(SEM)在3000×放大倍数下观察。SEM使用S-4800仪器(Hitachi, Japan)在15 kV加速电压下进行,冻干酵母细胞经金溅射处理。
【数据】同源臂长度:约500 bp;G418浓度:100 μg/mL;潮霉素B浓度:100 μg/mL;感受态细胞OD600:2.5;电击杯规格:0.2 cm;电穿孔电压:750 V;电阻:200 Ω;SEM加速电压:15 kV;SEM放大倍数:3000×;光学显微镜放大倍数:400×;形态观察时间:18 h
2.3 实时荧光定量PCR(qRT-PCR)检测
MET15基因的转录水平通过qRT-PCR使用表S2所列引物测定。总RNA提取、cDNA合成和PCR扩增按先前描述的方法进行。所有样品分析均设三个独立生物学重复,每个实验在96孔板(Bio-Rad)中重复三次。以ACT1基因作为内参进行归一化,相对基因表达采用2−ΔΔCt法计算。
【数据】生物学重复:3个;技术重复:3次;96孔板:Bio-Rad;内参基因:ACT1;计算方法:2−ΔΔCt法
2.4 无细胞提取液制备
取5 mL培养液在液氮中速冻10 min,随后在8,000 × g、4°C条件下离心10 min收集酵母细胞。湿细胞重悬于10 mL冰浴磷酸缓冲液(0.2 mol/L,pH 7.0)中,冰浴超声10 min。在12,000 × g、4°C条件下离心10 min去除细胞碎片后,收集上清液作为无细胞提取液,用于酶活性测定和胞内代谢物检测。
【数据】培养液取样量:5 mL;液氮速冻时间:10 min;离心条件:8,000 × g、4°C、10 min;重悬缓冲液:0.2 mol/L磷酸缓冲液,pH 7.0;重悬体积:10 mL;超声时间:10 min(冰浴);二次离心条件:12,000 × g、4°C、10 min
2.5 酶活性测定
MAT活性参照Hu等(2009)的方法稍作修改进行测定。简言之,将1 mL反应液(20 mmol/L L-甲硫氨酸、20 mmol/L ATP、8 mmol/L GSH、20 mmol/L MgCl2、100 mmol/L KCl,pH 7.4)与1 mL无细胞提取液混合,37°C孵育60 min,加入0.5 mL 20%(v/v)高氯酸终止反应。一个单位(U)的MAT活性定义为每毫克蛋白质每分钟产生1 μmol SAM所需的酶量。
γ-GCS活性使用商业检测试剂盒(南京建成生物工程研究所,中国)按照制造商说明测定,基于340 nm处吸光度变化定量活性。一个单位的γ-GCS定义为在30°C下每分钟释放1 μmol Pi的酶量。
【数据】MAT反应液组成:20 mmol/L L-甲硫氨酸、20 mmol/L ATP、8 mmol/L GSH、20 mmol/L MgCl2、100 mmol/L KCl,pH 7.4;反应液体积:1 mL;无细胞提取液体积:1 mL;孵育温度:37°C;孵育时间:60 min;终止液:0.5 mL 20%(v/v)高氯酸;MAT单位定义:每毫克蛋白质每分钟产生1 μmol SAM;γ-GCS检测试剂盒:南京建成生物工程研究所;γ-GCS检测波长:340 nm;γ-GCS单位定义:30°C下每分钟释放1 μmol Pi
2.6 分析方法
胞内SAM和GSH分别使用0.35 mol/L H2SO4和40%(v/v)乙醇从湿酵母细胞中提取,方法如先前报道。细胞干重(DCW)通过将湿细胞沉淀在70°C下干燥至恒重测定。葡萄糖、SAM、GSH、L-甲硫氨酸、L-半胱氨酸、γ-谷氨酰半胱氨酸(γ-GC)、NADH、NAD+、ATP和ADP通过高效液相色谱(HPLC)定量。详细的色谱柱、流动相和操作参数列于表S3。
【数据】SAM提取液:0.35 mol/L H2SO4;GSH提取液:40%(v/v)乙醇;DCW干燥温度:70°C;检测方法:HPLC;检测物质:葡萄糖、SAM、GSH、L-甲硫氨酸、L-半胱氨酸、γ-GC、NADH、NAD+、ATP、ADP
2.7 动力学分析
动力学参数包括比细胞生长速率(μ)、比SAM产率(q P-SAM)、比GSH产率(q P-GSH)、生物量、SAM和GSH对葡萄糖的得率,以及生物量和SAM与GSH协同生产的产率,均按先前描述的方法计算。胞内SAM含量(ISC)和胞内GSH含量(IGC)按Wang等(2019)定义和计算。
【数据】动力学参数:μ、q P-SAM、q P-GSH、生物量得率、SAM得率、GSH得率、协同产率;ISC和IGC定义依据:Wang et al. (2019)
2.8 代谢通量分析
产朊假丝酵母中SAM和GSH生物合成途径关键代谢物的碳通量使用MATLAB 7.0(MathWorks, Natick, MA, USA)基于先前构建的代谢网络计算。代谢通量计算假设中间代谢物处于准稳态。
【数据】软件:MATLAB 7.0;假设条件:中间代谢物准稳态
2.9 统计分析
所有实验和生化测定均设三个重复。数据以平均值±标准差(SD)表示。使用SPSS 26(SPSS Inc., Chicago, IL, USA)进行双因素方差分析(ANOVA),随后进行Tukey事后检验以评估差异显著性,p ≤ 0.05视为统计学显著。
【数据】重复数:3;数据表示:平均值±SD;统计软件:SPSS 26;统计方法:双因素ANOVA + Tukey事后检验;显著性阈值:p ≤ 0.05
研究结果
3.1 MET15敲除、过表达和回补菌株的构建
针对MET15进行遗传操作,构建了产朊假丝酵母的基因敲除(met15Δ)、过表达(MET15-OE)和回补(met15Δ::MET15)菌株。通过菌落PCR(图S3–S5)和qRT-PCR(图S6)确认了成功构建和基因型验证。18 h培养物的光学显微镜(400×,图S7)和SEM(3,000×,图1)观察显示,改造菌株与PS之间无明显形态差异,表明MET15改造不改变产朊假丝酵母的核心形态特征,从而支持正常的发酵生理。
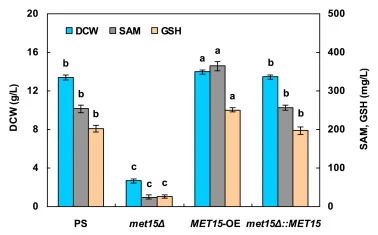
进行摇瓶培养以评估MET15操作对细胞生长及SAM和GSH生物合成的影响。如图2所示,met15Δ表现出严重缺陷:DCW、SAM和GSH水平分别降至PS的20.1%、9.7%和13.0%。相反,MET15-OE显示DCW略有改善(PS的104.4%),SAM(PS的143.7%)和GSH(PS的124.0%)积累显著增强。此外,met15Δ::MET15完全恢复了细胞生长及SAM和GSH的生物合成能力至PS水平。这些结果证实MET15是产朊假丝酵母中调控SAM和GSH生物合成的正调控因子,过表达有效强化了这些代谢物的协同生产。
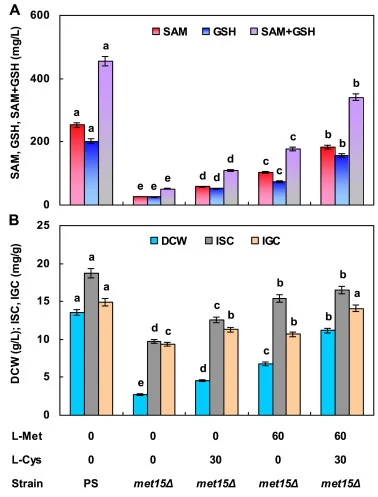
为验证MET15敲除是否限制了胞内L-甲硫氨酸和L-半胱氨酸的供给,在发酵培养基中补充了单一或两种氨基酸(图3)。补充单一氨基酸部分恢复了met15Δ的细胞生长及SAM和GSH生物合成,但联合补充仅恢复至PS协同生产水平的约75%,表明内源性含硫氨基酸供给对细胞生长和代谢物生产至关重要。MET15-OE的遗传稳定性通过在种子平板上传代10代验证,每代在基本发酵培养基中培养。DCW、ISC和IGC在各代间保持一致(图S8),支持其适用于连续食品应用。
【数据】met15Δ的DCW:PS的20.1%;met15Δ的SAM:PS的9.7%;met15Δ的GSH:PS的13.0%;MET15-OE的DCW:PS的104.4%;MET15-OE的SAM:PS的143.7%;MET15-OE的GSH:PS的124.0%;联合补充氨基酸后met15Δ协同生产恢复水平:约PS的75%;遗传稳定性传代数:10代;形态观察时间:18 h;光学显微镜放大倍数:400×;SEM放大倍数:3,000×
3.2 产朊假丝酵母分批培养协同生产SAM和GSH
#### 3.2.1 分批过程与动力学分析
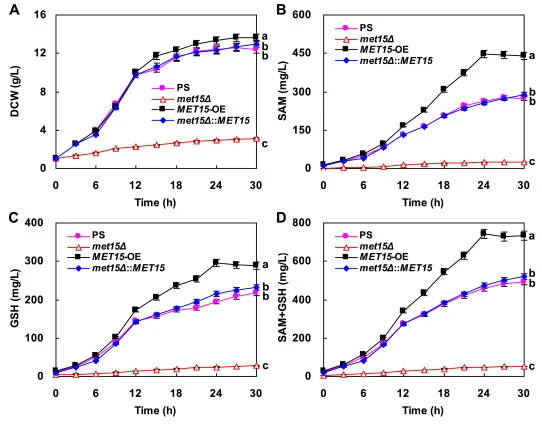
改造菌株和PS的分批培养在5 L搅拌发酵罐中进行。如图4所示,met15Δ表现出细胞生长微弱且SAM和GSH生物合成受限,而MET15-OE相比PS实现了更高的DCW和更优的SAM与GSH协同生产。met15Δ::MET15在生物量和产物积累方面表现出与PS高度一致的特征。
动力学参数(表1)显示,与PS相比,MET15-OE的DCW提高8.2%,SAM提高61.9%,GSH提高35.6%,SAM与GSH协同产量提高48.9%。其ISC(47.3%)、IGC(26.5%)、μ(3.3%)、q P-SAM(38.5%)、q P-GSH(56.1%)、SAM和GSH得率(54.4%)以及SAM和GSH产率(51.0%)均显著提升。这些发现表明MET15过表达促进了两种代谢物的单细胞生物合成能力,从而驱动SAM和GSH的最大化协同生产。
【数据】DCW提高:8.2%;SAM提高:61.9%;GSH提高:35.6%;协同产量提高:48.9%;ISC提高:47.3%;IGC提高:26.5%;μ提高:3.3%;q P-SAM提高:38.5%;q P-GSH提高:56.1%;SAM和GSH得率提高:54.4%;SAM和GSH产率提高:51.0%;发酵罐体积:5 L
#### 3.2.2 关键酶活性
MAT和γ-GCS分别是SAM和GSH生物合成的限速酶。如图5所示,MET15-OE在整个分批培养过程中维持了显著更高的MAT和γ-GCS活性,而met15Δ则表现出急剧下降(MAT:PS的23.0%;γ-GCS:PS的44.8%)。MET15-OE的平均MAT活性比PS高53.3%,平均γ-GCS活性高73.8%。met15Δ::MET15的酶活性与PS相当。这些结果证实MET15过表达增强了关键酶的活性,从而促进SAM和GSH的协同生产。
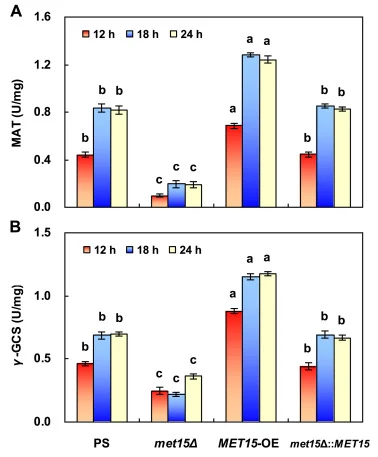
【数据】met15Δ的MAT活性:PS的23.0%;met15Δ的γ-GCS活性:PS的44.8%;MET15-OE平均MAT活性提高:53.3%;MET15-OE平均γ-GCS活性提高:73.8%
#### 3.2.3 胞内前体含量
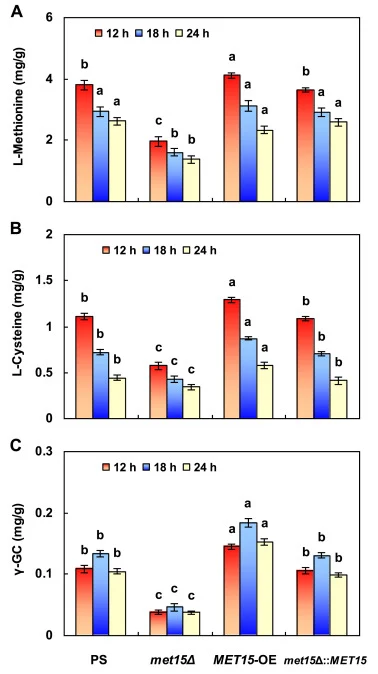
SAM和GSH的生物合成依赖于含硫氨基酸前体的充足供给,包括L-甲硫氨酸、L-半胱氨酸和γ-GC。如图6所示,MET15-OE的胞内前体含量显著更高,而met15Δ在相同时间点的水平低于PS。在分批培养12 h至24 h期间,L-甲硫氨酸和L-半胱氨酸水平逐渐下降,这归因于它们被细胞代谢持续消耗,特别是用于SAM和GSH的生物合成。胞内γ-GC含量在18 h达到峰值后下降,表明其被高效转化为GSH。在18 h时,MET15-OE的L-甲硫氨酸比PS高6.5%,L-半胱氨酸高21.0%,γ-GC高37.3%,为增强SAM和GSH协同生产提供了坚实的物质基础。
【数据】18 h时MET15-OE的L-甲硫氨酸:比PS高6.5%;L-半胱氨酸:比PS高21.0%;γ-GC:比PS高37.3%;γ-GC峰值时间:18 h;前体下降时间段:12–24 h
#### 3.2.4 能量供给
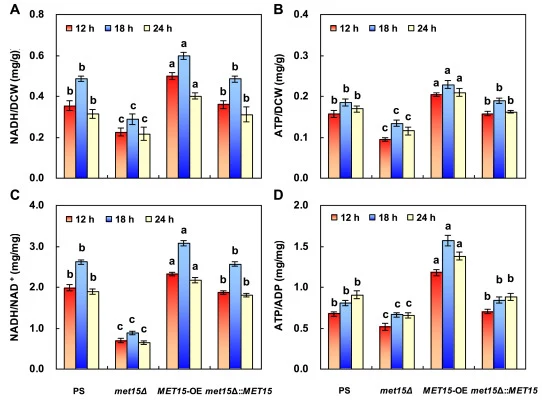
SAM和GSH的生物合成是能量密集型过程,需要充足的ATP。如图7所示,MET15-OE的胞内NADH和ATP水平以及NADH/NAD+和ATP/ADP比值均显著高于PS(均在18 h达到峰值)。MET15-OE中升高的能量水平和增强的NADH与ATP再生支持了MAT和γ-GCS的催化,从而与前体充足供给协同驱动SAM和GSH的高效生产。相反,met15Δ表现出较低的胞内NADH和ATP水平,可能导致了其SAM和GSH协同生产的降低。
【数据】NADH和ATP峰值时间:18 h;MET15-OE的NADH、ATP、NADH/NAD+、ATP/ADP均显著高于PS
#### 3.2.5 代谢通量分析
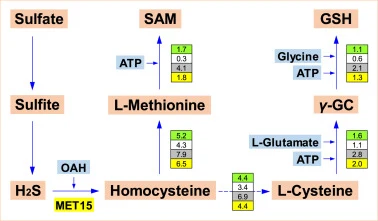
为探究MET15操作对SAM和GSH生物合成途径中间代谢物的影响,计算了关键代谢物的碳通量并以葡萄糖消耗通量100进行归一化。鉴于12 h后各菌株在细胞生长和SAM、GSH生物合成方面的差异(图3),计算并比较了该时间点后的通量分布(表S4)。具体而言,MET15-OE将更高的通量导向甘氨酸(r25)、L-半胱氨酸(r26)、L-谷氨酸(r35)和L-甲硫氨酸(r44),将更多碳通量导入GSH(r62, r63)和SAM(r66)的生物合成,优于其他菌株。此外,构建了关键含硫代谢物的代谢通量分布流程图(图8),提供了MET15改造效应的全局视图。这些结果揭示MET15-OE增强了内源性含硫氨基酸供给,以支持改善的SAM和GSH协同生产。
【数据】归一化基准:葡萄糖消耗通量=100;通量计算时间点:12 h后;MET15-OE高流通量节点:甘氨酸(r25)、L-半胱氨酸(r26)、L-谷氨酸(r35)、L-甲硫氨酸(r44);GSH合成通量:r62、r63;SAM合成通量:r66
3.3 补料分批培养中SAM和GSH的高效协同生产
为进一步提高SAM和GSH的协同生产,采用多项式补料策略对MET15-OE进行补料分批培养以实现高细胞密度。如图9所示,生物量在30 h迅速增至69.04 g/L,比PS高9.4%。SAM和GSH的积累持续至36 h,最终滴度分别为1,190.2 mg/L和1,052.5 mg/L,分别比PS高38.9%和58.7%。SAM和GSH的协同产量达到2,242.7 mg/L,比PS提高49.1%(表S5)。值得注意的是,虽然胞内SAM和GSH含量低于分批培养(表1),但生物量的显著增加驱动了SAM和GSH总协同产量的大幅提升。这些结果表明MET15过表达结合高密度培养是增强SAM和GSH协同生产的有效策略。
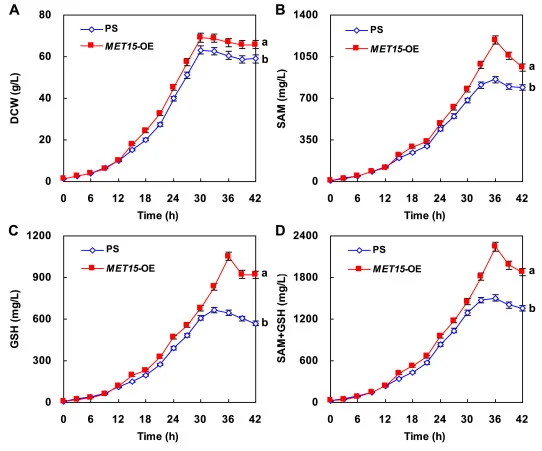
【数据】最高DCW:69.04 g/L(30 h);DCW比PS提高:9.4%;SAM最终滴度:1,190.2 mg/L(36 h);GSH最终滴度:1,052.5 mg/L(36 h);SAM比PS提高:38.9%;GSH比PS提高:58.7%;协同产量:2,242.7 mg/L;协同产量比PS提高:49.1%
讨论与解读
SAM和GSH是广泛用作功能食品添加剂的高价值含硫生物活性化合物。在绿色生物合成路线中,食品级酵母菌株作为微生物细胞工厂优于化学合成途径。在食品生产的GRAS微生物中,酿酒酵母是SAM和GSH过量生产中使用最广泛的工程底盘,而产朊假丝酵母具有更优的细胞增殖能力、强大的无机硫同化能力且无致病风险,更适合SAM和GSH的大规模协同生产。
传统代谢操作研究仅优化工艺参数(如pH、溶解氧、碳源补料策略)或增加能量供给,未能从根本上解决上游含硫氨基酸生物合成通量的代谢瓶颈。本研究构建的MET15-OE工程菌为食品生物制造提供了两方面独特优势。第一,MET15的靶向改造不改变细胞微观形态,连续传代10代证实了稳定的遗传特性,满足连续工业应用对菌株稳定性的严格要求。第二,MET15-OE表现出增强的SAM和GSH生物合成能力,且无需外源添加氨基酸,降低了生产成本。
编译者解读:该研究选择MET15作为单一靶点进行代谢工程改造,策略简洁且效果显著——过表达使SAM和GSH协同产量在补料分批中提高49.1%,同时消除了外源氨基酸补加需求,在食品级发酵生产中具有成本优势。但单一基因过表达的提升幅度存在上限,未来可考虑与能量代谢或前体供给途径的多靶点协同改造,进一步释放产朊假丝酵母的合成潜力。
参考来源
期刊:Food Bioscience, 2026
DOI: 10.1016/j.fbio.2026.110031
DOI: 10.1016/j.fbio.2026.110031