来源:Discovery of a thermostable eugenol oxidase for vanillin biosynthesis from vanillyl alcohol via resting whole-cell catalysis(Bioorganic Chemistry)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
香兰素是全球需求量最大的芳香风味化合物之一,年需求约2万吨,但95%以上依赖石化原料化学合成。天然提取受限于香草荚产量,每年不足2000吨。本文通过数据挖掘从Capillimicrobium sp.中发现了一个新型热稳定性丁香酚氧化酶CsEUGO,在大肠杆菌中实现可溶性过表达,构建全细胞生物催化剂。该催化剂在有氧条件下选择性氧化香草醇,仅生成香兰素,无过度氧化产物。在最优条件下,200 mM底物转化率达93%;采用补料分批策略,香兰素产量达208 mM,产率1.0 g L⁻¹ h⁻¹,得率83%。该酶还展现出对多种酚类底物的广谱催化能力。
研究背景
香兰素在化妆品、食品和制药行业应用广泛,近年研究还发现其可作为有机合成和材料科学的前体。传统上香兰素从Vanilla planifolia荚果中提取,但天然来源年产量不足2000吨,远不能满足全球约2万吨的年需求,且预计2023至2030年间需求将增长7.5%。目前工业上超过95%的香兰素通过石化前体的化学催化生产,但化学合成存在高温、高压、有毒金属催化剂等弊端。随着健康关注度提升,多国食品安全机构已开始限制化学合成香兰素在食品和药品中的使用。在此背景下,以纯化酶或微生物细胞为催化剂的生物催化合成香兰素成为有吸引力的替代路线。细菌丁香酚氧化酶(EUGOs)属于VAO/PCMH黄素蛋白家族的4-酚氧化酶亚家族,是生物技术和有机合成中有潜力的多功能生物催化剂。然而,能够选择性氧化香草醇生成香兰素的生物催化剂报道仍然很少。
研究方法
2.1 化学试剂与实验材料
质粒分离MiniBEST试剂盒购自TaKaRa(中国上海)。抗生素、异丙基-β-D-1-硫代吡喃半乳糖苷(IPTG)、BeyoGold His标签纯化树脂和用于浓度测定的Bradford蛋白试剂盒均购自碧云天生物技术(中国上海)。重组质粒构建试剂盒购自TaKaRa(中国上海)。引物合成和基因测序由擎科生物(中国北京)完成。BeyoGold™ His标签蛋白纯化试剂盒(Fast Flow, NTACo)(货号:P2222–10)购自碧云天(中国上海)。基因合成服务由金斯瑞生物科技(中国南京)提供,随后用于重组质粒的构建。CsEUGO的氨基酸序列见补充材料。质粒载体pMAL-c5X和大肠杆菌BL21 (DE3)菌株购自金斯瑞生物科技(中国南京),香兰素(99%)、香草醇(98%)和香草酸(98%)购自TCI公司(日本东京)。本工作中使用的所有化学试剂均由商业供应商提供,未经进一步纯化直接使用。用于配制培养基的牛肉膏和蛋白胨购自Oxoid(中国北京)。
【数据】试剂来源:TaKaRa、碧云天、擎科、金斯瑞、TCI、Oxoid;香兰素纯度:99%;香草醇纯度:98%;香草酸纯度:98%;缓冲液:磷酸缓冲液(100 mM, pH 7.4)
2.2 CsEUGO在重组大肠杆菌细胞中的发现与表达
以来自Rhodococcus jostii RHA1的RjEUGO氨基酸序列(Gene Bank ID: Q0SBK1)作为基因挖掘的探针。使用BLASTP算法在NCBI数据库中进行非冗余序列的同源性搜索,序列一致性阈值设定为≤75%。此举旨在确保收集候选氧化还原酶序列。使用MEGA X软件进行多序列比对[31]。基于Jones–Taylor–Thornton替换模型,采用邻接法从比对结果构建系统发育树。使用EMBL在线服务和ESPript 3.0进行多序列比对的可视化[32]。密码子优化后的CsEUGO基因由金斯瑞生物科技(中国南京)合成,分别使用pMAL-c5X载体和pRSFDuet-1载体构建重组质粒,用于CsEUGO基因在大肠杆菌BL21 (DE3)细胞中的表达。将携带重组质粒的大肠杆菌BL21 (DE3)细胞过夜培养,然后转入100 mL含适当抗生素的LB培养基中。培养物在37 °C、200 rpm振荡条件下继续生长。当600 nm处光密度值达到0.6时,向培养物中添加1.0 mM IPTG,在15 °C下诱导酶基因表达16 h。随后,在4 °C、8000 rpm离心10 min收集细胞。细胞经过两次洗涤后重悬于10 mL磷酸缓冲液(100 mM, pH 7.4)中。随后通过超声破碎细胞。通过十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)确认CsEUGO基因的表达;使用BeyoGold His标签蛋白纯化试剂盒(碧云天,中国上海)进行CsEUGO纯化,使用Bradford蛋白测定试剂盒(碧云天,中国上海)测定纯化CsEUGO蛋白的浓度。
【数据】探针:RjEUGO (Q0SBK1);一致性阈值:≤75%;培养基:LB;诱导温度:37 °C;诱导OD600:0.6;IPTG浓度:1.0 mM;表达温度:15 °C;表达时间:16 h;离心条件:8000 rpm, 4 °C, 10 min;重悬缓冲液:磷酸缓冲液(100 mM, pH 7.4);重悬体积:10 mL
2.3 全细胞生物催化氧化香草醇的通用方法
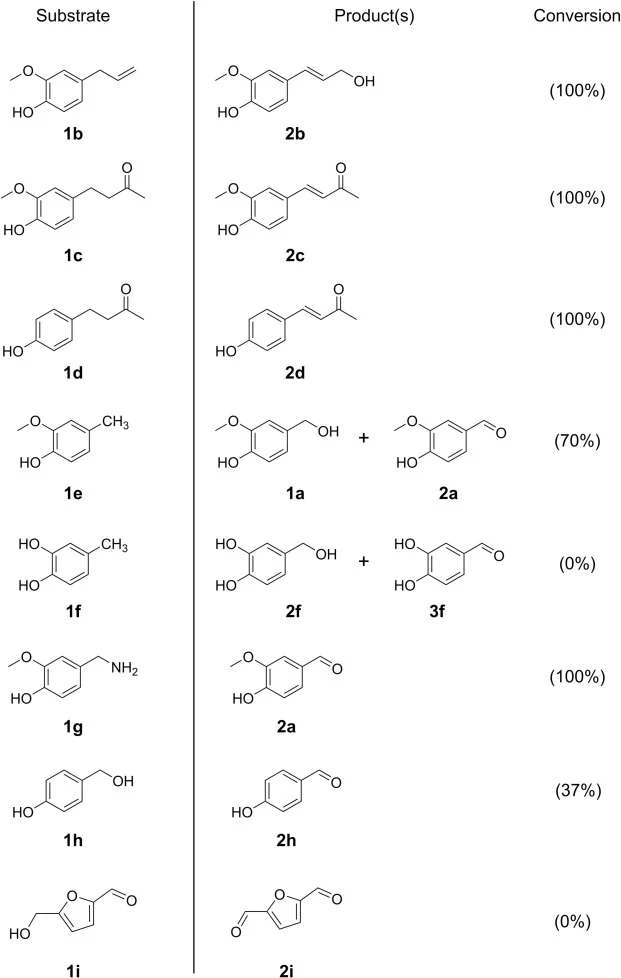
使用携带pMAL-c5X-CsEUGO重组质粒的大肠杆菌细胞,在15 °C下表达CsEUGO基因16 h。收集细胞沉淀,用磷酸缓冲液(100 mM, pH 7.4)洗涤两次,用于后续生物转化。全细胞催化转化过程在5 mL磷酸缓冲液中进行,包含香草醇(100 mM)、10% v/v浓度的二甲基亚砜(DMSO)和湿重组大肠杆菌-CsEUGO细胞(0.1 g/mL)。反应混合物保持在30 °C,以500 rpm搅拌以促进生物转化。然后加入3 mL乙酸乙酯终止反应。剧烈涡旋混合后,取萃取后的有机溶剂进行气相色谱(GC)分析。得率计算为观察到的香兰素产物相对于香草醇初始浓度的百分比。化合物1b至1g各以10 mM浓度作为底物用于反应,以研究CsEUGO的底物范围,遵循上述程序。补料分批实验中香兰素产率使用以下公式计算:
得率% = 香兰素产量(mmol)/ 香草醇底物总量(mmol)× 100%
产率(g L⁻¹ h⁻¹)= 香兰素浓度(g L⁻¹)/ 反应时间(h)× 100%
【数据】表达温度:15 °C;表达时间:16 h;洗涤缓冲液:磷酸缓冲液(100 mM, pH 7.4);反应体积:5 mL;底物浓度:100 mM;DMSO浓度:10% v/v;细胞浓度:0.1 g/mL;反应温度:30 °C;搅拌速度:500 rpm;终止试剂:3 mL乙酸乙酯;底物范围测试浓度:10 mM
2.4 大肠杆菌-CsEUGO全细胞生物催化剂的表征
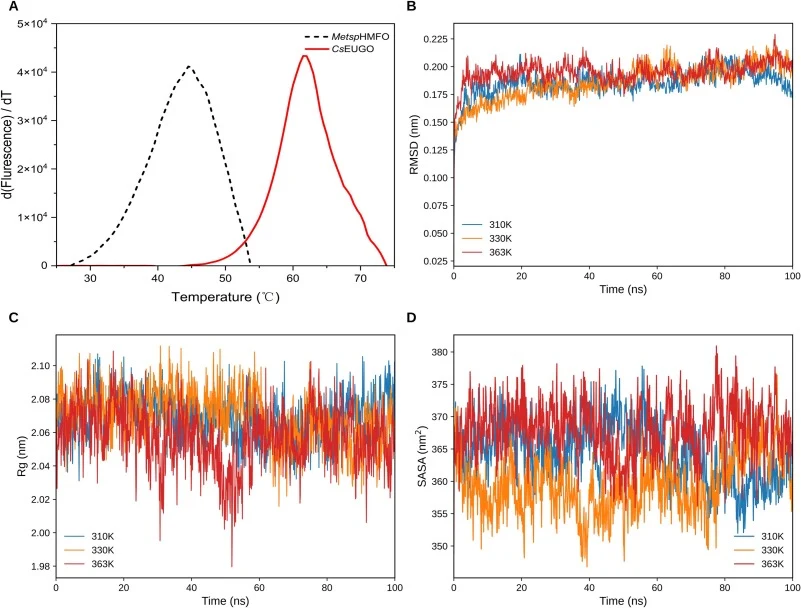
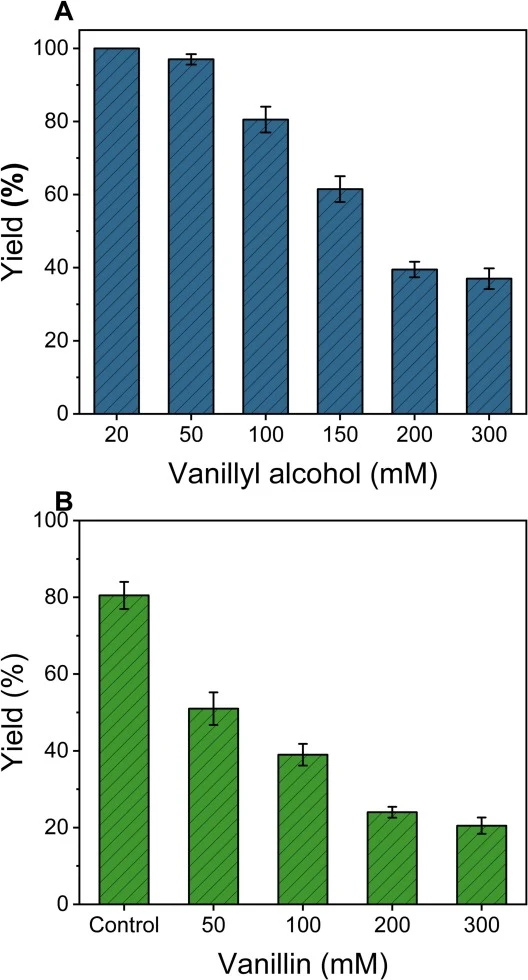
大肠杆菌-CsEUGO生物催化剂的最适反应温度和pH在2.3节所述通用反应条件下测定,仅改变反应温度和pH。使用生物催化将香草醇转化为香兰素的反应在五个温度(20 °C、30 °C、40 °C、50 °C和60 °C)下进行,以确定大肠杆菌-CsEUGO细胞的最适反应温度。接下来,使用以下缓冲液(100 mM)确定最适反应pH:pH范围5.0至6.0的磷酸缓冲液、pH范围7.0至9.0的Tris-HCl缓冲液、pH范围9.0至10.0的Na₂CO₃-NaHCO₃缓冲液。反应设双平行,计算香草醇底物的转化率。底物和香兰素产物对细胞的抑制效应如下研究:将细胞与不同浓度的香兰素(50 mM至300 mM)在30 °C、500 rpm搅拌速度下孵育1小时。随后,按照前述标准程序,通过香草醇转化评估处理细胞的催化活性。未暴露于香兰素的大肠杆菌-CsEUGO细胞作为对照。大肠杆菌-CsEUGO细胞的热稳定性通过将制备的细胞在磷酸缓冲液中、300 rpm搅拌下、不同温度范围内孵育1、2、4、6和12 h进行系统研究。随后,将细胞用于香草醇转化过程以评估其残余催化活性。具体而言,将0.1 g/mL细胞在40 °C、50 °C和60 °C下保持指定时间。随后,将细胞置于冰上冷却。热处理细胞的催化活性使用含0.1 g/mL细胞和100 mM香草醇底物的5 mL反应混合物,在30 °C、500 rpm搅拌下反应24 h进行评估。未进行热处理的细胞作为对照。纯化CsEUGO蛋白的热稳定性按照ThermoFAD方案测定,使用StepOnePlus™实时PCR系统和48孔RT-PCR板(Biorad Laboratories)。通过从20至90 °C每0.5 °C测量一次荧光生成去折叠曲线,信号稳定延迟10 s。然后使用去折叠曲线一阶导数的最大值确定Tm值。
【数据】温度梯度:20 °C、30 °C、40 °C、50 °C、60 °C;pH缓冲液:磷酸缓冲液(pH 5.0-6.0)、Tris-HCl缓冲液(pH 7.0-9.0)、Na₂CO₃-NaHCO₃缓冲液(pH 9.0-10.0);香兰素抑制浓度:50-300 mM;孵育条件:30 °C, 500 rpm, 1 h;热稳定性孵育:300 rpm, 1/2/4/6/12 h;热稳定性温度:40 °C、50 °C、60 °C;细胞浓度:0.1 g/mL;底物浓度:100 mM;反应条件:30 °C, 500 rpm, 24 h;ThermoFAD温度范围:20-90 °C;荧光测量间隔:0.5 °C;信号稳定延迟:10 s
2.5 分子动力学模拟
全原子分子动力学(MD)模拟使用GROMACS 2021.3进行[33,34]。初始系统包含CsEUGO蛋白-FAD复合物,其三维结构由AlphaFold3预测[35]。为模拟生理条件,使用PROPKA在pH 7.0下优化蛋白质的质子化状态[36],所有分子组分置于9.0 × 11.0 × 7.0 nm的周期性模拟盒子中。系统包含约73,000个原子。
【数据】软件:GROMACS 2021.3;结构预测:AlphaFold3;质子化优化:PROPKA, pH 7.0;模拟盒子尺寸:9.0 × 11.0 × 7.0 nm;原子数:约73,000
研究结果
3.1 重组细胞大肠杆菌-CsEUGO作为香兰素合成生物催化剂的构建
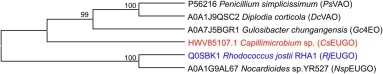
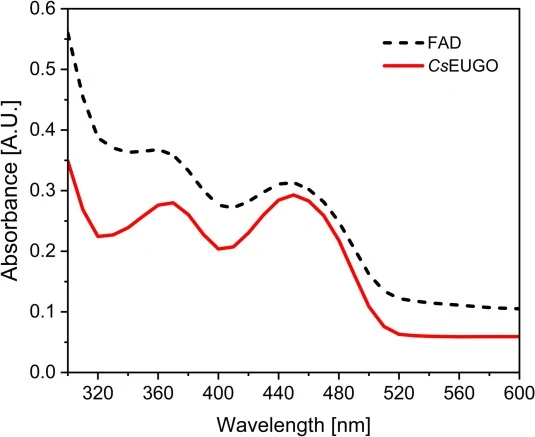
生物催化氧化木质素衍生的香草醇是从可再生资源合成香兰素的有效方法。迄今为止,通过选择性氧化香草醇生物催化合成香兰素的报道很少[27–29]。鉴于对此类氧化酶日益增长的需求,我们采用数据挖掘方法鉴定能选择性氧化香草醇生成香兰素的新酶,以RjEUGO作为探针。在NCBI数据库中进行BLAST搜索,鉴定与RjEUGO一致性≤75%的氨基酸序列(表S1)。根据注释信息,所有选定的序列均为细菌黄素腺嘌呤二核苷酸(FAD)结合氧化还原酶。接下来,基于4-酚氧化酶的典型记录序列基序,以及已建立EUGO的关键氨基酸残基和保守结构域[21,40],对获得的序列进行精炼以鉴定潜在的新EUGO氨基酸序列。鉴定出来自Capillimicrobium sp.的一个先前未表征的推定FAD结合氧化酶(GenBank ID: HWV85107.1)。该推定氧化酶被暂时命名为CsEUGO,通过将其氨基酸序列与已知EUGO和PsVAO比较,进一步分析确认其属于4-酚氧化酶家族(图S1)。CsEUGO表现出4-酚氧化酶家族特征的保守氨基酸和区域。此外,CsEUGO具有保守的FAD结合序列基序(P-x-x-x-x-S-x-G-[RK]-N-x-G-Y-G-[GS]),该基序也存在于RjEUGO和NspEUGO中[22,25]。此外,它与PsVAO的序列一致性为48.2%,表明与RjEUGO的系统发育关系比PsVAO更近(图1)。
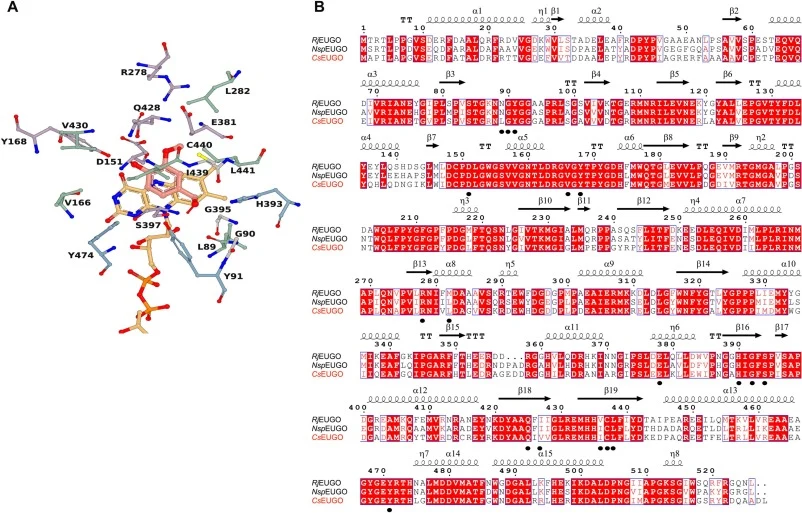
随后,基于RjEUGO的晶体结构,使用AlphaFold 3创建了CsEUGO的三维结构模型。结果表明,除L89、L282和V430外,CsEUGO活性位点的氨基酸残基与RjEUGO模板活性位点的氨基酸残基相同(图2A)[41]。氨基酸多序列比对显示,CsEUGO与RjEUGO和NspEUGO的氨基酸一致性分别为69.3%和67.8%(图2B)。因此,新鉴定的来自Capillimicrobium sp.的推定丁香酚氧化酶被命名为CsEUGO。该蛋白由531个氨基酸组成(表S2),预测分子量为59.2 kDa,等电点(pI)为4.80,由Expasy ProtParam工具确定[42]。
为实现CsEUGO在大肠杆菌细胞中的最佳表达,将合成的密码子优化CsEUGO基因分别插入载体构建重组质粒pMAL-c5X-CsEUGO和pRSFDuet-CsEUGO(图S2)。SDS-PAGE分析显示,两种重组质粒均可用于CsEUGO的可溶性过表达。值得注意的是,与pRSFDuet-1载体相比,pMAL-c5X载体产生了更高比例的可溶性麦芽糖结合蛋白(MBP)标签融合CsEUGO。使用亲和纯化试剂盒可轻松获得纯化的CsEUGO蛋白(图S3A–S3C)。结果表明MBP标签促进了酶蛋白的表达。因此,后续实验选择pMAL-c5X载体用于CsEUGO在大肠杆菌细胞中的表达。
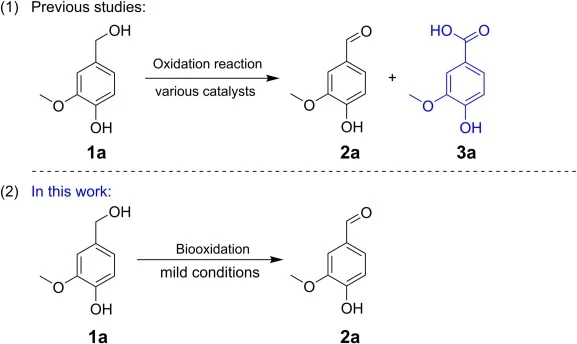
新发现的CsEUGO的催化活性使用100 mM香草醇底物评估香兰素的生物合成。为避免繁琐的蛋白纯化过程,使用表达CsEUGO的静息大肠杆菌细胞代替纯化蛋白。有趣的是,24 h后,香草醇(1a)转化为香兰素(2a),未检测到过度氧化产物香草酸(3a)。转化率达到78%(图S4),表明优异的催化选择性。因此,初步结果表明重组大肠杆菌-CsEUGO细胞可作为生物催化剂,通过全细胞催化有氧氧化香草醇生产香兰素。
【数据】序列一致性:CsEUGO与RjEUGO为69.3%;CsEUGO与NspEUGO为67.8%;CsEUGO与PsVAO为48.2%;氨基酸数:531;分子量:59.2 kDa;pI:4.80;底物浓度:100 mM;转化率:78%;反应时间:24 h;活性位点差异残基:L89、L282、V430
3.2 大肠杆菌-CsEUGO生物催化剂的催化特性
为进一步探索大肠杆菌-CsEUGO全细胞生物催化剂的催化潜力,我们对其催化特性进行了表征。首先,鉴于生物催化剂固有的热不稳定性,确定最适反应温度为30 °C。在此温度下,100 mM香草醇反应24 h后获得最大产物得率76%(图3A)。此外,全细胞生物催化剂在20 °C至60 °C范围内表现出相当高的活性。在60 °C下,得率达到43%。值得注意的是,酶或全细胞在如此高的反应温度下表现出催化活性并不常见。因此,我们推测新发现的CsEUGO可能是一种热稳定性氧化酶。此外,在不同温度下香兰素始终是唯一产物,凸显了该生物催化剂的优异选择性。其次,研究了大肠杆菌-CsEUGO全细胞生物催化剂用于香兰素生产的最适反应pH。图3B显示,大肠杆菌-CsEUGO细胞在pH 5至10范围内表现出良好的催化性能。在pH 7的Tris-HCl缓冲液中获得最佳香兰素得率81%。此外,在pH 5的磷酸缓冲液和pH 10的Na₂CO₃-NaHCO₃缓冲液中分别获得50%和53%的得率。
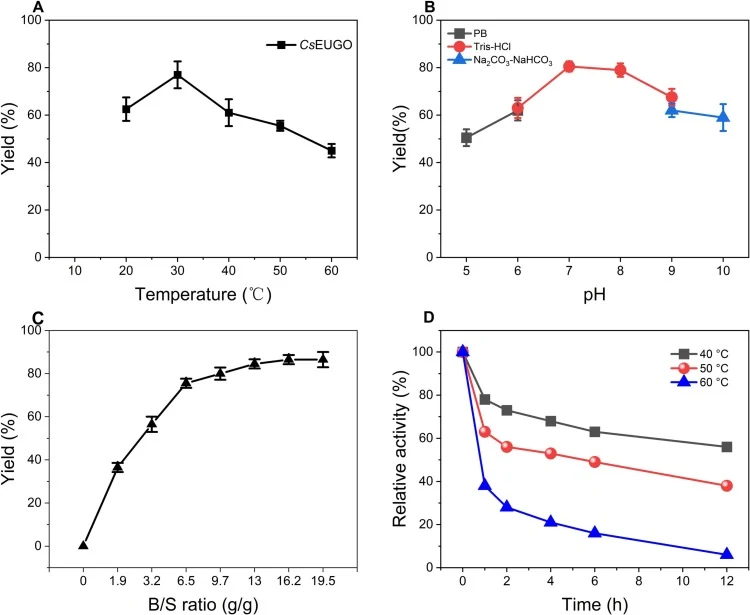
第三,在生物催化系统中,生物催化剂/底物比(B/S比)是评估酶或全细胞生物催化剂催化能力并确定其在催化过程中可行性的关键参数。此外,生物催化剂负载量可能影响生物催化中的传质、底物分配和摄取。使用过高的B/S比可能使下游过程中目标产物的纯化复杂化。因此,我们考察了不同B/S比(范围1.9:1至19.5:1)对大肠杆菌-CsEUGO细胞催化香草醇氧化的影响。如图3C所示,当B/S比小于16.2:1时,其与产物得率增加呈强正相关,表明生物催化剂未达到底物饱和。然而,当B/S比为16.2时得率为84%,进一步将B/S比提高至19.5:1并未在当前反应条件下获得更高的香兰素得率。然而,将香草醇转化为香兰素的B/S比较高,不尽如人意,表明通过上调大肠杆菌细胞中CsEUGO的表达仍有改进空间。或者,可在未来研究中通过酶工程提高酶的催化效率。
表现出高热阻的生物催化剂在生物催化中受到青睐,因为实际生物转化过程通常在相对较高的温度下进行[43,44]。过去几十年来,一些热稳定性酶和细胞因其固有稳定性已被用作工业应用中的生物催化剂[43,45]。随后通过在不同温度下孵育细胞不同时间评估大肠杆菌-CsEUGO细胞的热稳定性。将处理后的细胞用于香草醇向香兰素的转化,然后以未处理细胞为对照检测残余催化活性。如图3D所示,与对照相比,大肠杆菌-CsEUGO细胞在40 °C孵育6 h和12 h后分别保留63%和57%的活性。当温度达到50 °C时,细胞在孵育6 h和12 h后分别保持50%和40%的活性。此外,在60 °C孵育1 h的细胞表现出39%的活性。
【数据】最适温度:30 °C;30 °C得率:76%;60 °C得率:43%;最适pH:7.0(Tris-HCl);最适pH得率:81%;pH 5得率:50%;pH 10得率:53%;B/S比范围:1.9:1-19.5:1;B/S比16.2:1得率:84%;40 °C 6h残余活性:63%;40 °C 12h残余活性:57%;50 °C 6h残余活性:50%;50 °C 12h残余活性:40%;60 °C 1h残余活性:39%
3.3 底物范围
3.4 香草醇转化香兰素的时间进程
3.5 香草醇催化合成香兰素
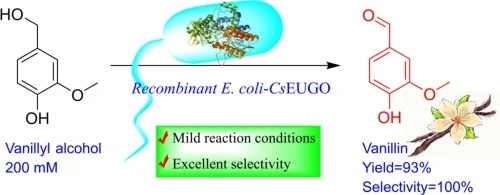
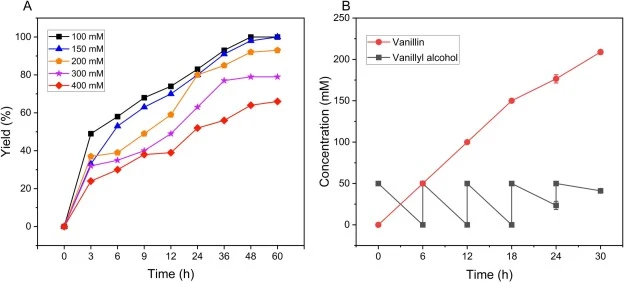
【数据】最适条件下200 mM底物得率:93%;补料分批香兰素总产量:208 mM;产率:1.0 g L⁻¹ h⁻¹;补料分批得率:83%
讨论与解读
本研究通过数据挖掘从Capillimicrobium sp.中鉴定了一个新型热稳定性丁香酚氧化酶CsEUGO,与已表征的RjEUGO氨基酸序列一致性为69.3%。构建的重组大肠杆菌-CsEUGO细胞作为有效的全细胞生物催化剂,在有氧条件下选择性氧化香草醇生物合成香兰素。全细胞催化过程即使在高浓度香草醇底物水平下也仅产生香兰素这一唯一产物,展现出卓越的催化活性和选择性。在最优反应条件下,200 mM香草醇的香兰素得率高达93%。此外,采用补料分批策略香兰素浓度达到208 mM,产率为1.0 g L⁻¹ h⁻¹。大肠杆菌-CsEUGO细胞生物催化剂还能有效催化香草胺的氧化脱氨、丁香酚的羟基化以及酚类底物的脱氢反应,展示了其多功能催化能力。总体而言,本研究开发的大肠杆菌-CsEUGO全细胞生物催化剂还可用于生产其他有价值的芳香醛,从而拓宽了木质素酚类化合物增值利用的生物催化工具箱。
编译者解读
该研究的亮点在于以数据挖掘策略从微生物基因组中“淘”出一个热稳定性好、选择性极高的丁香酚氧化酶,并用全细胞催化绕开了纯酶制备的成本瓶颈。200 mM底物、93%得率、1.0 g L⁻¹ h⁻¹产率的指标在同类酶催化体系中颇具竞争力。不过,B/S比偏高(16.2:1)暴露了细胞内酶表达量或催化效率的不足,这是未来酶工程改造或表达调控的明确切入点。此外,底物范围实验虽展示了广谱性,但各底物的转化率和选择性数据在节选中未完整呈现,其“广谱”的实际应用价值仍需更系统的动力学数据支撑。
参考来源
期刊:Bioorganic Chemistry, 2026
DOI: 10.1016/j.bioorg.2026.110424
DOI: 10.1016/j.bioorg.2026.110424