来源:Rational design of a genetically encoded fluorescent biosensor for real-time and bidirectional detection of μ-opioid receptor signaling(Biosensors and Bioelectronics)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
μ-阿片受体(MOR)是疼痛治疗的关键靶点,但现有工具难以实时、双向监测其激活过程。本研究报道了GEgMOR——一种通过AlphaFold3辅助理性设计与基因工程相结合开发的遗传编码荧光生物传感器。该策略将所需突变体构建数量从数千个锐减至239个,显著提升了开发效率。GEgMOR在活细胞中展现出卓越性能:最大荧光响应达472.8%,是现有最先进MOR传感器的8.6倍;纳摩尔级亲和力(EC50 = 39.67 nM);快速动力学(τon ≈ 1.7 s,τoff ≈ 4.9 s);并在单光子和双光子激发下均具有优异的光稳定性。该传感器首次实现了在单一系统中对MOR构象变化的实时、连续、双向监测。
研究背景
疼痛是全球公共卫生领域的重大挑战,给个人和医疗系统带来沉重负担。μ-阿片受体(MOR)属于A类G蛋白偶联受体(GPCR),是疼痛管理的关键治疗靶点。传统激动剂虽为强效镇痛药,但存在成瘾和呼吸抑制的高风险。这些局限源于MOR复杂的构象动态——这一关键因素可引发多条下游信号通路。因此,在活细胞中实时原位监测MOR构象变化(尤其是激动剂-拮抗剂状态切换)对于阐明其功能、推动新药发现至关重要。
当前的结合实验,如放射性配体结合实验、微量热泳动(MST)、表面等离子体共振(SPR)和生物膜层干涉(BLI),仅能评估配体-受体结合亲和力,无法直接反映受体的功能状态。基于下游信号的功能实验,如cAMP累积实验、钙流荧光实验以及G蛋白或β-arrestin-2招募检测,多为终点测量,难以捕捉MOR激活与失活的动态过程。因此,亟需一种能够在活细胞中实时、双向监测MOR构象变化的工具。
研究方法
2 实验部分 实验的详细步骤见补充信息(SI)。
【数据】原文未详述具体实验步骤参数(详见补充信息)
研究结果
3 结果与讨论
3.1 MOR荧光传感器的理性设计与构建
为开发MOR功能性荧光传感器,我们采用了整合AlphaFold3与迭代实验优化的结构导向设计策略。首先分析了MOR的结构特征与激活机制,因其激活涉及对传感器设计至关重要的独特构象重排。MOR包含七次跨膜螺旋(TM1–7),由三个胞外环(ECL1–3)和三个胞内环(ICL1–3)连接。配体诱导的MOR胞质面构象变化与其他GPCR中观察到的类似,其特征为TM5向内移动和TM6显著向外移动,这为开发MOR传感器提供了机制基础(图1a)。
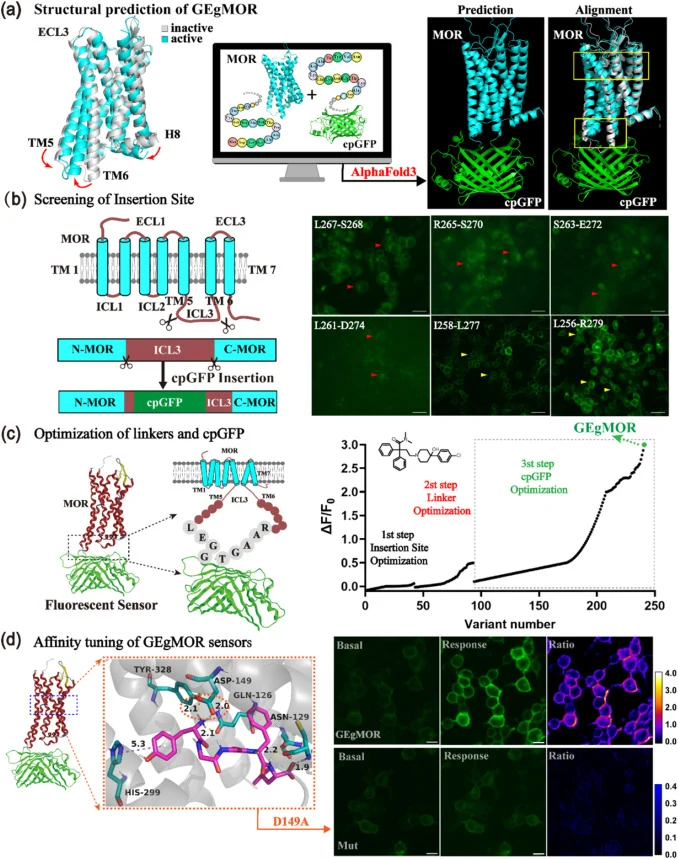
对于荧光输出模块,我们选择了构象敏感的环化排列绿色荧光蛋白(cpGFP),其对结构重排高度响应,广泛用于融合研究。受MOR激活机制启发,我们设计了配体诱导的TM5/TM6重排调控cpGFP荧光的传感器。我们假设阿片类配体结合诱导MOR构象变化,使cpGFP重新定向并触发发色团去质子化,从而产生可测量的荧光强度变化。
我们首先鉴定了MOR的ICL3内合适的插入位点。利用AlphaFold3对融合构象进行建模。在这些模型中,MOR(UniProt ID: P35372)和cpGFP被作为通过柔性连接肽连接的独立链处理,连接肽作为候选MOR插入位点与cpGFP之间的空间约束。这一计算预筛选步骤使我们能够排除在融合界面存在潜在结构冲突的构建体。在此计算预筛选步骤之后,实验表征鉴定了若干具有良好膜定位和中等荧光的嵌合体,这些嵌合体源自cpGFP插入ICL3区域中L256和R278残基两侧。相比之下,其余大多数嵌合体即使在高度曝光条件下也未能表现出正常荧光或显示较差的膜定位(图1b)。
【数据】MOR插入位点:ICL3区域L256和R278残基两侧;构建体数量:从数千个减少至239个;UniProt ID:P35372
基于有前景的构建体,我们通过系统改造cpGFP两侧N端和C端连接肽的组成和长度进一步优化传感器性能(表S1),旨在提高信噪比和动态范围。为确保我们的设计最小程度地干扰MOR的天然构象,我们计算了cpGFP插入模型与野生型MOR之间跨膜结构域的均方根偏差(ΔRMSD)。我们采用严格截断值(ΔRMSD <1.0 Å)来选择保持配体结合口袋完整性的设计,因为这种近乎相同的结构保守性对维持配体结合特性至关重要。AlphaFold3通过排除具有严重空间冲突的构建体缩小了结构搜索空间,使实验工作能够集中于优化连接肽动态和cpGFP灵敏度;荧光动态范围(ΔF/F₀)随后通过迭代实验优化确定。我们对cpGFP进行了系统性突变以改善其折叠、亮度和环境敏感性。经基于细胞的特异性验证后,鉴定了先导传感器GEgMOR(图1c)。
【数据】ΔRMSD截断值:<1.0 Å;筛选策略:AlphaFold3计算预筛选+迭代实验优化
为确认特异性,我们构建了对照变体(GEgMORmut),在推定配体结合口袋中携带D149A突变以破坏阿片类配体结合。虽然GEgMORmut显示出与GEgMOR相似的基线亮度和膜定位,但它对100 μM Leu-脑啡肽无响应(图1d),表明荧光响应特异性需要配体-受体结合。我们的理性、结构导向设计策略大幅提高了开发效率和精度。
【数据】突变位点:D149A;测试浓度:100 μM Leu-脑啡肽;对照变体:GEgMORmut
3.2 GEgMOR传感器的表征
由于MOR是膜受体,其生物传感器必须表达并定位到细胞膜才能保持功能(图2a)。为确保有效的膜靶向,GEgMOR被克隆到pDisplay载体中,该载体包含IgK前导序列和PDGFR跨膜结构域用于精确定位(表S2,图S1–S4)。下游插入了IRES-mCherry cassette作为校准用膜标记(图2b)。
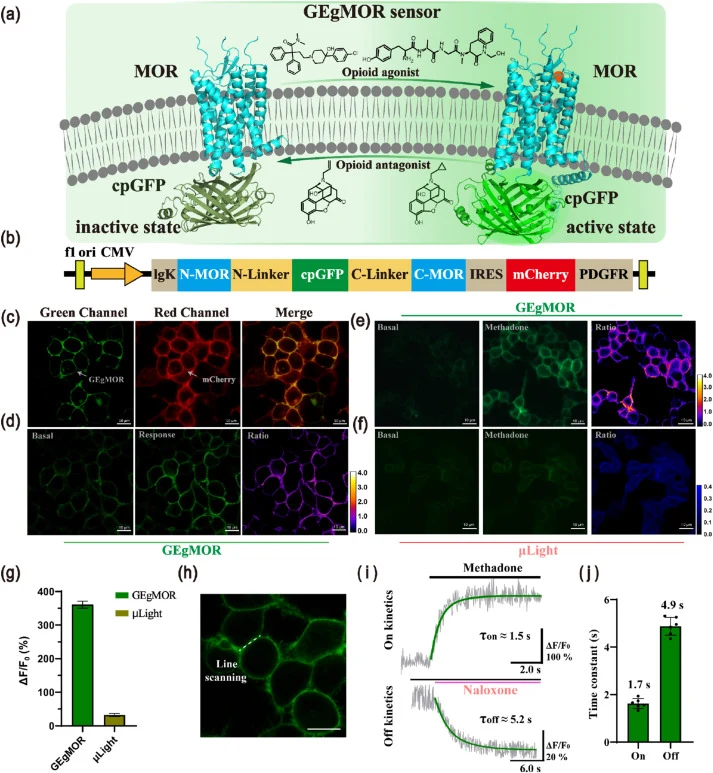
GEgMOR在HEK293T细胞中成功表达,显示出优异的膜定位,胞质荧光极少(图2c和S5)。在无配体情况下,其表现出微弱的基线荧光,被内源性阿片类配体Leu-脑啡肽显著增强(图2d)。为平行评估我们的GEgMOR传感器,我们构建了最先进的μLight传感器作为阳性对照。用100 μM美沙酮处理后,GEgMOR表现出强劲的荧光响应,ΔF/F₀约为361.9%(图2e–j)。相比之下,在相同刺激条件下,μLight传感器仅产生约32.18%的适度响应(图2f–g),直接证明了GEgMOR优越的信号幅度。
【数据】细胞系:HEK293T;激动剂:100 μM美沙酮;GEgMOR ΔF/F₀:~361.9%;μLight ΔF/F₀:~32.18%;倍数优势:约11.2倍
关于传感器的动力学特性,τon和τoff值分别约为1.5 s和4.9 s,通过在培养的HEK293T细胞中施加100 μM美沙酮测量结合速率τon,随后加入MOR拮抗剂纳洛酮测量解离速率τoff(图2h–j)。
【数据】τon:~1.5 s;τoff:~4.9 s;激动剂:100 μM美沙酮;拮抗剂:纳洛酮;细胞:HEK293T
为验证光物理特性,我们研究了GEgMOR传感器在HEK293T细胞中的荧光激发和发射光谱,重点关注Leu-脑啡肽刺激前后的光谱变化。传感器在~500 nm处显示出明显的激发峰,在520 nm处有明确的发射峰,与cpGFP基生物传感器的光谱特征一致。经Leu-脑啡肽处理后,GEgMOR传感器荧光强度显著增加(图3a)。
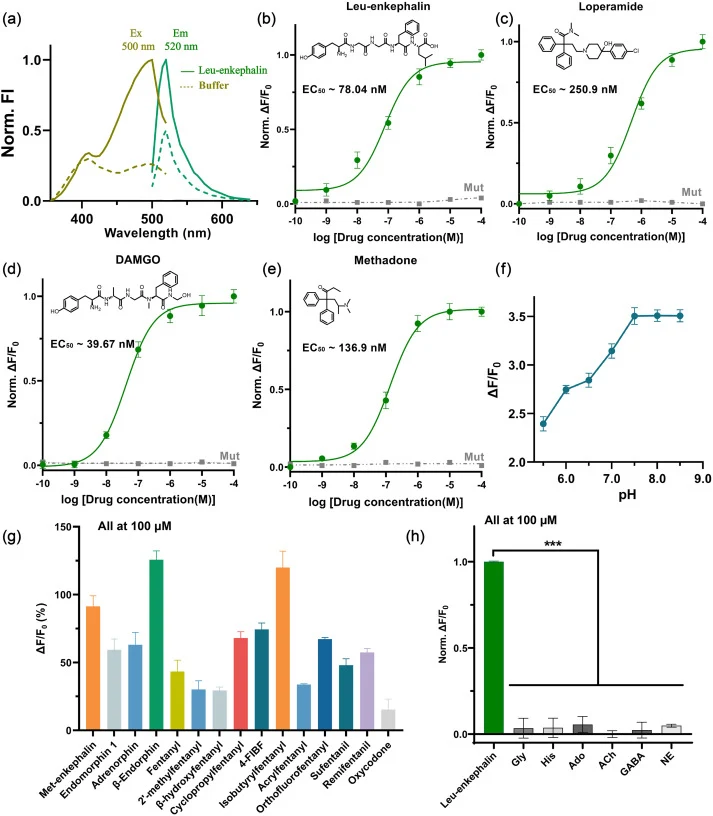
接下来,我们测量了GEgMOR传感器对不同类型MOR激动剂的荧光响应,包括内源性肽(Leu-脑啡肽)、中枢神经系统激动剂(美沙酮和DAMGO)和外周激动剂(洛哌丁胺)。荧光强度变化使用光学传感器研究的标准公式计算:ΔF/F₀ = (F−F₀)/F₀,其中F表示配体结合后细胞的背景扣除荧光强度,F₀表示配体加入前细胞的背景扣除基线荧光强度。当暴露于不同浓度的Leu-脑啡肽时,生物传感器的绿色荧光呈现逐渐的浓度依赖性增加。在低至1 nM的浓度下即可检测到荧光响应,最大ΔF/F₀高达151.97%,半数有效浓度(EC50)约为78.04 nM(图3b和S6)。用MOR激动剂DAMGO、美沙酮和洛哌丁胺刺激后也观察到类似的剂量依赖性荧光增强,而在突变体GEgMORmut中未检测到可比的剂量依赖性荧光响应(图3b–e)。
【数据】Leu-脑啡肽:最低检测浓度1 nM,最大ΔF/F₀=151.97%,EC50≈78.04 nM;DAMGO:最大ΔF/F₀≈248.6%,EC50≈39.67 nM;美沙酮:最大ΔF/F₀≈361.92%,EC50≈136.9 nM;洛哌丁胺:最大ΔF/F₀≈472.8%,EC50≈250.9 nM
具体而言,DAMGO诱导最大ΔF/F₀约为248.6%,EC50约为39.67 nM;美沙酮产生最大ΔF/F₀约为361.92%,EC50约为136.9 nM;洛哌丁胺导致最大ΔF/F₀约为472.8%,EC50约为250.9 nM(图3c–e和S6)。
鉴于生理微环境中固有的细微pH波动,我们进一步评估了GEgMOR的pH适应性。我们测量了GEgMOR在5.5至8.5 pH范围内的ΔF/F₀,覆盖了哺乳动物细胞环境的典型pH区间。如图3f所示,在100 μM美沙酮刺激下,GEgMOR的ΔF/F₀随pH升高逐渐增加,并保持稳定的高...
【数据】pH范围:5.5–8.5;刺激条件:100 μM美沙酮;原文此处数据截断
讨论与解读
本研究通过整合AlphaFold3计算预测与迭代实验优化的结构导向策略开发了GEgMOR生物传感器。在该工作流程中,AlphaFold3充当高效的结构预筛选工具。凭借其在蛋白质骨架组装和四级结构预测方面的卓越能力,它指导分子支架工程并快速过滤掉在融合界面存在严重空间冲突或折叠缺陷的候选构建体。这大幅压缩了巨大的组合搜索空间至可管理的规模,解决了传统试错筛选的主要瓶颈。
然而,AlphaFold3无法重现发色团成熟所需的自催化反应,也无法预测荧光亮度或整体光学性能——这是当前蛋白质结构预测算法的共同局限。因此,所有由该计算流程产生的传感器候选物均经过了严格的基于细胞的功能验证。高性能GEgMOR的成功工程化证明了AI辅助理性预筛选与系统实验优化相结合的巨大价值。这种协同策略大幅简化了生物传感器设计流程并显著提高了工程效率。所得到的GEgMOR生物传感器在活细胞成像中表现出色...
编译者解读
该研究的核心价值在于将AI结构预测引入GPCR生物传感器开发流程,把传统"大海捞针"式的突变体筛选从数千个压缩到239个。方法选择上,AlphaFold3负责空间预筛选、实验负责功能验证的分工合理且高效。但需注意,AI无法预测荧光性能这一局限意味着实验验证仍是不可省略的瓶颈环节。GEgMOR的472.8%动态范围和秒级动力学在同类工具中确实突出,但pH敏感性数据提示其在酸性微环境(如肿瘤或炎症组织)中的应用可能受限。整体而言,该工作为GPCR传感器开发提供了一条可推广的加速路径。
参考来源
期刊:Biosensors and Bioelectronics, 2026
DOI: 10.1016/j.bios.2026.118813
DOI: 10.1016/j.bios.2026.118813