来源:Integrative transcriptome network analysis identifies SsMYB1 as a dual R2R3-MYB candidate activator of sclareol and flavonoid biosynthesis in Salvia sclarea(Plant Physiology and Biochemistry)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
鼠尾草(Salvia sclarea)中积累的香紫苏醇(sclareol)是降龙涎香醚的关键天然前体,兼具抗菌、抗炎、抗肿瘤与神经保护活性。尽管其生物合成酶已获功能鉴定,转录调控机制长期不明。该研究首次利用多组织转录组与WGCNA构建香紫苏醇生物合成调控网络,锁定蓝色模块与花器官高度相关,从中筛选出28个MYB转录因子,并证实R2R3-MYB成员SsMYB1可直接结合SsLPPS与SsSS启动子并激活转录;同时SsMYB1还激活两个黄酮合成基因,提示其双重调控角色。亚细胞定位确认其核定位。
研究背景
香紫苏醇是一种半日花烷型二萜,来源于唇形科鼠尾草属植物Salvia sclarea。它既是珍贵香料龙涎香替代品降龙涎香醚的核心天然前体,也具有抗菌、抗炎、抗肿瘤和神经保护等多种药理活性,近年来在功能食品、化妆品和营养保健品开发中应用渐广。但植物中香紫苏醇天然含量仅占精油提取物的约0.3%–1.8%,工程微生物系统的生产效率也有待提升。因此,阐明香紫苏醇生物合成的分子调控机制对代谢工程与合成生物学应用意义重大。植物萜类经高度保守的代谢途径合成,香紫苏醇的合成主要定位于花器官,涉及两个阶段:质体中定位的MEP途径合成IPP及其异构体DMAPP,随后进入下游二萜骨架构建与修饰步骤。原文引言指出,尽管合成酶已明确,转录调控层面仍缺乏系统解析。
研究方法
2.1 植物材料
Salvia sclarea L.成熟种子采自中国新疆,保存于4 °C。种子未经表面消毒,直接播于装有湿润的泥炭土与蛭石1:1(v/v)混合基质的盆中,随后覆盖一薄层蛭石。种子约10天后萌发,所得幼苗分为两组:一组移栽至露天资源圃,另一组在植物生长室中受控培养,条件为25 °C、16小时光照/8小时黑暗光周期、光照强度100 μE·m⁻²·s⁻¹、相对湿度维持60–70%。分别采集3月龄S. sclarea的根、茎、叶、flowerD1、flowerD2和苞片样品,于-80 °C冻存用于后续实验,其中flowerD1和flowerD2分别代表花蕾和成熟花器官。
【数据】种子储存温度:4 °C;基质配比:泥炭土:蛭石=1:1(v/v);萌发时间:约10天;培养温度:25 °C;光周期:16 h光/8 h暗;光照强度:100 μE·m⁻²·s⁻¹;相对湿度:60–70%;取材植株月龄:3个月;冻存温度:-80 °C
2.2 系统发育分析
构建系统发育树时,使用28个SsMYB蛋白序列与20个已验证调控萜类生物合成的MYB转录因子。选择依据四条标准:1)纳入同属物种丹参(Salvia miltiorrhiza)的MYB作为功能保守性的直接进化参考;2)鉴于S. sclarea同样以富含萜类的精油著称,选取桂花(Osmanthus fragrans)、姜花(Hedychium coronarium)、香雪兰(Freesia hybrida)、薄荷(Mentha spicata)和番茄(Solanum lycopersicum)的MYB作为功能类似模型;3)同时纳入单子叶(铁皮石斛Dendrobium officinale、百合Lilium ‘Siberia’)与双子叶MYB,以评估进化保守性与谱系特异性分化;4)纳入木本多年生白桦(Betula platyphylla)的MYB与草本物种并列,以涵盖对比性生长习性。MYB成员的多序列比对用MAFFT v7.526完成,随后用trimAl v1.5.rev0进行比对修剪。基于修剪后的比对,用RAxML v8.2.11构建最大似然(ML)系统发育树,采用1,000次bootstrap重复。28个SsMYB及20个已验证调控萜类生物合成MYB的全部蛋白序列列于补充表1。
【数据】SsMYB数量:28个;参考MYB数量:20个;比对软件:MAFFT v7.526;修剪软件:trimAl v1.5.rev0;建树软件:RAxML v8.2.11;bootstrap重复:1,000次
2.3 SsMYBs表达模式分析
用FastPure Universal Plant Total RNA Isolation Kit(RC411,Vazyme)从S. sclarea六个组织(根、茎、叶、flowerD1、flowerD2和苞片)的18个样品中提取总RNA,每组织三个生物学重复。cDNA文库用总RNA富集的mRNA构建,并在Illumina NovaSeq 6000平台上测序。用FastQC对过滤后reads进行质量评估,随后比对参考基因组以评估比对随机性。用StringTie v2.1.4进行转录本组装,用RSEM对每个转录本或基因的read counts进行定量。read counts随后归一化为FPKM以获得表达水平。为分析SsMYB基因表达模式,将SsMYBs的FPKM值转换为log2(FPKM + 1)值,并用R v4.4.0中的pheatmap包可视化为聚类热图。
【数据】样品数:18个;组织数:6个;生物学重复:每组织3个;RNA提取试剂盒:RC411(Vazyme);测序平台:Illumina NovaSeq 6000;组装软件:StringTie v2.1.4;定量方法:FPKM;归一化:log2(FPKM + 1);R版本:v4.4.0
2.4 WGCNA
采用WGCNA构建香紫苏醇生物合成酶基因的调控网络。从转录组数据获得18个样品(上述六组织,每组织三个生物学重复)中所有比对到基因组的基因及新组装基因的表达矩阵,并在NovoMagic平台(https://magic-plus.novogene.com/#/tool/detail/WGCNAAnalysis)上用WGCNA包(v1.73)进行WGCNA分析。过滤掉样品间平均FPKM值低于1的基因,保留21,034个基因用于后续分析。用pickSoftThreshold函数确定满足无标度拓扑准则的最佳软阈值幂。随后计算邻接矩阵并转换为拓扑重叠矩阵(TOM)以量化网络连通性。基于TOM相异度进行平均连锁层次聚类,并用动态树切割算法识别模块,最小模块大小为30。筛选与香紫苏醇生物合成酶基因共表达的模块,并用Itak鉴定这些模块内的转录因子。用Cytoscape可视化香紫苏醇生物合成酶基因与转录因子的共表达网络。
【数据】样品数:18个;过滤阈值:平均FPKM < 1;保留基因数:21,034个;WGCNA包版本:v1.73;最小模块大小:30;平台:NovoMagic
2.5 亚细胞定位实验
用特异性引物和2 × Phanta UniFi Master Mix (Dye Plus)(P526,Vazyme)扩增SsMYB1的编码序列。用ClonExpress Ultra One Step Cloning Kit V2(C116,Vazyme)将扩增片段通过同源重组亚克隆至载体pCAMBIA2300-GFP的SacI/XbaI位点,生成重组质粒pCAMBIA2300::SsMYB1::GFP。重组质粒转化根癌农杆菌GV3101(pSoup-p19)。细胞在含50 μg/mL卡那霉素的LB培养基中过夜培养,收集后重悬于农杆菌侵染液(OD600 = 1.3)。所得悬浮液随后侵染4周龄本氏烟草(Nicotiana benthamiana)叶片。侵染后48–72 h在激光共聚焦显微镜(Olympus FV10-ASW,日本)下观察侵染叶组织的荧光。GFP和叶绿体自发荧光(Chl)在488 nm激发,DAPI在358 nm激发。质粒构建所用引物列于补充表2。
【数据】载体:pCAMBIA2300-GFP;酶切位点:SacI/XbaI;农杆菌菌株:GV3101(pSoup-p19);卡那霉素浓度:50 μg/mL;重悬OD600:1.3;烟草苗龄:4周;观察时间:侵染后48–72 h;GFP/Chl激发波长:488 nm;DAPI激发波长:358 nm
2.6 实时定量分析
从六个组织(根、茎、叶、flowerD1、flowerD2和苞片)提取的总RNA用HiScript II 1st Strand cDNA Synthesis Kit(Vazyme,#R212)反转录为cDNA。实时定量PCR(RT-qPCR)在LightCycler® 96仪器上用ChamQ Universal SYBR qPCR Master Mix(Vazyme,#Q711)进行。相对表达水平以GAPDH为内参归一化,并用2−ΔΔCt法计算。包含三个生物学重复和技术重复以确保可重复性。统计显著性用单因素方差分析(ANOVA)及Tukey检验进行多重比较确定,显著性阈值P < 0.05。所有引物列于补充表2。
【数据】反转录试剂盒:#R212(Vazyme);qPCR仪器:LightCycler® 96;qPCR试剂盒:#Q711(Vazyme);内参基因:GAPDH;计算方法:2−ΔΔCt;生物学重复:3个;技术重复:3个;统计方法:单因素ANOVA + Tukey检验;显著性阈值:P < 0.05
2.7 酵母单杂交(Y1H)实验
用基因特异性引物和2 × Phanta UniFi Master Mix (Dye Plus)(P526,Vazyme)扩增SsMYB1的编码序列。用ClonExpress Ultra One Step Cloning Kit V2(C116,Vazyme)将扩增片段通过同源重组亚克隆至载体pGADT7的EcoRI/BamHI位点,生成重组质粒pGADT7-SsMYB1。按相同方法,扩增含MYB结合顺式元件的SsLPPS和SsSS的2000 bp启动子区域,以及g13244和g15856的1000 bp启动子区域,并亚克隆至pHIS2载体的EcoRI和SacI位点之间。质粒pGADT7-GUS用作阴性对照。用醋酸锂法将pGADT7-SsMYB1分别与质粒pHIS2-SsLPPS启动子、pHIS2-SsSS启动子、pHIS2-g13244启动子、pHIS2-g15856启动子共转化Y187酵母感受态细胞。转化子在SD/-Trp/-Leu/-His培养基上于28 °C生长3–5天。为评估转录因子与启动子间的互作,阳性菌落随后在补充适宜浓度3-氨基-1,2,4-三唑(3-AT)的SD/-Trp/-Leu/-His培养基上于28 °C继续培养。
【数据】载体:pGADT7、pHIS2;酶切位点:EcoRI/BamHI(pGADT7)、EcoRI/SacI(pHIS2);启动子长度:SsLPPS/SsSS为2000 bp,g13244/g15856为1000 bp;阴性对照:pGADT7-GUS;酵母菌株:Y187;转化方法:醋酸锂法;培养温度:28 °C;培养时间:3–5天;筛选培养基:SD/-Trp/-Leu/-His;抑制剂:3-AT
研究结果
3.1 香紫苏醇生物合成关键模块鉴定与推定转录调控网络构建
为鉴定与香紫苏醇生物合成相关的关键基因模块,基于S. sclarea六个组织18个样品的转录组数据进行WGCNA(补充图1)。根据基因表达模式相似性构建层次聚类树,对所得树进行动态树切割,最终产生22个独立共表达模块,每个赋予不同颜色(图1A)。其中,turquoise模块基因数最多(4,201个),darkgreen模块最少(35个)(图1A)。将所得基因模块与组织进行相关分析,鉴定出blue、yellow和tan模块分别与flowerD1、flowerD2和苞片特异性相关(r > 0.90)(图1B)。香紫苏醇生物合成酶基因SsLPPS、SsSS和SsHDS分布于blue模块;SsDXR和SsMCT位于lightcyan模块;SsDXS2、SsGGPPS、SsHDR和SsCMK分别分布于midnightblue、salmon、red和lightyellow模块。进一步对这六个模块内与九个香紫苏醇生物合成酶基因共表达的基因进行转录因子鉴定,并构建基因互作网络以探索参与调控香紫苏醇生物合成的转录因子。结果显示,共有来自35个家族的145个转录因子与七个香紫苏醇生物合成酶基因共表达,包括28个MYB、13个MADS-box、10个bHLH、7个bZIP和6个WRKY转录因子(图1C)。SsLPPS作为网络节点拥有最多的候选转录因子(140个),其次是SsSS,与124个候选转录因子共表达(图1C)。这些发现表明blue模块是参与香紫苏醇生物合成的关键模块,可能受包括MYB、MADS-box和bHLH家族成员在内的大量转录因子调控。
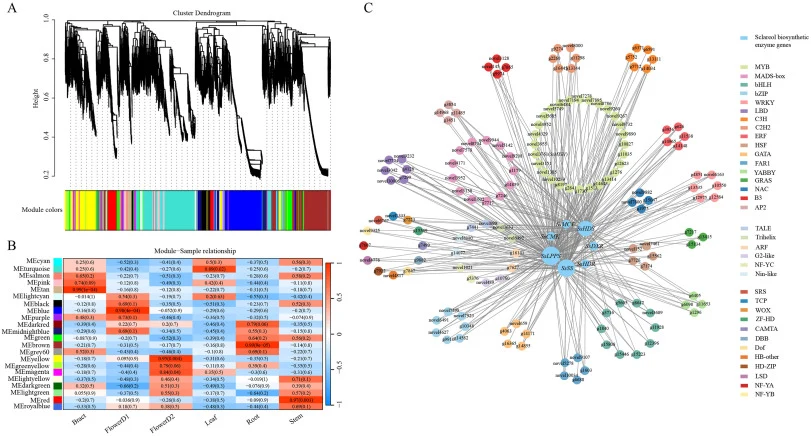
【数据】共表达模块数:22个;turquoise模块基因数:4,201个;darkgreen模块基因数:35个;blue/yellow/tan模块与组织相关系数:r > 0.90;共表达转录因子总数:145个;转录因子家族数:35个;MYB数量:28个;MADS-box数量:13个;bHLH数量:10个;bZIP数量:7个;WRKY数量:6个;SsLPPS关联候选转录因子:140个;SsSS关联候选转录因子:124个
3.2 香紫苏醇生物合成基因与MYB转录因子表达分析揭示关键候选调控因子
为验证S. sclarea中香紫苏醇的组织积累模式,用GC-MS测定花(flowerD1与flowerD2混合物)、苞片、茎和叶中的香紫苏醇含量。结果显示香紫苏醇主要积累于花中(2544 mg/kg鲜重),其次为苞片,茎和叶中仅检测到痕量(补充图2)。结合blue模块与花器官高度相关的发现,这些结果进一步支持该模块内基因在香紫苏醇积累中的潜在关键作用。MYB转录因子是blue模块中调控香紫苏醇生物合成的候选转录因子中最丰富的家族,因此被选作进一步研究。基于转录组数据,对香紫苏醇生物合成酶基因和28个MYB转录因子进行组织特异性基因表达模式热图分析。结果表明MEP途径酶基因表达模式普遍存在,在所有六个检测组织中均观察到相对较高的表达水平(图2A)。相反,直接参与香紫苏醇生物合成的SsSS和SsLPPS表达水平在flowerD1中最高,其次为flowerD2和苞片,而在叶和根组织中几乎检测不到表达(图2A)。28个SsMYBs根据其组织特异性表达谱的层次聚类大致分为四种不同表达模式(图2B,补充表3)。第1组中,基因g2841、g1513和g12623在所有组织中均表现出高表达水平(图2B)。第2组包含九个基因,包括novel7278和novel5749,几乎仅在flowerD1中表达(图2B)。第3组中,多个基因如g8197、novel9267和SsMYB1(novel3761)在flowerD1、flowerD2和苞片中高表达,在其他组织中表达较低,显示出与香紫苏醇生物合成酶基因最相似的组织表达模式(图2B)。第4组中,novel3151、novel6484和novel8786主要在flowerD1和flowerD2中高表达(图2B)。此外,通过RT-qPCR验证了属于blue模块的SsHDS、SsSS和SsLPPS以及第3组中六个SsMYBs的组织表达模式。其中,novel9267、novel3955、novel9260和SsMYB1在flowerD1中的表达水平分别是茎中的20.25、5.08、79.83和27.26倍,且它们显示出与SsSS和SsLPPS相似的组织表达模式,提示它们可能是调控香紫苏醇生物合成酶表达的关键候选MYB转录因子(图2C)。
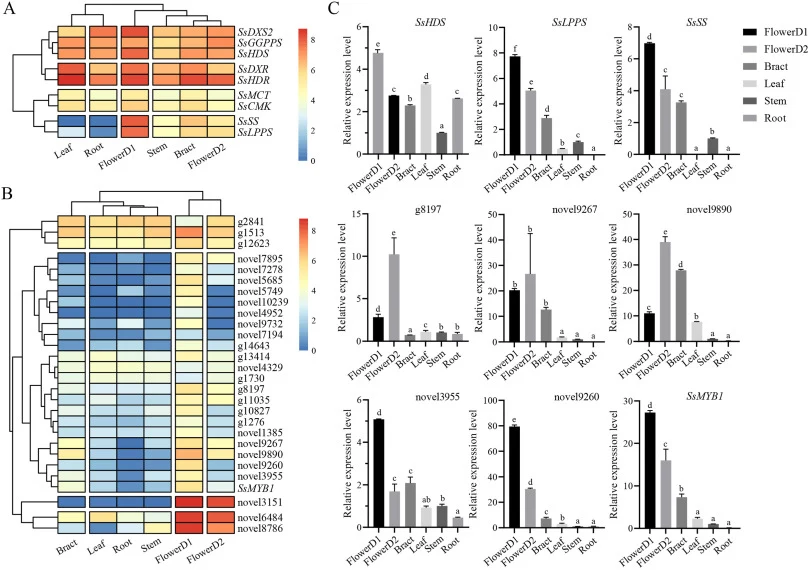
【数据】香紫苏醇花中含量:2544 mg/kg鲜重;茎和叶含量:痕量;MYB转录因子数:28个;表达模式分组:4组;novel9267在flowerD1/茎表达倍数:20.25倍;novel3955:5.08倍;novel9260:79.83倍;SsMYB1:27.26倍
3.3 靶向香紫苏醇生物合成基因的候选MYB转录因子系统发育与保守结构域分析
为探索可能调控S. sclarea香紫苏醇生物合成酶基因的28个候选MYB转录因子的功能,用这28个SsMYBs与先前验证参与萜类生物合成的MYB转录因子一起构建最大似然系统发育树。结果显示MYBs分为两个主要分支(图3A)。分支1包含12个SsMYB成员,其中八个为MYB相关类型成员,而novel7194、g1513、g8197和g2841被归类为R2R3-MYB成员(图3A)。分支2中所有SsMYBs均为R2R3-MYB成员,并与多种与萜类生物合成相关的MYB转录因子表现出密切的系统发育关系(图3A)。具体而言,novel9267和novel9260分别与铁皮石斛的DoMYB29和DoMYB31聚类于同一分支(图3A)。此外,novel3955和novel5749与白桦的BpMYB21密切相关,而SsMYB1与丹参的SmMYB97相似性最高(图3A)。对与香紫苏醇生物合成酶基因相关的四个候选MYB转录因子序列进行保守结构域分析,揭示MYB结构域的R2和R3重复呈现不同的氨基酸模式(图3B);尽管如此,这些重复在所有分析序列及SmMYB97中高度保守(图3B)。这些结果表明四个候选SsMYBs是结构保守的R2R3-MYB转录因子,与已知萜类生物合成调控因子密切相关,进一步支持它们在调控S. sclarea香紫苏醇生物合成中的潜在作用。
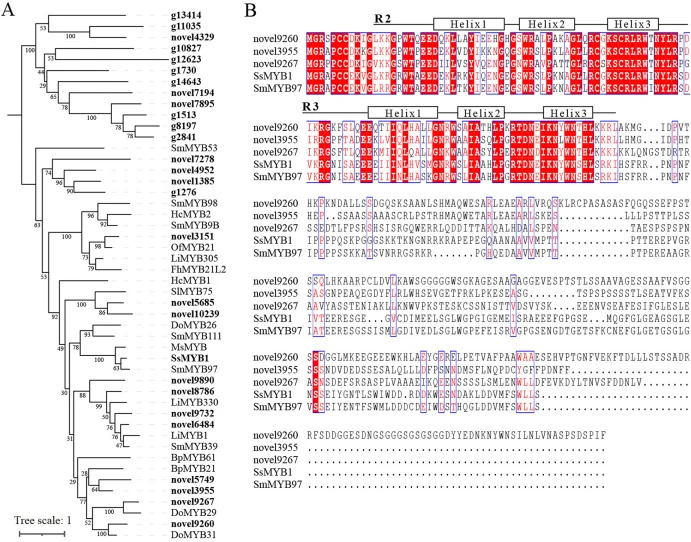
【数据】系统发育分支数:2个;分支1 SsMYB成员数:12个;分支1 MYB相关类型:8个;分支1 R2R3-MYB类型:4个(novel7194、g1513、g8197、g2841);分支2全部为R2R3-MYB;同源聚类:novel9267-DoMYB29、novel9260-DoMYB31、novel3955/novel5749-BpMYB21、SsMYB1-SmMYB97
3.4 SsMYB1协同靶向香紫苏醇生物合成酶基因
为进一步验证候选SsMYB转录因子是否参与调控香紫苏醇生物合成,我们研究了随机选取的候选因子novel9267和SsMYB1是否直接结合blue模块内香紫苏醇生物合成基因SsHDS、SsLPPS和SsSS的启动子。生物信息学分析揭示SsHDS、SsLPPS和SsSS的启动子区域含有三至七个MYB结合顺式作用元件(图4A)。然而,由于SsHDS启动子片段扩增失败,Y1H实验仅检测novel9267和SsMYB1与SsLPPS和SsSS启动子的结合。Y1H实验结果表明SsMYB1结合SsLPPS和SsSS两者的启动子,从而在酵母中激活报告基因表达(图4B,补充图3)。相反,novel9267与这两个香紫苏醇生物合成酶基因的启动子无显著互作(图4B)。双荧光素酶报告实验进一步确认了SsMYB1对SsLPPS和SsSS启动子的转录激活作用。
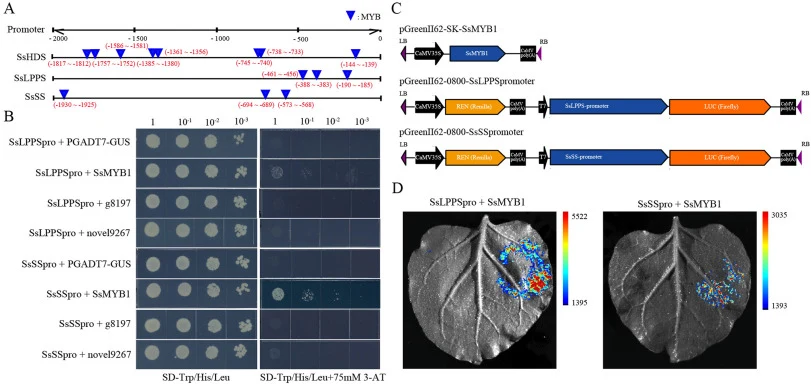
【数据】MYB结合顺式元件数:SsHDS/SsLPPS/SsSS启动子含3–7个;SsHDS启动子扩增:失败;Y1H结果:SsMYB1结合SsLPPS和SsSS启动子并激活报告基因;novel9267:与两启动子无显著互作;双荧光素酶实验:确认SsMYB1对SsLPPS和SsSS启动子的转录激活
讨论与解读
香紫苏醇是芳香药用植物S. sclarea的重要天然产物,在香料工业和医药领域应用前景广阔。尽管关键生物合成酶已获功能表征,调控香紫苏醇生物合成的转录机制长期不明。该研究基于多组织转录组数据,首次用WGCNA系统解析了S. sclarea香紫苏醇生物合成的潜在转录调控网络,成功鉴定出一个R2R3-MYB转录因子SsMYB1,它直接调控香紫苏醇生物合成酶基因SsLPPS和SsSS的表达。有趣的是,SsMYB1还结合并激活两个推定黄酮生物合成酶基因g13244(推定SsCHI)和g15856(推定SsFLS)的启动子,提示SsMYB1可能作为参与萜类与黄酮生物合成的双重调控因子(图6)。这些发现加深了对香紫苏醇生物合成调控机制的理解,为阐明其转录调控和通过分子育种改良S. sclarea品质提供了宝贵遗传资源。研究中用WGCNA构建了22个共表达模块,其中blue模块显著富集参与香紫苏醇生物合成的关键酶基因,包括SsLPPS等。
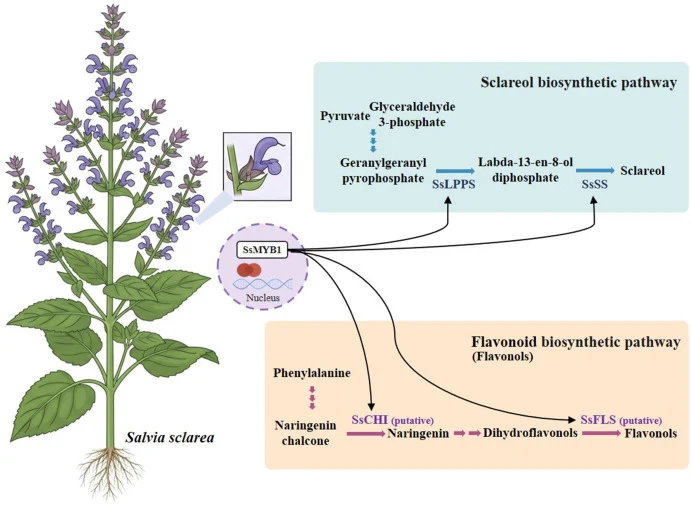
编译者解读:该研究以WGCNA为切入点,从多组织转录组中无偏筛选调控模块,再以Y1H与双荧光素酶实验闭环验证,路径清晰、证据链完整。SsMYB1同时靶向二萜与黄酮途径,提示植物次生代谢调控存在跨途径枢纽节点,这对合成生物学中"一因多效"的底盘改造具有参考价值。局限在于仅验证了候选因子中的SsMYB1,其余27个MYB及MADS-box、bHLH等家族成员功能未展开;SsHDS启动子扩增失败也留下缺口。后续可通过CRISPR敲除或过表达株系在植物体内确认SsMYB1的净效应。
参考来源
期刊:Plant Physiology and Biochemistry, 2026
DOI: 10.1016/j.plaphy.2026.111768
DOI: 10.1016/j.plaphy.2026.111768