来源:The razABCD regulatory island links azalomycin F biosynthesis in Streptomyces iranensis to orsellinic acid production in the fungus Aspergillus nidulans(Journal of Biological Chemistry)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
伊朗链霉菌(Streptomyces iranensis)能诱导构巢曲霉(Aspergillus nidulans)产生地曲酸及其衍生物,其信号分子为精氨酮类化合物阿扎霉素F。然而,阿扎霉素F生物合成基因簇(BGC)的调控机制此前仅知需要bldA参与。本研究发现了位于BGC约120 kbp之外的调控岛razABCD,编码四个LuxR家族转录调控因子,通过基因缺失、转录组分析、EMSA和表面等离子共振等手段,阐明了RazA/RazB→RazD→azl-BGC的调控级联,并定义了RazD的DNA结合基序。
研究背景
天然产物是许多微生物产生的低分子量化合物,部分已应用于医药和工业领域,如头孢菌素C、青霉素G、环孢素A和灰黄霉素等。这些化合物的生物合成基因通常成簇分布于生物合成基因簇(BGC)中。利用SMURF或AntiSMASH等程序分析测序的真菌基因组,可鉴定出大量BGC。以模式丝状真菌构巢曲霉为例,其基因组至少含有66个推定BGC,但大多数尚未与具体天然产物对应,原因在于许多BGC在标准实验室条件下处于沉默或低表达状态。
这些沉默BGC仅在特定环境刺激存在时才被激活,例如微生物伙伴的共存。最早发现的例子之一是构巢曲霉与土壤细菌Streptomyces rapamycinicus或其近缘种S. iranensis共培养时,隐性地曲酸(ors)BGC被激活。近期研究鉴定出一类称为精氨酮(arginoketide)的聚酮化合物,它们作为细菌信号诱导真菌沉默ors BGC的表达。阿扎霉素F被鉴定为激活多种真菌中沉默BGC的细菌信号分子。然而,除bldA之外,学界对阿扎霉素F BGC的调控机制知之甚少。
研究方法
微生物培养
用于克隆的大肠杆菌菌株在37 °C或30 °C、200 rpm条件下于LB培养基(Luria/Miller)(Carl Roth GmbH, Karlsruhe, Germany)中培养。必要时在培养基中添加相应抗生素以维持质粒(表S3和S4)。
【数据】菌株:大肠杆菌;培养基:LB(Luria/Miller);温度:37 °C或30 °C;转速:200 rpm;抗生素:必要时添加(表S3、S4)
对于阿扎霉素F生产,将S. iranensis菌株(2 × 10⁷个孢子)接种于20 ml胰蛋白酶大豆肉汤(CASO-bouillon, Carl Roth GmbH, Karlsruhe, Germany)中,使用带硅胶海绵盖的挡板锥形瓶,在28 °C、180 rpm条件下培养4天以制备种子培养物。当需要维持质粒时,在突变体培养基中加入相应抗生素(表S5)。随后,用2%的种子培养物接种新培养液(20 ml胰蛋白酶大豆肉汤,挡板锥形瓶),在28 °C、180 rpm的轨道摇床上培养4天,不加任何抗生素,然后取上清用于HPLC-MS检测。
【数据】接种量:2 × 10⁷个孢子;培养基:20 ml胰蛋白酶大豆肉汤;温度:28 °C;转速:180 rpm;种子培养时间:4天;生产培养时间:4天;种子接种比例:2%
为生成实验用孢子,将200–300 μl浓密培养物划线接种于燕麦琼脂平板,在28 °C培养14天后收获孢子。
【数据】孢子生成培养基:燕麦琼脂平板;接种量:200–300 μl;温度:28 °C;时间:14天
S. iranensis缺失质粒的构建
S. iranensis中的基因缺失通过同源重组和温度敏感型载体pKOSi完成。为构建缺失质粒,使用所列引物(表S6)PCR扩增目标基因及其上下游1–2 kb区域。通过带有附加限制性酶切位点的引物将基因及其侧翼区域连接入载体pKOSi,所得质粒用于转化Escherichia coli DH10β。下一步,将新构建的含有待缺失基因及其侧翼区域的pKOSi质粒转化E. coli BW25113 pIJ790,利用λ Red系统通过重组将待缺失基因替换为阿普拉霉素抗性盒aac(3)IV。重组时使用PCR扩增的DNA片段,该片段含有aac(3)IV基因和从pIJ790扩增的oriT,以及由特异性引物在末端生成的同源位点。所得质粒用于转化非甲基化E. coli菌株ET12567 pUZ8002,该菌株用于与S. iranensis进行接合转移。
【数据】载体:pKOSi(温度敏感型);侧翼同源臂长度:1–2 kb;抗性盒:aac(3)IV(阿普拉霉素);重组系统:λ Red;供体菌株:E. coli ET12567 pUZ8002(非甲基化)
缺失菌株互补质粒的构建
为构建互补质粒,使用寡核苷酸引物(表S6)PCR扩增相应基因razA、razB和razD。通过寡核苷酸编码的限制性酶切位点将基因连接入载体pIJ10257,所得质粒转化Escherichia coli DH10β,从中重新分离质粒并检查正确性。正确的质粒pIJ razA、pIJ np_razB和pIJ razD用于转化非甲基化E. coli菌株ET12567 pUZ8002,该菌株用于与S. iranensis进行接合转移。
【数据】载体:pIJ10257(整合型);基因:razA、razB、razD;供体菌株:E. coli ET12567 pUZ8002
与S. iranensis的属间接合转移
接合转移按Netzker等人所述方法进行,或按照Kieser等人方案的修改版进行。Kieser方案的修改包括:热激孢子在与接合转移前于28 °C孵育约6小时,以及使用含60 mM CaCl₂的MS琼脂平板进行接合转移,而非含MgCl₂的MS琼脂。
【数据】热激孢子孵育:28 °C、约6小时;接合转移培养基:MS琼脂 + 60 mM CaCl₂
阿扎霉素F的检测
为监测阿扎霉素F产量,将S. iranensis野生型或突变株按上述方法在100 ml TSB培养基中培养5天。随后,培养物用总共100 ml乙酸乙酯萃取两次,并在减压条件下浓缩。用于HPLC-MS分析时,将干燥提取物溶于1 ml甲醇,取1 μl加载到LUNAR Omega PS C18 LC柱(粒径1.6 μm,Phenomenex, Aschaffenburg, Germany)上,该柱与配备PDA和Orbitrap Exploris 120质谱仪的Vanquish Flex UHPLC系统(Thermo Fisher Scientific, Dreieich, Germany)联用。溶剂系统为水/乙腈,均含0.1%(v/v)甲酸,流速0.5 ml/min(13分钟程序:初始5%(v/v)乙腈保持0.5分钟,8分钟内增至70%(v/v),在70%(v/v)保持2分钟,2分钟内恢复至5%(v/v))。
【数据】培养体积:100 ml TSB;培养时间:5天;萃取溶剂:100 ml乙酸乙酯(萃取两次);复溶体积:1 ml甲醇;进样量:1 μl;色谱柱:LUNAR Omega PS C18(1.6 μm);流速:0.5 ml/min;流动相:水/乙腈 + 0.1%甲酸;梯度:5%→70%乙腈/8 min,70%保持2 min,2 min回到5%
转录组分析
使用RNeasy Protect Bacteria Mini Kit(Qiagen GmbH, Hilden, Germany)按制造商说明提取S. iranensis野生型和缺失突变体的总RNA。样品在TSB培养基中按上述方法培养48小时后采集。使用ZR BashingBead Lysis Tubes 0.1 & 0.5 mm(Zymo Research Europe GmbH, Freiburg, Germany)和FastPrep-24 5G(MP Biomedicals Germany GmbH, Eschwege, Germany)以6.0 m/sec珠磨60秒破碎细菌细胞。使用RNeasy Protect Bacteria Mini Kit纯化RNA后,使用Baseline-ZERO DNase(Lucigen Corp., Middleton, UK)进行DNase处理,随后使用RNeasy MinElute Cleanup Kit(Qiagen GmbH, Hilden, Germany)进行纯化。每个菌株分析三个重复的总RNA。文库构建和双端150 bp测序由Novogene GmbH(Planegg, Germany)完成。
【数据】RNA提取试剂盒:RNeasy Protect Bacteria Mini Kit;取样时间:培养48小时;珠磨速度:6.0 m/sec;珠磨时间:60秒;DNase:Baseline-ZERO;测序方式:双端150 bp;重复数:3个生物学重复
RNA-seq数据处理
原始reads的预处理(包括质量控制和基因丰度估计)使用R(版本3.5.1)中的GEO2RNaseq流程(v0.9.12)完成。质量分析在修剪前后使用FastQC(v0.11.8)进行。Read质量修剪使用Trimmomatic(v0.36)完成。使用SortMeRNA(v2.1)和包含SortMeRNA所有rRNA数据库的单一rRNA数据库对reads进行rRNA过滤。参考注释通过从相应注释文件中提取和合并外显子特征创建。使用HiSat2(v2.1.0,双端模式)将reads比对到S. iranensis的NCBI参考基因组(组装GCA_000938975.1)。基因丰度估计使用featureCounts(v1.28.0)在双端模式下以默认参数完成。最后使用MultiQC版本1.7汇总和评估FastQC、Trimmomatic、HiSat、featureCounts和SAMtools的输出质量。提取了无中位数比值归一化和有MRN的基因丰度计数矩阵。差异基因表达使用GEO2RNaseq分析。使用四种统计工具(DESeq v1.30.0、DESeq2 v1.18.1、limma voom v3.34.6和edgeR v3.20.7)进行成对检验,报告p值和多重检验校正后的p值(使用假发现率方法q = FDR(p))。只有当所有四种工具均报告显著时(q ≤ 0.05且|log2(MRN)| ≥ 1),基因表达差异才被认为显著。
【数据】比对工具:HiSat2 v2.1.0;丰度估计:featureCounts v1.28.0;统计工具:DESeq、DESeq2、limma voom、edgeR;显著性阈值:q ≤ 0.05,|log2(MRN)| ≥ 1;参考基因组:GCA_000938975.1
重组RazD_HTH_的生产与纯化
将编码S. iranensis RazD C端螺旋-转角-螺旋(HTH)结构域(残基102–193,GenBank CDR03258.1)的密码子优化合成基因(Thermo Fisher Scientific GeneArt, Regensburg, Germany)克隆到修饰的pET28a载体(Novagen Merck, Darmstadt, Germany)的BamHI/HindIII位点之间。所得表达载体编码RazD_HTH_与大肠杆菌麦芽糖结合蛋白(MBP,缺少前导氨基酸序列)的融合蛋白,通过含六聚组氨酸标签和烟草蚀纹病毒(TEV)识别位点(ENLYFQ↓G)的多肽连接子连接。将构建的质粒转化E. coli BL21(DE3)细胞(New England Biolabs, Frankfurt, Germany)。细胞在25 °C、1 L自动诱导培养基(Overnight Express Instant TB Medium; Novagen Merck, Darmstadt, Germany)中培养24小时,补充50 μg/mL卡那霉素,通过离心(10,500 × g)收获并储存于−80 °C。冻存细胞(21 g)重悬于200 mL缓冲液A(20 mM Tris/HCl,200 mM NaCl,1 mM EDTA,pH 7.5)中,含1 mM AEBSF,使用高压设备在1000 bar下破碎。
【数据】RazD HTH结构域残基范围:102–193;表达载体:修饰pET28a;融合标签:MBP + His₆ + TEV位点;表达菌株:E. coli BL21(DE3);培养基:1 L自动诱导培养基;卡那霉素浓度:50 μg/mL;诱导温度:25 °C;诱导时间:24小时;离心力:10,500 × g;冻存温度:−80 °C;细胞湿重:21 g;重悬缓冲液:200 mL缓冲液A(20 mM Tris/HCl,200 mM NaCl,1 mM EDTA,pH 7.5);蛋白酶抑制剂:1 mM AEBSF;破碎压力:1000 bar
研究结果
调控岛razABCD的鉴定
为鉴定阿扎霉素F生物合成的调控因子,我们从先前观察到的现象出发:S. iranensis ΔbldA缺失突变体无法诱导真菌ors BGC。bldA基因编码大多数链霉菌中唯一能有效将TTA密码子翻译为亮氨酸的tRNA。因此,可以设想:要么含有TTA密码子的基因参与阿扎霉素F BGC的调控,要么阿扎霉素F生物合成基因本身编码TTA密码子。由于S. iranensis ΔbldA缺失突变体的转录组分析显示阿扎霉素F BGC的转录急剧下降,这一发现表明该BGC的表达依赖于一个含有TTA编码亮氨酸的转录因子。因此,我们筛选了S. iranensis基因组中满足三个标准的基因:(i)含有至少一个TTA密码子;(ii)编码推定转录调控因子;(iii)在Streptomyces rapamycinicus DSM49375和Streptomyces violaceusniger TU4113中均有同源物,这两个菌株也是已知的阿扎霉素F产生菌。通过这种方式,我们鉴定出11个满足这些标准的基因(表1)。通过同源重组用阿普拉霉素抗性盒替换这些基因,构建了缺失菌株。通过PCR验证缺失,并通过HPLC-MS分析检测所得敲除突变体产生阿扎霉素F的能力。除SIRAN_RS15610和SIRAN_RS36220外,其余9个基因均成功构建了缺失菌株,后者可能因缺失致死而未能获得。在所有测试的9个缺失菌株中,只有SIRAN_RS04790和SIRAN_RS04785(二者在染色体上相邻)的缺失菌株在HPLC-MS检测中培养上清中不再产生阿扎霉素F(图1)。
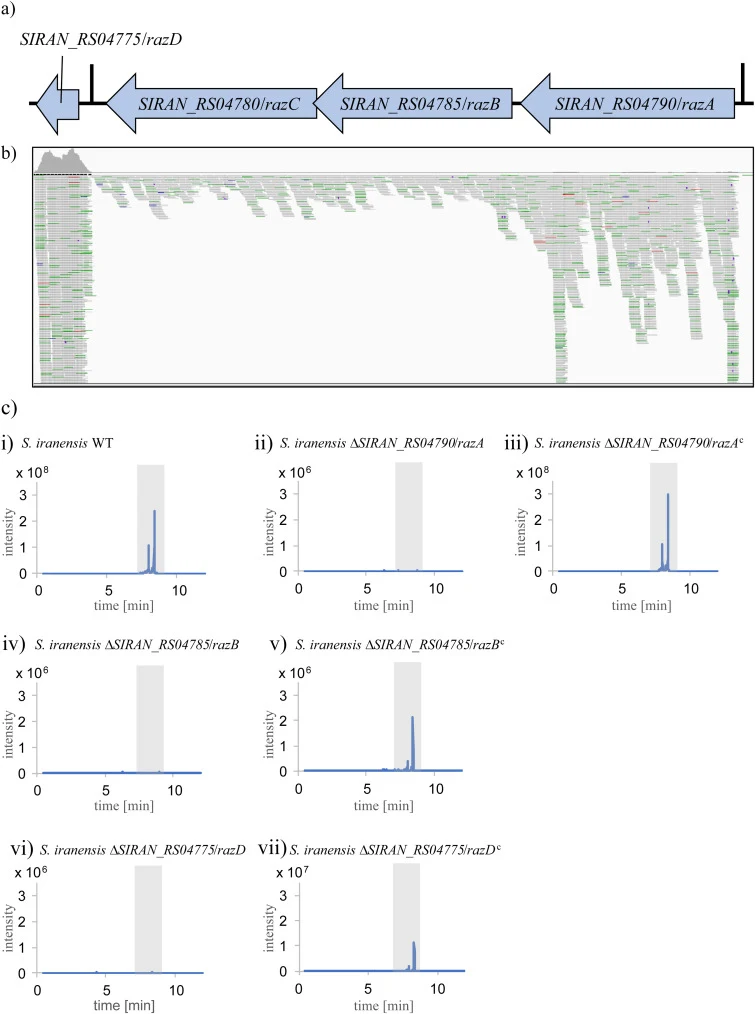
我们聚焦于基因SIRAN_RS04785和SIRAN_RS04790,它们编码推定的LuxR家族转录调控因子。SIRAN_RS04785翻译为918个氨基酸(aa)的蛋白质(NCBI注释NZ_LK022848.1)或902 aa(注释LK022848.1),而SIRAN_RS04790编码966 aa。这两个基因在染色体上相邻,但被一个短基因间区隔开,根据所用注释不同约为58或106 bp(图1)。这表明位于SIRAN_RS04790下游的SIRAN_RS04785由其自身启动子转录(图1)。此外,SIRAN_RS04785与SIRAN_RS04780重叠,后者编码另一个LuxR家族转录调控因子。因此,这些基因可能形成一个操纵子。第四个较小的LuxR家族转录调控因子(SIRAN_RS04775),228 aa,位于SIRAN_RS04785和SIRAN_RS04780下游(图1)。所鉴定的LuxR型调控因子的同源基因也成簇存在于其他产阿扎霉素F的链霉菌基因组中,如S. violaceusniger TÜ 4113和S. rapamycinicus SRMK07。比较SIRAN_RS04775的注释开放阅读框及其同源物S. violaceusniger的Strvi_5061和S. rapamycinicus的LJB45_00075,发现S. iranensis中存在不同的推定起始密码子,因此可能有不同的蛋白质长度。根据先前对SIRAN_RS04775的注释,S. iranensis的SIRAN1135 ORF(GenBank CDR03258.1)略短,推导蛋白质为193 aa,而S. violaceusniger和S. rapamycinicus中的两个同源物为202 aa。然而,在S. iranensis中,也可以设想存在编码202 aa长蛋白质的ORF,甚至220 aa的ORF,后者在第5位还含有TTA编码的亮氨酸。因此,我们构建了S. iranensis SIRAN_RS04775缺失菌株。与SIRAN_RS04785和SIRAN_RS04790的缺失类似,SIRAN_RS04775的缺失导致S. iranensis中阿扎霉素F产量丧失(图1)。为验证这三个基因均参与阿扎霉素F生物合成的调控,我们通过使用整合型质粒pIJ10257引入相应基因的完整拷贝来互补缺失菌株。所有互补缺失菌株的阿扎霉素F产量均恢复到不同程度(图1)。总体而言,这表明所有三个LuxR调控因子在阿扎霉素F生物合成调控中发挥重要作用。因此,我们将这些基因命名为阿扎霉素F生物合成调控因子razA(SIRAN_RS04790)、razB(SIRAN_RS04785)和razD(SIRAN_RS04775)(图1)。我们还将SIRAN_RS04780纳入并命名为razC,因为它很可能是产阿扎霉素F菌株中这一保守LuxR调控因子岛的一部分。然而,我们未能构建razC的缺失菌株。一种可能的解释是该基因缺失是致死的。
【数据】筛选标准:含TTA密码子 + 编码转录调控因子 + 在S. rapamycinicus和S. violaceusniger中有同源物;鉴定基因数:11个;成功缺失:9个(SIRAN_RS15610和SIRAN_RS36220未成功);RazA蛋白长度:966 aa;RazB蛋白长度:918 aa(NCBI)或902 aa;RazD蛋白长度:228 aa(注释)/ 202 aa或220 aa(替代ORF);RazD替代ORF第5位含TTA编码亮氨酸;基因间区:约58或106 bp;razABCD距BGC距离:约120 kbp
RazD控制阿扎霉素F BGC的表达
为鉴定三个LuxR调控因子中哪一个控制阿扎霉素F生物合成基因的表达,我们对ΔrazD、ΔrazB和ΔrazA进行了转录组分析,结果显示三个缺失菌株中所有阿扎霉素F核心生物合成基因的转录水平与野生型相比均强烈下降(图2)。
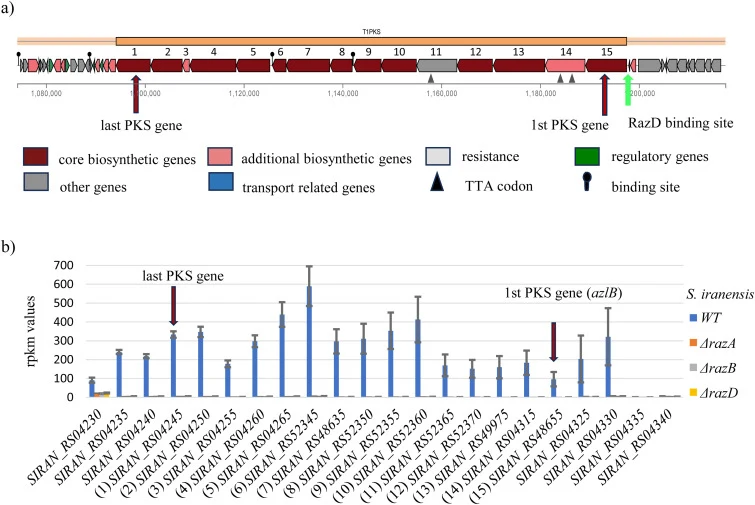
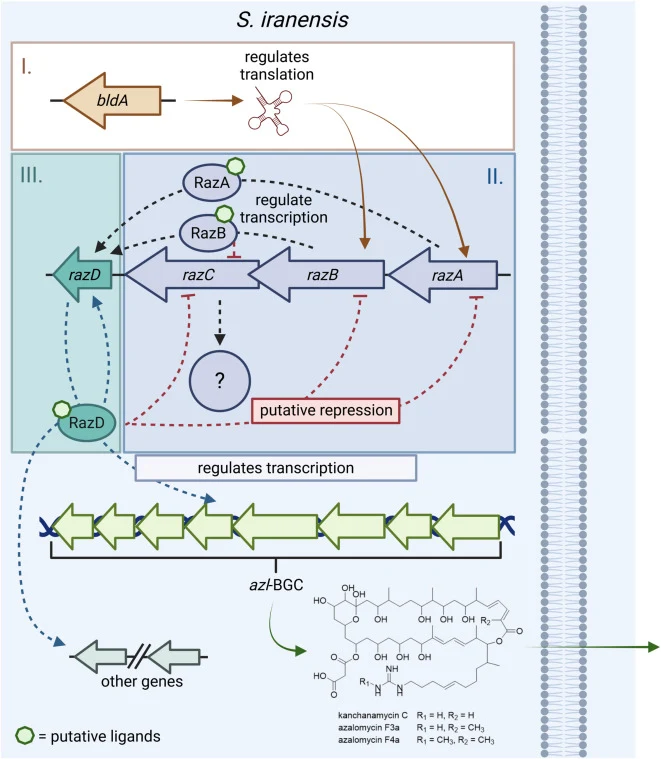
从S. iranensis野生型获得的RPKM值表明,razD的表达强于razC、razB或razA(图1b)。此外,使用Integrative Genomic Viewer软件将转录组reads比对到S. iranensis基因组显示,razD通过一个转录间隙与调控岛的其他三个基因分开(图1b)。这表明razD的调控独立于调控岛的其他基因。转录组分析获得的RPKM值表明razD在S. iranensis野生型中高表达。然而,在三个缺失菌株中几乎检测不到该基因的转录本。虽然这对ΔrazD突变体是预期的,但值得注意的是razA和razB的缺失也负面影响了razD的mRNA稳态水平(图3a)。然而,razA和razB的缺失对彼此的表达仅有微小影响,它们的表达水平也不受razD缺失的影响。因此,我们得出结论:这些转录因子之间存在层级关系,RazA和RazB均正向影响razD的转录。此外,我们推测RazA和RazB均不直接调控阿扎霉素F BGC的表达,尽管它们对其转录总体上是必需的。相反,RazD似乎位于调控级联的底部,因此被认为是azl BGC的直接调控因子。为证明这一假设,我们进行了交叉互补实验,将缺失菌株S. iranensis ΔrazA和ΔrazB用pIJ-razD互补,该整合型质粒含有受组成型ermE*启动子控制的razD。交叉互补后,我们在两个菌株中均检测到阿扎霉素F产量,而仅用空载体转化的对照菌株不产生任何阿扎霉素F(图3b,c,d,e)。这些结果表明RazD是阿扎霉素F生物合成的主要调控因子,正向调控BGC的转录,而RazA和RazB正向调控razD的转录。
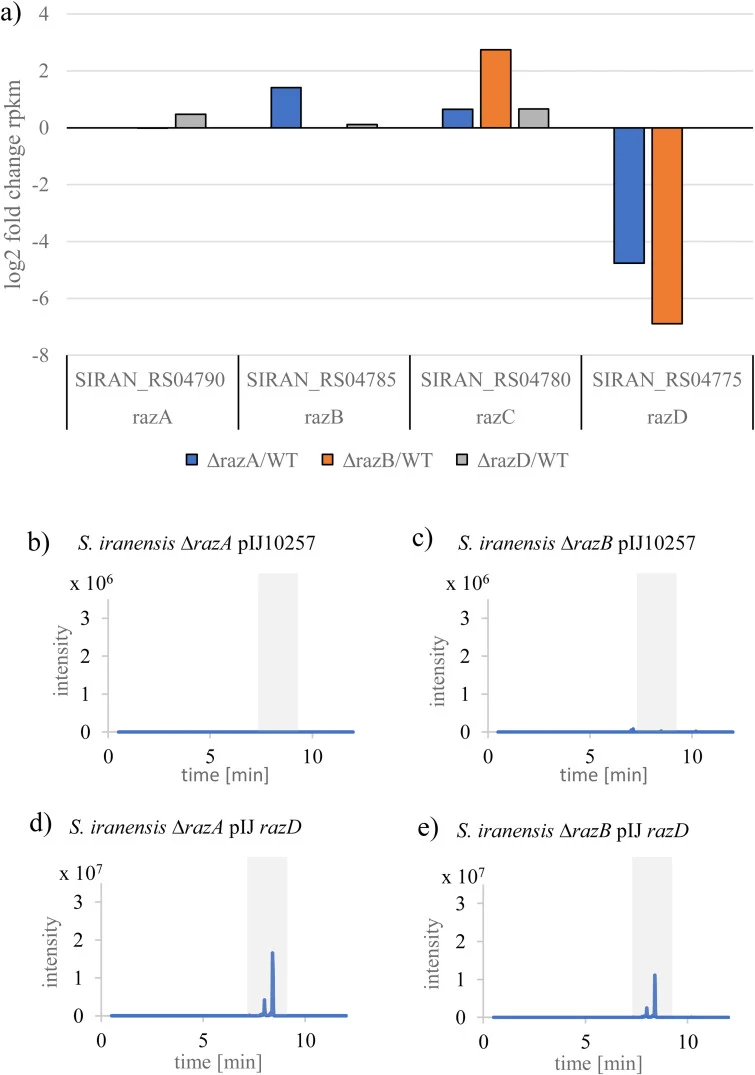
【数据】三个缺失菌株(ΔrazD、ΔrazB、ΔrazA)中阿扎霉素F核心生物合成基因转录水平:与野生型相比强烈下降;razD表达水平:野生型中高于razC、razB、razA;ΔrazA和ΔrazB中razD mRNA:显著降低;交叉互补质粒:pIJ-razD(ermE*启动子);交叉互补后阿扎霉素F:ΔrazA和ΔrazB中均检测到;空载体对照:无阿扎霉素F产生
RazD结合azlB启动子区域
我们推测LuxR型调控因子RazD直接结合阿扎霉素F BGC的启动子区域。因此,进行了电泳迁移率变动分析(EMSA),测试azlB(编码阿扎霉素F BGC第一个聚酮合酶基因)的推定启动子区域是否被RazD蛋白结合。然而,在许多LuxR型调控因子中……
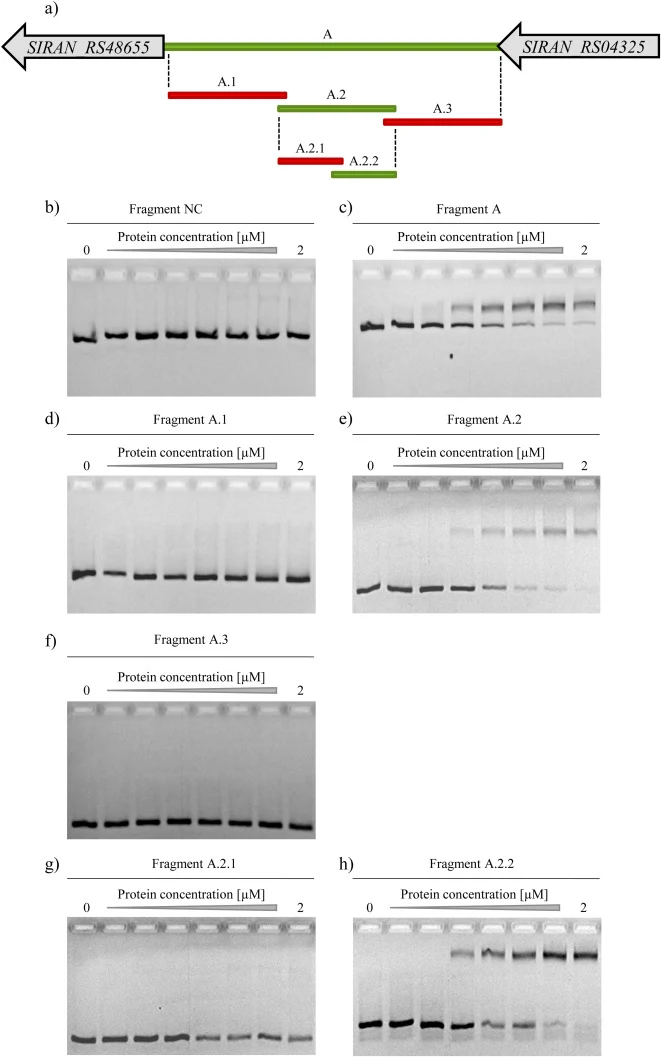
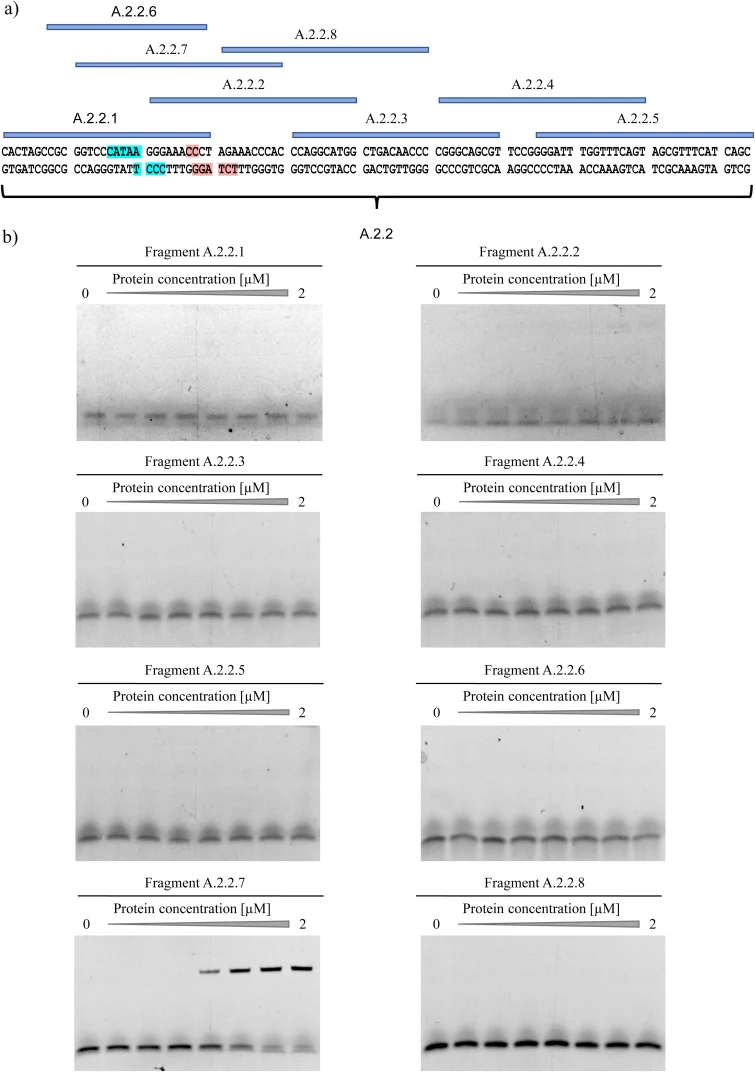
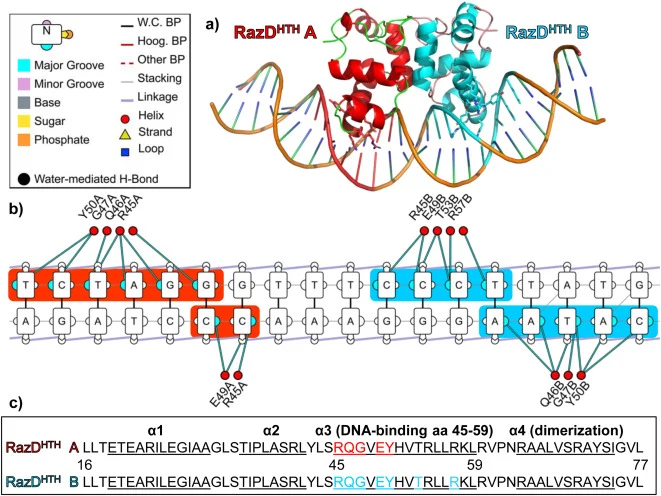
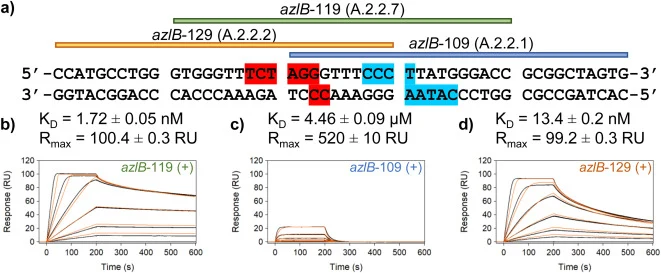
【数据】EMSA探针:azlB推定启动子区域;RazD结合基序:5′-CTAGGGAWTY-3′;SPR分析:RazD_HTH_与DNA双链体结合;AlphaFold 3预测:两个RazD_HTH_单体结合30 bp DNA双链体(A.2.2.7)
讨论与解读
微生物间的相互作用由分子驱动,包括构成微生物“语言”的天然产物。一个典型例子是S. iranensis和S. rapamycinicus产生的精氨酮类化合物阿扎霉素F,该化合物能激活构巢曲霉中地曲酸及其衍生物的产生。阿扎霉素F BGC的表达需要编码tRNA^Leu的调控基因bldA参与。基于对bldA的认识,本研究报道了调控岛razABCD的发现,该调控岛不属于阿扎霉素F BGC,位于距BGC约120 kbp处。razABCD调控岛含有四个编码LuxR家族转录调控因子的基因。RazD是BGC的主要转录激活因子,而RazA和RazB均是激活RazD转录所必需的(图8)。RazD似乎还控制razABC的表达(适度抑制),RazB可能抑制razC的表达,并且由于其基因重叠,可能也抑制自身表达。RazC的功能仍有待阐明。LuxR型转录因子通常含有负责DNA结合的C端螺旋-转角-螺旋(HTH)结构域,但N端结构域结构各异。根据其结构域架构,这些转录因子可分为不同亚组。RazD属于PAS-LuxR亚型,其成员较小,通常在200至400 aa之间。
本研究通过EMSA和SPR分析,利用纯化的RazD DNA结合结构域,定义了RazD的DNA结合基序为5′-CTAGGGAWTY-3′。分子遗传学分析进一步揭示razA和razB在razD上游发挥层级调控作用。这些发现建立了细菌生物合成基因簇调控与沉默真菌BGC激活之间的调控联系,为跨王国代谢通讯提供了机制性见解。
编译者解读
该研究的亮点在于将细菌信号分子的合成调控与真菌次级代谢的跨物种激活联系起来,构建了一条完整的“RazA/RazB→RazD→azl-BGC→阿扎霉素F→真菌ors BGC”信号链。方法上,作者巧妙利用bldA依赖的TTA密码子作为筛选标记,结合基因组比较锁定候选调控基因,再通过交叉互补和体外DNA结合实验确定调控层级,逻辑严密。局限方面,RazC功能未明,RazA/RazB感知的上游信号及RazD翻译后调控机制尚不清楚。从合成生物学应用角度看,该调控岛可作为异源表达阿扎霉素F或改造跨物种激活系统的候选元件,但多层级调控的复杂性也增加了工程化改造的难度。
参考来源
期刊:Journal of Biological Chemistry, 2026
DOI: 10.1016/j.jbc.2026.113572
DOI: 10.1016/j.jbc.2026.113572