来源:Carvacrol nanoemulsion achieves potent suppression of Aspergillus niger on high-moisture fruits by disrupting carbon-nitrogen metabolic homeostasis and triggering oxidative stress(Postharvest Biology and Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
黑曲霉是高湿水果采后腐烂的主要致病真菌,造成严重食品浪费与经济损失。香芹酚作为植物源酚类化合物具有显著抗真菌潜力,但水溶性差、易挥发限制了其应用。本研究以OSA改性淀粉纳米颗粒稳定香芹酚纳米乳(CN),系统比较了CN与乙醇溶解香芹酚(CE)的抗真菌效果,并通过转录组与蛋白质组整合分析揭示了CN抑制黑曲霉的分子机制。CN粒径更小、穿透力更强,MIC低至156.25 mg/L,仅为CE的一半,并在猕猴桃与草莓活体实验中显著抑制病斑扩展。
研究背景
采后真菌感染是新鲜农产品腐烂的首要原因,全球经济损失巨大。高湿类商品——尤其是营养丰富、表皮薄弱的软质水果——采后生理代谢旺盛,极易被真菌侵染。黑曲霉是曲霉属中常见的种类,擅长在受损组织中定殖,并在贮藏条件下快速增殖。猕猴桃和草莓等高价值水果需要高湿贮藏以维持品质,但采收和包装过程中不可避免产生微小机械损伤,恰好为黑曲霉感染创造了理想入口。已有研究报道,黑曲霉常从草莓和猕猴桃表面微生物群落中分离获得,加速果实腐烂并缩短货架期。除造成可见的菌丝过度生长、组织软化和变色外,部分产毒菌株还能产生赭曲霉毒素A,对食品安全和消费者健康构成严重威胁。传统化学杀菌剂因残留、抗性和环境问题日益受到限制,开发天然、高效的替代防控策略成为迫切需求。
研究方法
2.1 材料
香芹酚购自上海阿拉丁生化科技股份有限公司。黑曲霉(FSCC114002)、马铃薯葡萄糖琼脂(PDA)和马铃薯葡萄糖肉汤(PDB)培养基购自广州环凯微生物科技有限公司。马铃薯淀粉由北京奥博星生物技术有限公司提供;OSA和大豆油购自上海麦克林生化科技有限公司。ROS检测试剂盒购自上海碧云天生物技术有限公司。MDA含量检测试剂盒和ATP含量检测试剂盒购自苏州科铭生物技术有限公司。麦角甾醇标准品购自上海源叶生物科技有限公司。甲醇购自上海星可高纯溶剂有限公司。乙醇购自上海凌峰化学试剂有限公司。碘化丙啶(PI)和磷酸盐缓冲液(PBS)购自北京雷根生物技术有限公司。
【数据】香芹酚来源:上海阿拉丁;菌株:黑曲霉FSCC114002;培养基:PDA、PDB;其他试剂来源:原文已详述
2.2 CN的制备
CN按照此前报道的方法制备(Xie et al., 2024)。简言之,首先使用超声辅助Fenton体系合成淀粉纳米颗粒。随后,用OSA对淀粉纳米颗粒进行改性以获得OSA改性淀粉纳米颗粒。最后,使用这些OSA改性淀粉纳米颗粒稳定含3%香芹酚(溶于大豆油)的纳米乳液,通过高速均质和超声处理制备,标记为NEs。CN的理化性质,包括粒径、电位、形貌和稳定性,以及其对柑橘类水果的有效保鲜效果,已在我们此前的工作中进行了全面表征和验证(Xie et al., 2025)。
【数据】香芹酚浓度:3%(溶于大豆油);制备方法:超声辅助Fenton体系合成淀粉纳米颗粒,OSA改性,高速均质+超声处理;CN理化表征:粒径、电位、形貌、稳定性(详见Xie et al., 2025)
2.3 菌丝生长抑制评估
将黑曲霉接种于PDA平板中央,在28 °C、90%相对湿度(RH)条件下培养7 d。随后将活化的菌丝(直径7 mm)转移至含不同处理的PDA平板中央:对照组(CK,0%香芹酚)、CN组(含0.5%、1%、2%、3%和4% NEs,v/v)和CE组(用乙醇溶解的等浓度香芹酚)。在28 °C、90% RH条件下培养7 d后,测量菌丝生长直径,并计算各处理组的抑制率。此外,将活化菌丝用蒸馏水洗涤并过滤获得孢子悬液(1 ×10⁶ 孢子/mL)。取100 μL孢子悬液加入100 mL含特定体积NEs的PDB培养基中。培养物在28 °C下振荡培养,实验结束时测量菌丝干重。CK:对照;0.08CE或0.16CE:含80 mg/L或160 mg/L CE(含1%乙醇)的PDB培养基;0.08CN或0.16CN:向PDB培养基中加入NEs使香芹酚浓度达到80或160 mg/mL。
【数据】培养温度:28 °C;相对湿度:90% RH;培养时间:7 d;菌丝直径:7 mm;孢子悬液浓度:1 ×10⁶ 孢子/mL;CN浓度梯度:0.5%、1%、2%、3%、4%(v/v);CE/CN处理浓度:80、160 mg/L;接种量:100 μL孢子悬液/100 mL PDB
2.4 最低抑菌浓度(MIC)和最低杀菌浓度(MFC)测定
采用96孔板稀释法测定CN的MIC。在PDB培养基中制备CN系列稀释液以形成浓度梯度。向每孔中加入孢子悬液(100 μL,1 ×10⁶ 孢子/mL)。在28 °C、90% RH条件下培养3 d后,将MIC定义为完全阻止可见菌丝生长的最低浓度。对于MFC测定,从无肉眼可见菌丝生长的孔中取100 μL涂布于PDA上,在相同条件下培养3 d。MFC定义为导致真菌完全无生长的最低浓度,表明其为杀菌而非抑菌活性。
【数据】接种量:100 μL孢子悬液(1 ×10⁶ 孢子/mL)/孔;培养温度:28 °C;相对湿度:90% RH;培养时间:3 d;MIC定义:完全阻止可见菌丝生长的最低浓度;MFC定义:完全无真菌生长的最低浓度
2.5 SEM和TEM超微结构分析
使用SEM和TEM观察菌丝的形态变化。对于SEM分析,将菌丝(7 mm)置于含CN的PDA平板中央。平板在28 °C、90% RH条件下培养7 d。随后从菌落边缘采集菌丝圆片(7 mm),在2.5%戊二醛中固定12 h,然后用梯度乙醇系列(50%、70%、95%和100%)脱水,每步15 min。样品随后干燥、喷金,使用SEM(SU-8020,Hitachi,日本)观察。对于TEM观察,将孢子悬液(100 μL,1 ×10⁶ 孢子/mL)接种到25 mL PDB中,在28 °C培养2 d。所得菌丝暴露于CN处理12 h。经过离心、洗涤、固定和脱水程序后,制备菌丝超薄切片,使用TEM(JEM-1200EX,Hitachi,日本)观察。
【数据】菌丝圆片直径:7 mm;固定液:2.5%戊二醛;固定时间:12 h;乙醇梯度:50%、70%、95%、100%;每步脱水时间:15 min;SEM培养条件:28 °C、90% RH、7 d;TEM培养条件:28 °C、2 d;CN处理时间:12 h;孢子悬液:100 μL(1 ×10⁶ 孢子/mL)/25 mL PDB;仪器:SEM SU-8020(Hitachi)、TEM JEM-1200EX(Hitachi)
2.6 碘化丙啶(PI)染色和活性氧(ROS)检测
将孢子悬液(100 μL,1 ×10⁶ 孢子/mL)在25 mL PDB中于28 °C培养3 d。然后将发育的菌丝暴露于CN处理4 h。将菌丝样品(0.1 g)转移至1.0 mL PBS(0.2 M,pH 7.0)中,加入20 μL PI染色液或1 μL 10 μM DCFH-DA,在28 °C黑暗条件下孵育30 min。染色后,用PBS(0.2 M,pH 7.0)洗涤菌丝三次以去除多余染色试剂。随后使用荧光显微镜(Primostar 3,Zeiss,德国)分别在550 nm和488 nm激发波长下观察PI染色和ROS积累。
【数据】孢子悬液:100 μL(1 ×10⁶ 孢子/mL)/25 mL PDB;培养温度:28 °C;培养时间:3 d;CN处理时间:4 h;菌丝样品量:0.1 g;PBS浓度:0.2 M,pH 7.0;PI用量:20 μL;DCFH-DA用量:1 μL(10 μM);孵育条件:28 °C、黑暗、30 min;洗涤次数:3次;激发波长:PI 550 nm、ROS 488 nm;仪器:荧光显微镜Primostar 3(Zeiss)
2.7 细胞质膜完整性评估
参照Ma et al.(2018)的方法测定真菌细胞电解质泄漏。将黑曲霉孢子悬液接种到PDB中,在28 °C振荡培养48 h。用无菌水洗涤后,将菌丝生物量(1.5 g)悬浮于25 mL CN中,每小时监测细胞外电导率。此外,将CN加入含1 × 10⁶ 孢子/mL的25 mL PDB中,在28 °C孵育4 h。在0 h和4 h时间点测量上清液在260 nm和280 nm处的吸光度。OD260表示核酸泄漏,OD280反映受损细胞的蛋白质泄漏。
【数据】培养温度:28 °C;培养时间:48 h;菌丝生物量:1.5 g;悬浮体积:25 mL CN;电导率监测频率:每小时;孢子浓度:1 × 10⁶ 孢子/mL;孵育温度:28 °C;孵育时间:4 h;检测波长:260 nm(核酸)、280 nm(蛋白质);检测时间点:0 h、4 h
2.8 MDA、ATP和麦角甾醇含量评估
将黑曲霉菌丝接种于无菌PDA培养基中央,在28 °C、90% RH的恒温恒湿培养箱中培养7 d。向培养基中加入无菌蒸馏水洗脱菌丝,经两层无菌纱布过滤获得孢子悬液。取100 μL孢子悬液(1 ×10⁶ 孢子/mL)接种到100 mL无菌PDB培养基中,在28 °C、150 rpm振荡培养箱中培养3 d,然后用CN处理6 h。处理后,离心洗涤菌丝,立即收集,在液氮中冷冻,匀浆备用。使用相应检测试剂盒测定MDA和ATP含量。麦角甾醇含量测定参照Li et al.(2022)的方法并稍作修改,使用配备UV检测器的高效液相色谱(HPLC)系统(型号L3000,Rigol Technologies Co., Ltd.,苏州,中国)。准确称取0.2 g匀浆菌丝样品,加入1 mL无水乙醇。使用自动匀浆器在4 °C、60 Hz条件下匀浆60 s,然后在冰水浴中超声提取30 min,并在4 °C冰箱中浸泡过夜。提取液在8000 g、4 °C条件下离心10 min,小心吸取上清液,通过0.22 μm有机相滤膜过滤,收集滤液用于HPLC分析。HPLC分析使用Compass-C18反相色谱柱(250 mm×4.6 mm,5 μm),流速0.7 mL/min,柱温维持30 °C,检测波长设定为320 nm。
【数据】培养条件:28 °C、90% RH、7 d(PDA);孢子悬液:100 μL(1 ×10⁶ 孢子/mL)/100 mL PDB;振荡培养:28 °C、150 rpm、3 d;CN处理时间:6 h;菌丝样品量:0.2 g;无水乙醇用量:1 mL;匀浆条件:4 °C、60 Hz、60 s;超声提取:冰水浴、30 min;浸泡:4 °C过夜;离心:8000 g、4 °C、10 min;滤膜孔径:0.22 μm;色谱柱:Compass-C18(250 mm×4.6 mm,5 μm);流速:0.7 mL/min;柱温:30 °C;检测波长:320 nm;HPLC型号:L3000(Rigol Technologies)
研究结果
3.1 CN对菌丝生长的抑制作用
CE和CN对黑曲霉的抑制效果见图1A-E。随着香芹酚浓度的增加,黑曲霉菌丝生长逐渐受到抑制(图1A)。值得注意的是,在等浓度条件下,含CN的PDA平板上的真菌生长始终弱于CE组。定量分析(图1B-C)也表明,纳米包封显著增强了香芹酚的抗真菌活性。在4%浓度下,CN将菌落直径降至8.77 mm,抑制率为85.57%,显著优于CE(分别为17.80 mm和70.70%;p < 0.01)。CN浓度与抑制率之间的回归分析(图1D)显示强正相关(R²=0.9927),IC50值为1.35%。如图1E所示,CE的MIC和MFC分别为312.5和625 mg/L。CN表现出显著更低的MIC(156.25 mg/L)和MFC(312.5 mg/L),表明其在更低浓度下具有更强的杀菌活性。
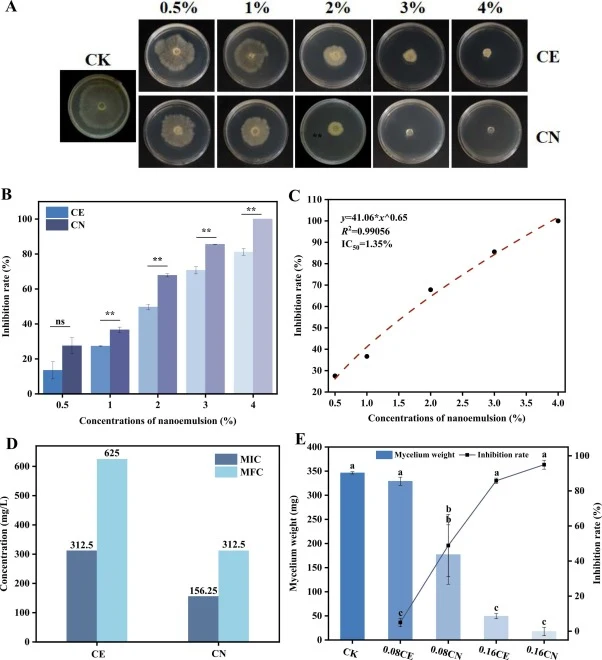
【数据】4% CN:菌落直径8.77 mm,抑制率85.57%;4% CE:菌落直径17.80 mm,抑制率70.70%;p < 0.01;R²=0.9927;IC50=1.35%;CE MIC=312.5 mg/L,CE MFC=625 mg/L;CN MIC=156.25 mg/L,CN MFC=312.5 mg/L
3.2 CN对菌丝的形态和超微结构损伤
使用SEM和TEM检查了黑曲霉的形态和超微结构变化(图2)。在对照组中,菌丝表面光滑、完整,形态正常(图2A)。相比之下,CE处理造成明显损伤,菌丝出现皱缩和塌陷(图2B)。CN引起更严重的改变,菌丝失去丝状结构,表现为极度变形、异常肿胀和大的球形突起(图2C)。TEM分析证实了这些发现。对照细胞显示组织良好的超微结构,细胞壁(CW)完整,质膜清晰,细胞核(N)和脂滴(LDs)等细胞器清晰可见,嵌入致密的细胞质中(图2D)。CE处理的细胞表现出严重的质壁分离、细胞质紊乱以及肿胀的平滑内质网(SER)和自噬体(Ab)增殖,表明膜功能破坏和细胞应激(图2E)。CN处理造成不可逆的破坏,细胞器解体,细胞质大量泄漏,留下大量空泡和凋亡样小体(图2F)。
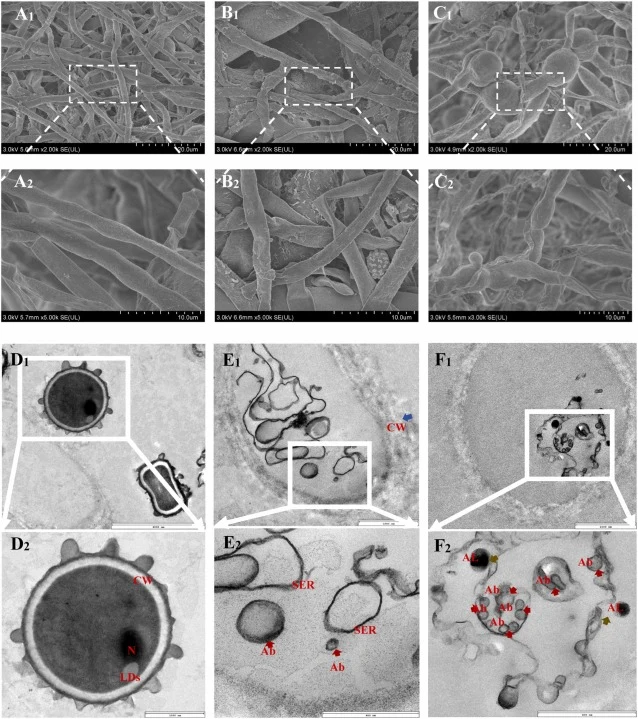
【数据】SEM培养:28 °C、90% RH、7 d;TEM培养:28 °C、2 d,CN处理12 h;CK组:菌丝表面光滑完整;CE组:菌丝皱缩塌陷,质壁分离,SER和自噬体增殖;CN组:菌丝极度变形、异常肿胀、球形突起,细胞器解体,细胞质泄漏,大量空泡和凋亡样小体
3.3 ROS含量和膜完整性
通过荧光显微镜评估了细胞内ROS积累和膜完整性(图3)。使用DCFH-DA探针(绿色荧光)可视化细胞内ROS积累(Kong et al., 2023)。CK组荧光微弱,表明健康菌丝中ROS处于基础水平(图3A1-A2)。相比之下,CE和CN处理均引发明显的、剂量依赖性的ROS生成增加(图3B2-B5)。关键的是,CN组的绿色荧光明显更亮、更广泛,凸显了其在更低浓度下诱导氧化应激的优越能力。通过PI染色评估质膜完整性,PI选择性进入膜受损细胞,显示红色荧光。正如预期,对照菌丝对PI不透,无红色荧光(图3D1)。处理后,CE和CN均观察到剂量依赖性的PI摄取增加,证实香芹酚破坏了真菌膜。CN处理的菌丝显示出强烈且广泛的红色荧光(图3D5)。
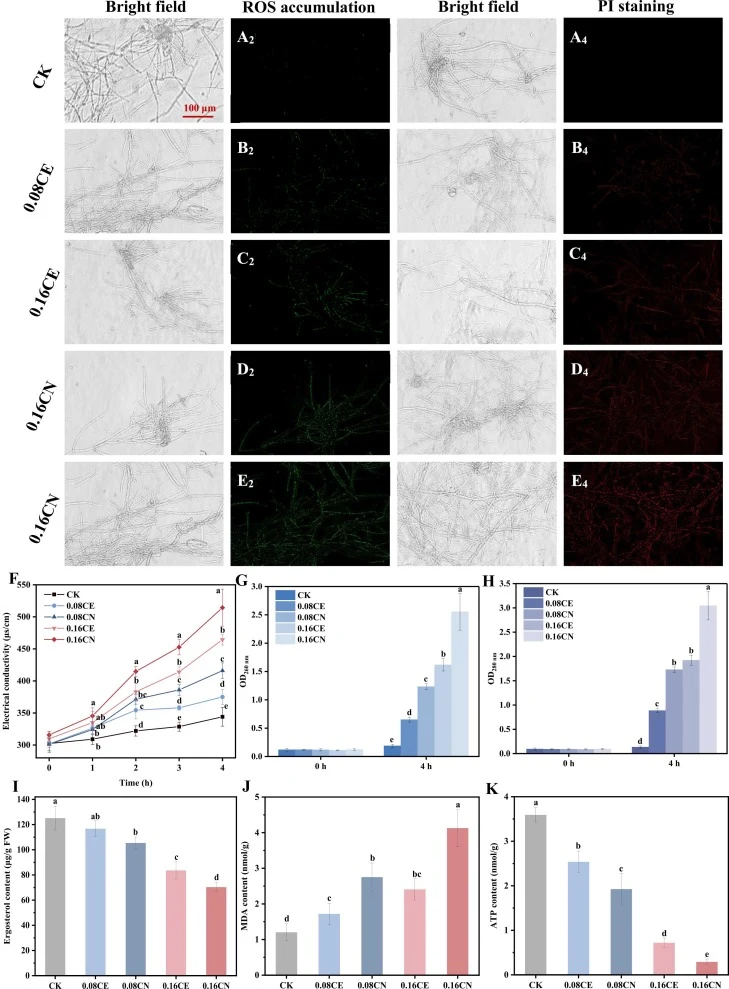
【数据】ROS探针:DCFH-DA(绿色荧光);PI染色(红色荧光);CK组:ROS荧光微弱,PI无荧光;CE和CN组:剂量依赖性ROS增加和PI摄取增加;CN组荧光强度和范围均大于CE组
3.4 细胞膜通透性和细胞泄漏
电导率是广泛使用的细胞膜完整性指标。如图3E所示,CK组电导率随时间保持相对稳定,表明未处理条件下膜完整性良好。相比之下,处理组表现出显著的膜透化和离子泄漏,具有剂量依赖性效应。值得注意的是,CN组电导率增加约为CE组的1.1–1.2倍。为评估CE和CN对黑曲霉膜通透性的影响,在处理后0 h和4 h测量了核酸(图3G)和蛋白质泄漏(图3H)。4 h后,观察到浓度依赖性的核酸泄漏增加,CN处理组在等浓度下核酸释放量高于CE。同样,蛋白质泄漏以剂量依赖性方式显著增加,CN处理诱导的蛋白质外排高于CE处理。在0.16 mg/L时,CN组蛋白质泄漏达到约0.29吸光度单位,几乎是CE组的3倍。
【数据】CK组电导率:随时间稳定;CN组电导率:约为CE组的1.1–1.2倍;检测时间点:0 h、4 h;0.16 mg/L CN蛋白质泄漏:约0.29吸光度单位,约为CE组的3倍
3.5 麦角甾醇、MDA和ATP含量
为进一步阐明CN对黑曲霉生理代谢的影响,测定了各组菌丝中麦角甾醇、MDA和ATP含量。麦角甾醇是真菌细胞膜的关键组分,与膜完整性和流动性直接相关。CK组麦角甾醇含量为125.12 μg/g FW(图3I)。CE和CN处理后呈浓度依赖性下降,CN组抑制作用更为突出。0.16CN组麦角甾醇含量仅为70.26 μg/g FW,较对照组下降43.85%,显著低于0.16CE组(83.58 μg/g FW)。这些结果表明CN能更有效抑制黑曲霉麦角甾醇合成,破坏细胞膜结构完整性。作为脂质过氧化的特征产物,MDA含量可直接反映细胞氧化损伤程度。CE和CN处理后MDA含量增加,CN组脂质过氧化水平更为显著(图3J),表明CN能诱导黑曲霉产生更多ROS,引发严重脂质过氧化,破坏细胞膜结构稳定性。ATP含量直接反映线粒体功能和能量供应状态。如图3K所示,CK组ATP含量最高,达到3.59 nmol/g。随着CE和CN处理浓度从0.08增加至0.16 nmol/g,菌丝ATP含量呈显著下降趋势。值得注意的是,相同浓度下CN处理组的效果显著强于CE处理组。
【数据】CK组麦角甾醇:125.12 μg/g FW;0.16CN组麦角甾醇:70.26 μg/g FW,较对照下降43.85%;0.16CE组麦角甾醇:83.58 μg/g FW;CK组ATP:3.59 nmol/g;CE和CN处理浓度:0.08→0.16 nmol/g,ATP显著下降;MDA:CE和CN处理后增加,CN组更显著
3.6 CN对黑曲霉的活体抗真菌活性
如图4所示,活体实验结果表明CN对猕猴桃和草莓中的黑曲霉均提供了强效的、剂量依赖性保护。在所有处理中,与CK对照相比,递增剂量的CN逐步限制了感染病斑的发展,1.6CN在两种水果中均产生最强保护,优于CE(图4A、C)。在猕猴桃中,第6天时1.6CN组病斑直径(25.97 mm)显著小于CK(38.38 mm)和CE(34.21 mm)(p < 0.05)(图4B)。在草莓中,1.6CN处理在第4天产生最大病斑缩减,CE较CK有所改善(图4D)。
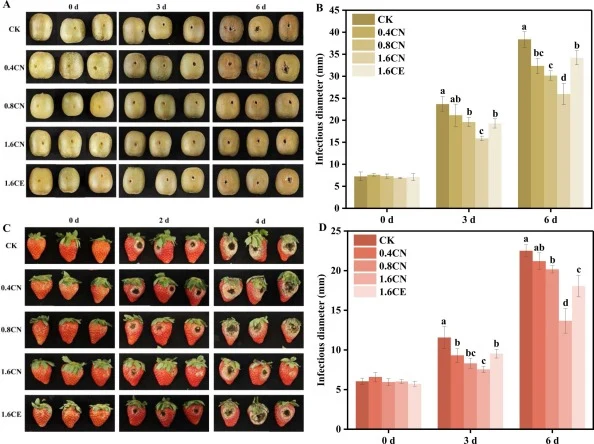
【数据】猕猴桃第6天病斑直径:1.6CN=25.97 mm,CK=38.38 mm,CE=34.21 mm,p < 0.05;草莓:1.6CN第4天病斑缩减最大;n=3
3.7 转录组学分析
为全面了解纳米乳抗真菌作用的分子机制,对CN处理和CK的黑曲霉菌丝进行了转录组分析(图5)。共测序6个转录组文库,产生38.7 Gb clean bases,每个样本超过5.93 Gb。Q20和Q30碱基百分比分别大于99.09%和96.46%,表明测序数据质量高,适合下游分析。主成分分析(PCA)显示CK和CN组之间明显且显著的分离(图5A)。第一主成分(PC1)占总方差的85.08%,表明CN处理导致黑曲霉基因表达谱发生深刻变化。
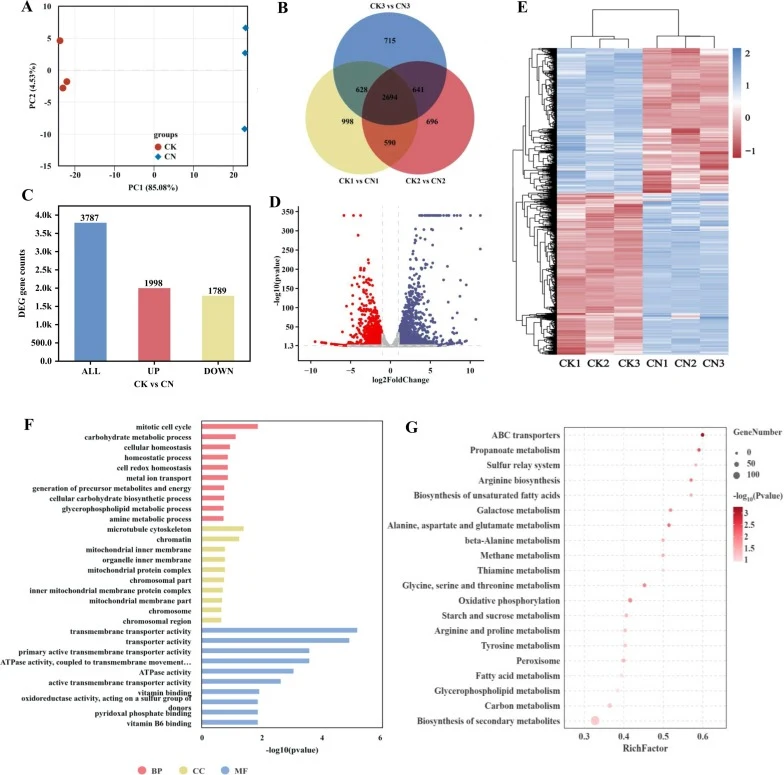
【数据】转录组文库:6个;clean bases总量:38.7 Gb;每样本:>5.93 Gb;Q20:>99.09%;Q30:>96.46%;PC1方差贡献率:85.08%
3.8 蛋白质组学分析
对CN处理和CK的黑曲霉进行了蛋白质组学分析(图7)。PCA图显示CK和CN组之间蛋白质表达谱存在明显分离(图7A)。蛋白质功能注释(图7B)对差异表达蛋白(DEPs)进行了功能分类。火山图(图7C)展示了DEPs的分布情况。差异聚类热图(图7D)显示了DEPs的表达模式。KEGG分类(Top 20)(图7E)和GO富集(Top 30)(图7F)图展示了DEPs涉及的代谢通路和生物学功能。
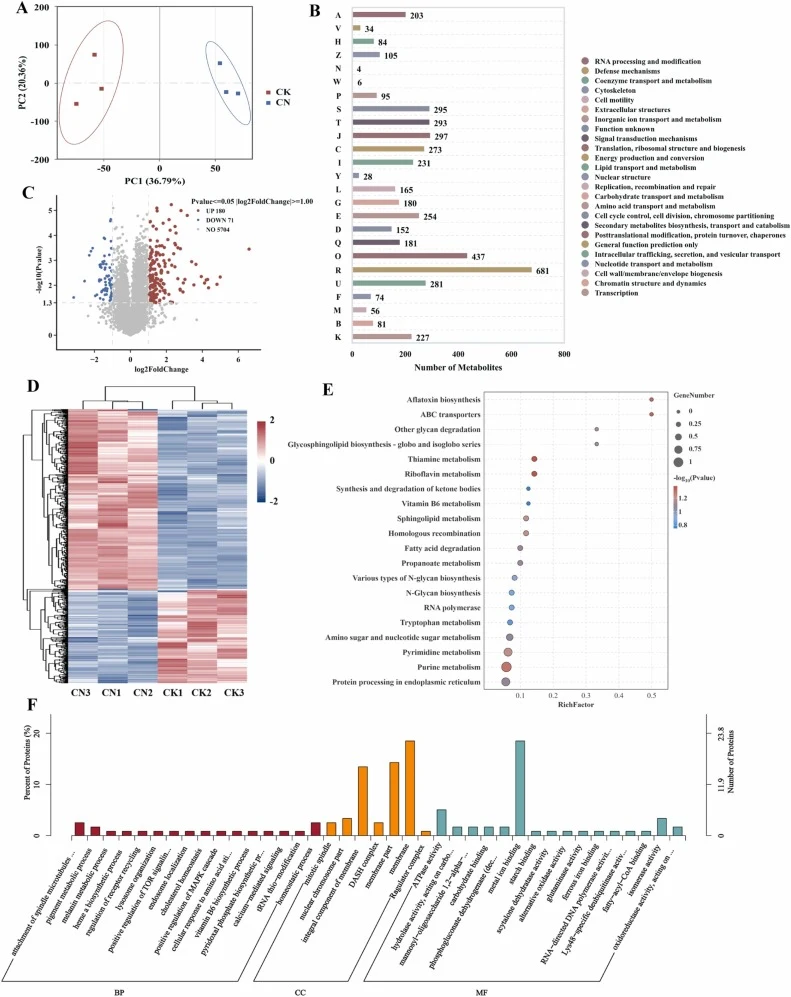
【数据】PCA:CK与CN组蛋白质表达谱明显分离;分析内容:蛋白质功能注释、火山图、聚类热图、KEGG分类(Top 20)、GO富集(Top 30)
3.9 转录组与蛋白质组整合分析
对CN处理和CK的黑曲霉进行了转录组和蛋白质组的整合分析(图8)。Venn图(图8A)显示了基因和蛋白质的重叠情况。上调/下调基因和蛋白质数量见图8B。O2PLS分析(图8C)揭示了转录组和蛋白质组之间的整体相关性。GO术语(图8D)和KEGG通路(图8E)的相关性分析展示了mRNA和蛋白质水平之间的一致性。基于整合分析结果,提出了香芹酚抑制黑曲霉的机制模型(图8F)。
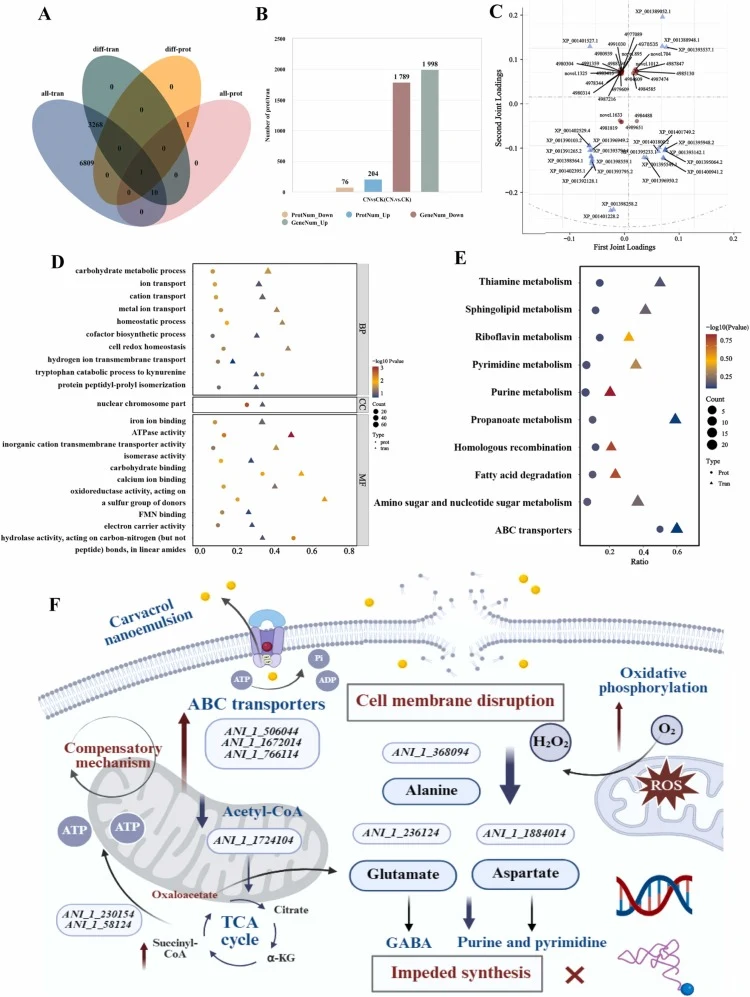
【数据】分析内容:Venn图、上/下调基因和蛋白质、O2PLS分析、GO术语相关性、KEGG通路相关性、机制模型
讨论与解读
黑曲霉是果蔬采后腐烂的致病菌,导致贮藏和流通中的品质劣变和经济损失。香芹酚作为酚类单萜,因其天然抗真菌活性在食品保鲜和绿色病害防控中受到广泛关注。多项研究表明,香芹酚在体外对多种植物病原真菌具有广谱抗真菌活性,包括炭疽菌属、青霉属和链格孢属,其抑制作用常与膜破坏、细胞内泄漏和氧化应激反应相关。然而,游离香芹酚的实际效力受其强疏水性、在水体系中分散性有限和挥发性制约,降低了其生物利用度。大量研究表明,纳米乳体系有望克服这些局限,有效增强抗真菌活性并延长作用时间。本研究评估了香芹酚纳米乳与游离香芹酚的抗真菌潜力,重点探究纳米乳体系为何表现出优越的抗菌活性,以及香芹酚抑制黑曲霉的分子机制。体外抗真菌实验表明,CN表现出优越的抗真菌功效,纳米级液滴增强了细胞膜穿透,导致更低的MIC(156.25 mg/L)和MFC(312.5 mg/L),仅为CE的一半。CN诱导了更严重的菌丝膜和超微结构损伤、ROS积累、电解质泄漏、麦角甾醇和ATP含量降低以及MDA水平升高。活体实验证明CN减少了猕猴桃和草莓贮藏期间的病斑直径。转录组和蛋白质组整合分析揭示,CN深刻扰乱了黑曲霉的代谢稳态:黑曲霉上调ABC转运蛋白以外排香芹酚,但线粒体氧化磷酸化下调导致ATP缺乏;同时CN抑制了丙氨酸、天冬氨酸和谷氨酸代谢以及丙酸代谢中的关键基因/蛋白质,阻断了氮同化、核苷酸合成和毒性中间体解毒。CN诱导的氧化损伤、生物合成停滞以及DNA复制和修复功能受损导致膜损伤和大分子泄漏,最终引起不可逆的细胞死亡。
编译者解读:该研究以OSA改性淀粉纳米颗粒稳定香芹酚构建纳米乳,巧妙利用纳米尺度增强膜穿透性,将MIC降低一半,体现了纳米递送系统在天然抗菌剂增效中的核心价值。方法上,转录组与蛋白质组整合分析为解析多靶点作用机制提供了系统框架,克服了单一组学的局限。然而,研究未涉及CN在果实表面的残留动态与感官品质影响,且活体实验周期较短,长期贮藏稳定性有待验证。从合成生物学视角看,未来可考虑将香芹酚生物合成途径导入工程菌株实现绿色生产,并与纳米递送体系结合,构建从生产到应用的完整链条。
参考来源
期刊:Postharvest Biology and Technology, 2026
DOI: 10.1016/j.postharvbio.2026.114347
DOI: 10.1016/j.postharvbio.2026.114347