来源:Artificial gene clusters designed for simultaneous multi-gene expression enable reconstruction of metabolite biosynthesis pathways in Trichoderma reesei(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
里氏木霉是高效蛋白分泌底盘,但多基因协同调控工具的匮乏限制了其作为代谢物细胞工厂的潜力。本研究利用奎尼酸响应型qai基因簇的天然DNA元件,设计出可诱导及组成型两种人工基因簇(AGC),最多可同时表达六个功能基因。研究鉴定出qai1为qai簇的主转录激活因子,其过表达即可绕过QA诱导。以ilicicolin H和赤藓糖醇为概念验证,分别在里氏木霉中实现了目标产物的合成与产量提升。
研究背景
合成生物学的快速发展使微生物细胞工厂成为代谢物生物合成的研究热点。通过遗传与代谢工程手段,可有针对性地调控胞内代谢通量或引入异源合成途径,从而实现高价值化合物的高水平生产。微生物代谢网络错综复杂,细胞工厂的构建往往需要多个基因的协同调控,才能实现迭代优化和高效合成。
在众多微生物底盘之中,丝状真菌里氏木霉凭借出色的蛋白分泌能力,被公认为生产纤维素酶和异源蛋白的高效细胞工厂。近年来,随着基因组信息和工程工具的持续完善,里氏木霉在有机酸、糖醇和次级代谢产物生物合成中的应用日益受到关注。其利用可再生木质纤维素生物质的天然能力,更使其成为整合生物加工(CBP)的有竞争力底盘。
然而,里氏木霉现有的遗传操作工具在多重基因协调调控方面仍显繁琐耗时。本研究从该菌的奎尼酸(QA)响应型qai基因簇中挖掘功能DNA元件,构建模块化、可诱导的人工基因簇(AGC),旨在为里氏木霉底盘工程提供快速、多重化的基因表达调控工具。
研究方法
2.1 菌株与培养基
大肠杆菌DH5α细胞在含100 mg/L氨苄青霉素的Luria-Bertani(LB)培养基中、37°C条件下培养,用于质粒构建和扩增。里氏木霉QM9414-Δypr1-Δpyr4菌株(在QM9414中敲除pyr4和ypr1基因获得)作为重组里氏木霉菌株构建的出发菌株[25]。所有里氏木霉菌株均在麦芽提取物琼脂(MEA)上保存用于产孢。里氏木霉孢子接种至Mandels-Andreotti(MA)培养基中,在30°C、220 rpm条件下预培养48 h。随后收集菌丝体并用无菌水洗涤。之后,将等量菌丝体转移至添加指定碳源的新鲜基础培养基(MM)中,按设定时间培养:转录分析12 h,生物量测定3天,ilicicolin H生产7天,赤藓糖醇生产42 h。为考察里氏木霉的营养生长,将孢子接种至含不同碳源的MM固体琼脂平板上,30°C培养3天。必要时,添加尿苷至终浓度10 mM,用于培养pyr4缺陷型里氏木霉菌株。
【数据】菌株:大肠杆菌DH5α、里氏木霉QM9414-Δypr1-Δpyr4;培养基:LB、MEA、MA、MM;抗生素:100 mg/L氨苄青霉素;温度:37°C(大肠杆菌)、30°C(里氏木霉);转速:220 rpm;预培养时间:48 h;转录分析:12 h;生物量测定:3天;ilicicolin H生产:7天;赤藓糖醇生产:42 h;尿苷浓度:10 mM;固体培养:3天
2.2 质粒构建
将含有qai基因簇功能元件、TrpC终止子和pyr4标记盒的人工设计基因簇合成并组装至pMD19T载体,获得AGC-pyr4载体(Genestar,中国)。随后,将iliA(TrireRUTC30_128011)、iliB(TrireRUTC30_74247)、iliC(TrireRUTC30_33667)、iliD(TrireRUTC30_75073)和iliE(TrireRUTC30_96728)基因扩增或合成后,依次插入启动子与终止子之间,生成AGC-pyr4-iliH(Genestar,中国)。线性化后,将AGC-pyr4-iliH转化至QM9414-Δypr1-Δpyr4,获得QM9414-iliH菌株。为过表达qai1,扩增qai1编码区和tcu1启动子,用以替换AGC-pyr4中的qai1/qai6双向启动子,得到AGC-pyr4-qai1构建体。线性化后,将AGC-pyr4-qai1导入QM9414-Δypr1-Δpyr4,生成QM9414-OEqai1菌株。为过表达tkl1(Trire2_120635)、gut1(Trire2_58356)和err1(Trire2_120911),同时敲低eyd1(Trire2_122079),将tkl1、gut1和err1的编码区,以及设计用于通过RNA干扰沉默eyd1的dsRNA表达盒[26],插入AGC-pyr4-qai1中,构建AGC-pyr4-ery质粒(Sangon,中国)。线性化后,将AGC-pyr4-ery转化至QM9414-Δypr1-Δpyr4,产生QM9414-ery菌株。AGC-pyr4和AGC-pyr4-qai1的完整核苷酸序列见补充表S1。AGC组装相关基因的核苷酸序列从里氏木霉v2.0或里氏木霉RUT-C30 v1.0基因组数据库检索获得。此外,eyd1对应的RNA干扰(RNAi)区域在表S1中明确标注。
【数据】质粒:AGC-pyr4、AGC-pyr4-iliH、AGC-pyr4-qai1、AGC-pyr4-ery;基因:iliA(TrireRUTC30_128011)、iliB(TrireRUTC30_74247)、iliC(TrireRUTC30_33667)、iliD(TrireRUTC30_75073)、iliE(TrireRUTC30_96728)、tkl1(Trire2_120635)、gut1(Trire2_58356)、err1(Trire2_120911)、eyd1(Trire2_122079);启动子:tcu1;终止子:TrpC;筛选标记:pyr4;菌株:QM9414-iliH、QM9414-OEqai1、QM9414-ery
2.3 真菌转化
真菌转化按照先前建立的方案进行[22,27]。简言之,通过过滤收集里氏木霉菌丝体,用无菌蒸馏水彻底洗涤以去除残留培养基,然后在含蜗牛酶和溶菌酶的SK缓冲液中、30°C孵育1 h以实现细胞壁消化。通过无菌砂芯漏斗分离原生质体,随后用冰冷的STC溶液洗涤两次。将所得原生质体沉淀重悬于STC溶液中。转化时,将100 μL该悬液与5∼10 μg线性化质粒DNA及25 μL PTC缓冲液混合,冰上孵育20 min,然后用1 mL PTC缓冲液稀释并在室温下孵育5 min。随后加入2 mL STC溶液,将混合物轻轻涂布于含再生培养基的固体平板上。平板在30°C孵育5天。在含1 mL/L Triton X-100的MM固体平板上、30°C条件下进行至少连续两到三轮同核体筛选,直至获得稳定且遗传均一的同核分离株。采用基因组PCR结合定量RT-PCR(RT-qPCR)筛选阳性克隆(图S1和S2),同时独立使用以基因组DNA为模板的qPCR验证AGC拷贝数(图S3)。基因组PCR、RT-qPCR和基因组qPCR所用引物见补充表S2。
【数据】菌丝体消化:30°C、1 h;蜗牛酶和溶菌酶:SK缓冲液;原生质体悬液:100 μL;质粒DNA:5∼10 μg;PTC缓冲液:25 μL(冰上20 min)+ 1 mL(室温5 min);STC溶液:2 mL;再生平板培养:30°C、5天;同核体筛选:30°C、2-3轮;Triton X-100:1 mL/L
2.4 RT-qPCR
将收集的里氏木霉菌丝体放入含石英珠的RNase-free微量管中,使用JXFSTPRP-24L匀浆仪在4°C、60 Hz条件下匀浆10 min。使用TRIzol试剂(TransGen,中国)提取总RNA。使用PrimeScript™ FAST RT reagent Kit with gDNA Eraser(Takara,日本)按照制造商说明进行基因组DNA去除和逆转录。定量RT-PCR在Applied Biosystems QuantStudio 3系统(Thermo Fisher,美国)上进行。扩增反应使用SYBR Green Realtime PCR Master Mix(Toyobo,日本),按制造商说明操作。数据采用比较CT法分析,以actin基因作为内参进行归一化。
【数据】匀浆条件:4°C、60 Hz、10 min;仪器:JXFSTPRP-24L匀浆仪、QuantStudio 3系统;试剂:TRIzol、PrimeScript™ FAST RT reagent Kit with gDNA Eraser、SYBR Green Realtime PCR Master Mix;内参基因:actin;分析方法:比较CT法
2.5 代谢物提取
为提取代谢物ilicicolin H,首先将发酵液以13,000 rpm离心10 min,分离菌丝体与上清液。向上清液中按2.5:1(v/v)比例加入乙酸乙酯,搅拌2 h后静置30 min使两相分离。收集上层有机相。同时,将菌丝体在甲醇(250 mL)中使用超声波细胞破碎仪(Sonics,美国)进行超声破碎。将提取的上清液与菌丝体提取物合并,使用CV600冷冻离心浓缩仪(北京JM科技有限公司,中国)在20°C、3000 rpm条件下真空浓缩。所得浓缩物溶于二甲基亚砜(DMSO),经0.22 μm膜过滤后保存备用。对于代谢物赤藓糖醇,发酵后以13,000 rpm离心10 min去除菌丝体。收集上清液,经0.22 μm膜过滤后保存备用。
【数据】离心:13,000 rpm、10 min;乙酸乙酯比例:2.5:1(v/v);搅拌:2 h;静置:30 min;甲醇体积:250 mL;浓缩:20°C、3000 rpm;滤膜:0.22 μm;溶解剂:DMSO
2.6 HPLC分析
为验证ilicicolin H的合成,将提取液使用高效液相色谱(HPLC)在Shimadzu HPLC系统(Shimadzu,日本)上进行分析,配备C18 Selectivity HPLC柱(5 μm,250 mm × 4.6 mm;Thermo Fisher,美国)。流动相为乙腈/水,在40 min内以30%至100%至30%的线性梯度洗脱。流速设定为1 mL/min,进样量10 μL。柱温维持在40°C,检测波长设定为227 nm。为进一步确认ilicicolin H的生物合成,样品在Triple Quad 6500系统(SCIEX,美国)上进行LC-MS分析。赤藓糖醇使用配备Aminex HPX-87H柱(Bio-Rad,美国)和示差折光检测器的Shimadzu HPLC系统分析。柱温维持在35°C,以5 mM H₂SO₄为流动相,流速0.6 mL/min,分离20 min。
【数据】色谱柱:C18 Selectivity(5 μm,250 mm × 4.6 mm)、Aminex HPX-87H;流动相:乙腈/水梯度(30%→100%→30%,40 min)、5 mM H₂SO₄;流速:1 mL/min(ilicicolin H)、0.6 mL/min(赤藓糖醇);进样量:10 μL;柱温:40°C(ilicicolin H)、35°C(赤藓糖醇);检测波长:227 nm;分离时间:20 min(赤藓糖醇);质谱系统:Triple Quad 6500
2.7 转录组测序与分析
转录组测序在Illumina测序平台(Gene Denovo,中国)上进行。简言之,使用Trizol试剂盒(Invitrogen,美国)提取总RNA。通过Oligo(dT)磁珠富集mRNA,将其片段化为短片段并用随机引物逆转录为cDNA。通过DNA聚合酶合成第二链cDNA。随后,cDNA片段经纯化、末端修复、加poly(A)并连接Illumina测序接头。连接产物通过Hieff NGS® DNA Selection Beads进行片段选择。
【数据】测序平台:Illumina;试剂:Trizol试剂盒、Oligo(dT)磁珠、Hieff NGS® DNA Selection Beads;片段化方式:随机引物逆转录
研究结果
3.1 葡萄糖和甘油促进里氏木霉在含QA培养基中的生长
我们前期工作鉴定了里氏木霉中负责QA感知和分解代谢的qai基因簇。该簇包含六个基因(qai1–6),并含有多个内源双功能DNA元件,可作为启动子、终止子或兼具两者功能[22]。因此,这些DNA元件是在里氏木霉底盘中构建紧凑型多基因共表达簇的理想候选。然而,培养基中QA浓度的增加会以剂量依赖方式抑制菌丝生长[22]。这一结果可能归因于两个机制相关的因素:(i)QA是里氏木霉的非偏好碳源,能量生成不理想;(ii)QA积累破坏胞内和胞外pH稳态,从而损害顶端生长。在工业发酵中,快速生物量积累反映产物合成强劲、生产率高且生产成本降低。为增强里氏木霉在含QA培养基中的生长,我们评估了共补充葡萄糖或甘油的效果。结果表明,与单独QA相比,两种混合碳源均显著提高菌丝生长速率,但仍低于以葡萄糖或甘油为唯一碳源时的水平(图1)。
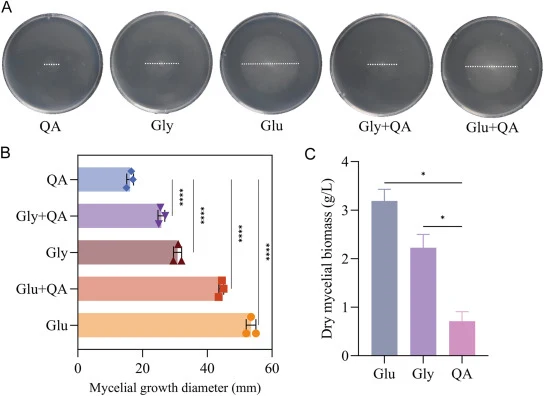
【数据】碳源:QA、葡萄糖、甘油、葡萄糖+QA、甘油+QA;培养时间:3天;培养温度:30°C;生长指标:菌丝直径(统计见图1B);结果:混合碳源显著提高生长速率,但低于单一葡萄糖或甘油
3.2 葡萄糖抑制QA诱导的qai基因簇表达,而甘油不抑制
随后,我们评估了共补充葡萄糖或甘油对QA诱导的qai基因簇表达的影响。定量RT-qPCR分析表明,葡萄糖完全消除了QA依赖性的qai基因簇诱导,而甘油仅轻微减弱转录,从而允许高水平表达(图2)。这种差异调控与里氏木霉和其他微生物中已充分表征的碳分解代谢物阻遏(CCR)行为一致[28–30]。在里氏木霉中,纤维素酶基因受相同调控机制支配:葡萄糖强烈抑制纤维素诱导的转录,而甘油几乎不产生阻遏[31]。然而,尽管里氏木霉纤维素酶基因表达的CCR机制由转录阻遏蛋白Cre1介导,qai基因簇表达的CCR是否由Cre1调控仍需进一步研究。这一一致性支持如下机制解释:葡萄糖作为偏好碳源,触发CCR介导的对替代碳利用途径(包括QA)的抑制。总体而言,我们的数据表明,甘油–QA混合碳源同时支持qai基因簇的强劲QA特异性诱导和加速的菌丝生长(图1和图2)。然而,不同浓度比下的具体表现仍需进一步系统研究。尽管如此,qai基因簇的启动子和终止子代表了一类功能验证的、QA可诱导的调控元件,可用于在里氏木霉细胞工厂中工程化合成基因回路。
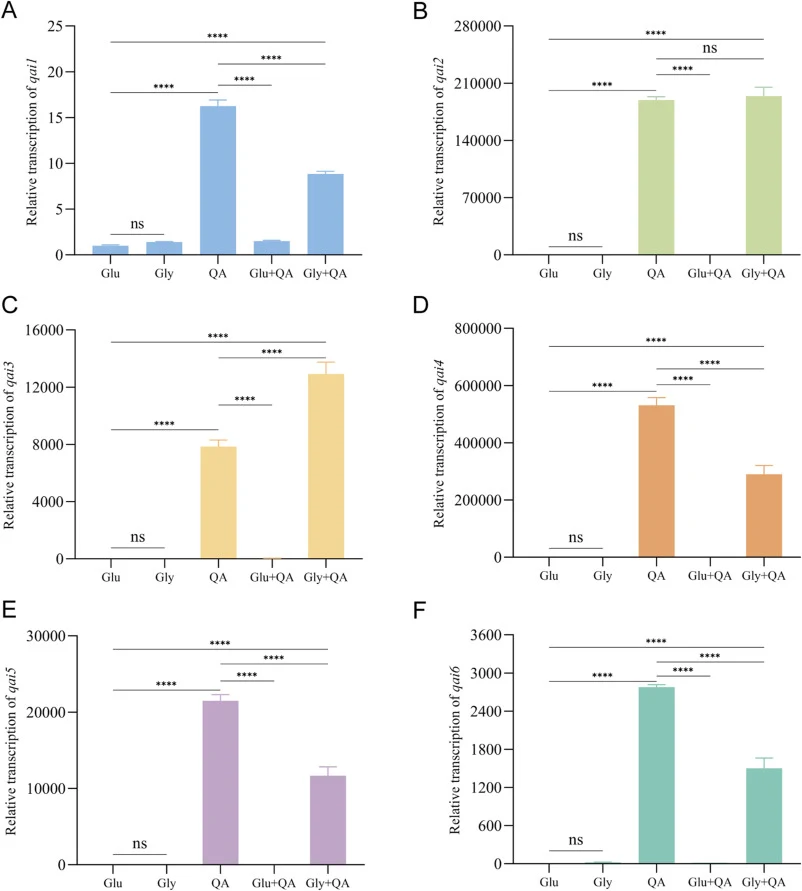
【数据】碳源条件:葡萄糖、甘油、QA及组合;分析方法:RT-qPCR;基因:qai1-6;结果:葡萄糖完全消除QA诱导,甘油仅轻微减弱;参照基因:actin;CCR机制:葡萄糖触发CCR介导抑制
3.3 qai1过表达赋予qai基因簇QA非依赖性诱导
在qai基因簇中,qai1编码一个推定转录因子,来自粗糙脉孢菌的实验证据支持其作为转录激活因子[32]。为确定qai1的组成型过表达是否足以绕过QA诱导需求,并在葡萄糖或甘油作为唯一碳源时驱动整个qai簇的转录,我们构建了在铜响应型tcu1启动子[33]控制下过表达qai1的重组里氏木霉菌株。转录分析显示,在葡萄糖或甘油作为唯一碳源的条件下,qai1过表达显著上调qai2-5的表达。这种上调与qai1表达水平呈严格的剂量依赖关系(图3)。总体而言,这些结果表明qai1过表达足以独立于QA诱导激活qai基因簇。鉴于甘油仅微弱抑制QA依赖性的qai基因簇表达,我们推测在同时含甘油和QA的混合碳源条件下,外源驱动的qai1表达与内源QA诱导的qai1的联合效应将导致簇的协同转录激活。然而有趣的是,甘油和QA同时存在导致qai1转录水平较单独甘油或葡萄糖条件显著降低,并伴随qai2–5基因表达下降(图3)。这种意外的衰减反映了里氏木霉中可能存在负反馈机制,微调qai1转录以防止qai基因簇的转录过度激活。类似的自动调节反馈回路已在多种微生物基因调控中被记录[34,35]。为严格验证qai1过表达所赋予的QA非依赖性表达模式的真实性,我们通过向培养基中补充铜离子来抑制tcu1启动子驱动的qai1表达(图4)。伴随qai1下调,qai基因簇的转录水平显著降低。总体而言,这些发现表明qai1是qai簇的主转录激活因子;其人工过表达足以绕过QA依赖性诱导并驱动里氏木霉中qai基因簇的转录。
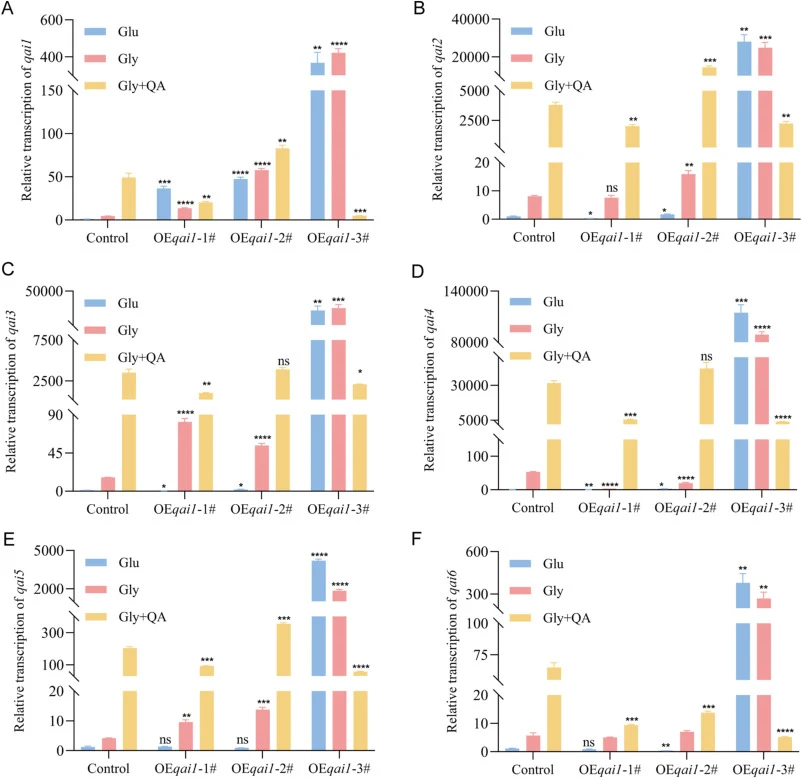
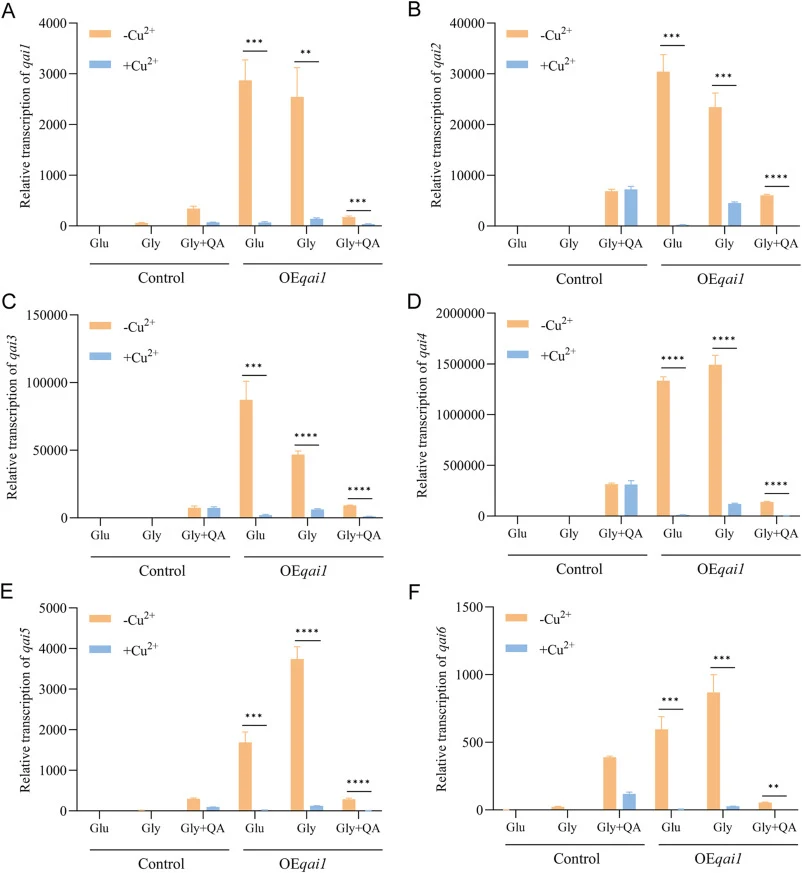
【数据】菌株:OEqai1-3#;启动子:tcu1(铜响应型);碳源:葡萄糖、甘油、QA、甘油+QA;基因:qai1、qai2-5;结果:qai1过表达显著上调qai2-5,呈剂量依赖;甘油+QA条件下qai1转录水平显著降低;铜离子抑制qai1表达后qai簇转录水平显著降低
3.4 Qai1在里氏木霉中的调控谱
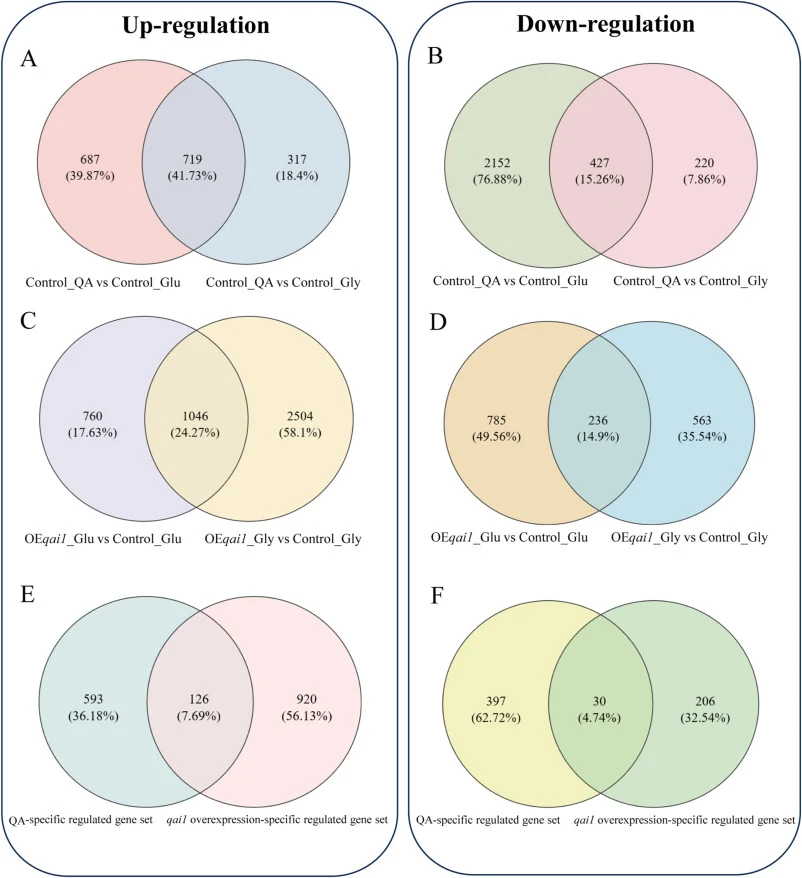
为研究qai1基因对里氏木霉全基因组转录调控的影响,进行了系统性转录组分析(数据S1)。RNA-seq数据显示,qai1基因过表达完全重塑了里氏木霉的全局转录景观。在不同碳源下,qai1过表达菌株与对照菌株相比显示出大量基因表达变化:葡萄糖条件下2827个差异表达基因(DEGs)(1806上调,1021下调),甘油条件下4349个(3550上调,799下调),QA条件下4650个(3614上调,1036下调)(图S4和数据S2)。从RNA-seq获得的qai基因簇表达谱与我们的RT-qPCR结果一致(图S5)。特别值得注意的是,当qai1在以QA为唯一碳源的培养基中过表达时,qai基因簇的表达水平不超过葡萄糖或甘油条件下观察到的水平,甚至低于在QA条件下培养的对照菌株的表达水平(图S5)。这一观察与我们之前在甘油–QA复合碳源条件下获得的实验结果一致(图3)。与tcu1表达谱比较显示,qai1过表达菌株中tcu1启动子的活性在QA条件下仍保持高水平,显著高于对照菌株,尽管略低于qai1过表达菌株在葡萄糖和甘油条件下的水平(图S6)。这在一定程度上排除了QA条件下qai1表达不足由tcu1启动子活性不足引起的可能性。当然,支持这一结论的更直接证据需要在蛋白水平验证qai1表达。在对照菌株中,与葡萄糖相比,QA诱导了1406个上调基因和2579个下调基因;与甘油相比,诱导了1036个上调基因和647个下调基因(数据S3)。这两组比较中上调和下调基因的交集被定义为QA特异性调控基因,得到719个上调基因和427个下调基因(图5A和B)。同时,qai1过表达……
【数据】测序平台:Illumina;碳源:葡萄糖、甘油、QA;DEGs数量:葡萄糖2827(1806↑,1021↓)、甘油4349(3550↑,799↓)、QA 4650(3614↑,1036↓);QA特异性调控基因:719个上调、427个下调;对照菌株中QA vs 葡萄糖:1406↑、2579↓;QA vs 甘油:1036↑、647↓;分析方法:RNA-seq、RT-qPCR
3.5 用于ilicicolin H生物合成的AGC设计
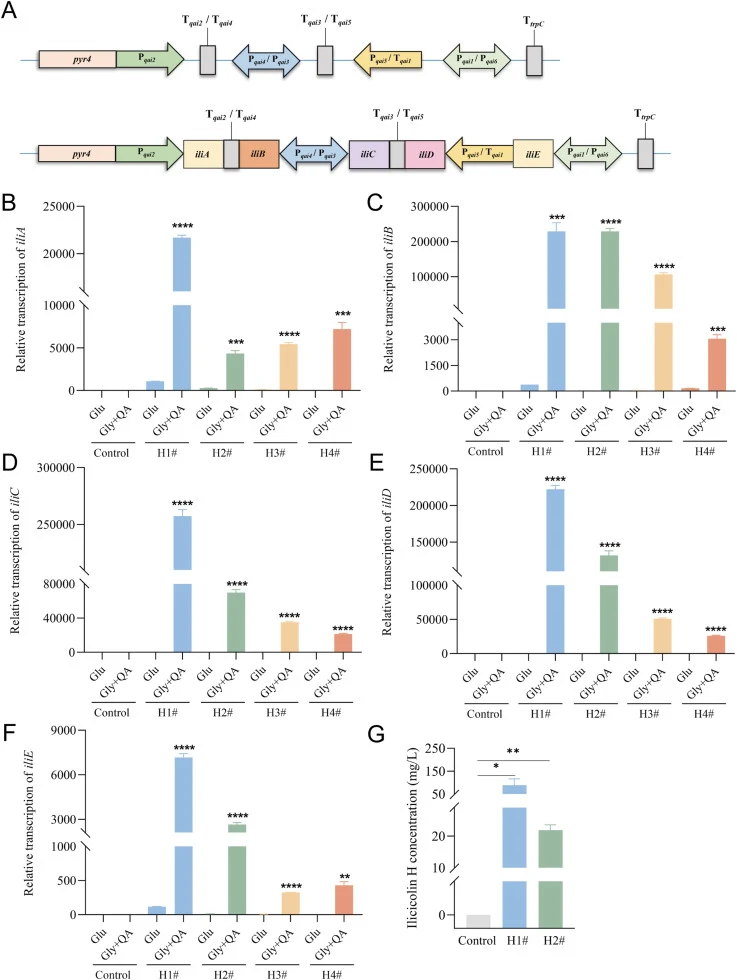
基于上述发现,我们设计了用于在里氏木霉中生物合成ilicicolin H的AGC。图6A展示了表达负责ilicicolin H生物合成的五个关键功能基因(iliA-E)的AGC图谱。在四种独立分离的菌株中,于不同碳源条件下对iliA-E进行转录分析(图6B–F)。
【数据】基因:iliA、iliB、iliC、iliD、iliE;菌株数:4株独立分离菌株;碳源条件:原文未详述(图6B–F);分析方法:转录分析
3.6 用于增强里氏木霉中甘油合成赤藓糖醇的AGC设计
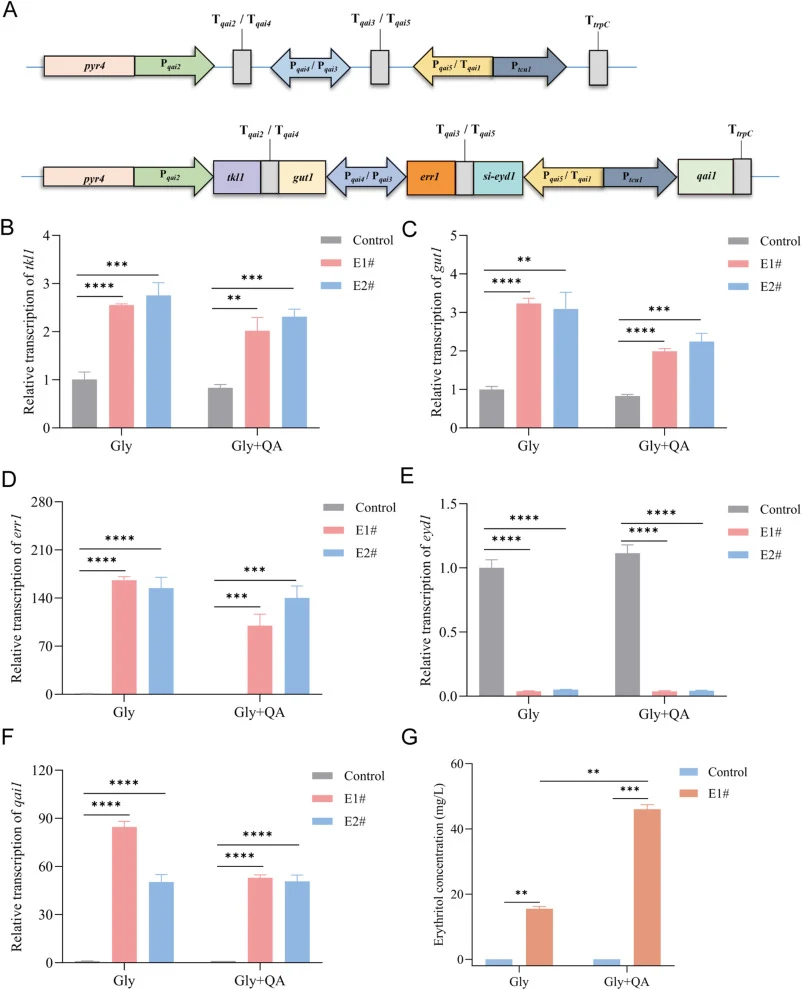
图7A展示了以甘油为碳源时,调控与赤藓糖醇生物合成相关的四个关键功能基因表达的AGC示意图。在四种独立分离的菌株中,于不同碳源条件下对iliA-E(图7B–E)和qai1(图7F)进行转录分析。
【数据】碳源:甘油;靶标基因:四个关键功能基因(与赤藓糖醇生物合成相关)、qai1;菌株数:4株独立分离菌株;分析方法:转录分析(图7B–G)
讨论与解读
里氏木霉是蛋白质、有机酸和次级代谢产物生物合成的极具前景的细胞工厂[15,42,43]。其分解利用生物质的天然能力使其成为CBP合成功能蛋白或代谢物的有竞争力底盘。本研究基于里氏木霉qai基因簇的功能DNA元件及其表达调控机制,设计了可诱导和组成型AGC,允许在不同应用场景中同时调控多个基因的表达,并确保细胞工厂构建过程中的时间和人力节省。特别是对于对底盘细胞有毒性的代谢物,可诱导AGC的应用可以消除过早合成有毒代谢物对菌株构建和发酵过程中生物量积累的负面影响,从而在所需时间点促进目标代谢物的生物合成。
编译者解读:该研究巧妙"征用"了里氏木霉自身QA代谢簇的调控元件,将天然基因簇改造成可编程的多基因表达平台,体现了合成生物学"借用自然模块"的设计哲学。qai1作为主调控因子的鉴定,使诱导型与组成型两种模式可灵活切换,为毒性代谢物合成提供了时序控制策略。不过,转录组数据显示qai1过表达引发数千基因差异表达,脱靶效应不容忽视;QA条件下负反馈导致的表达衰减也提示调控网络存在内源制衡。如何缩小代谢负担、实现精准调控,是该AGC平台走向工业化应用的关键。
参考来源
期刊:Synthetic and Systems Biotechnology, 2027
DOI: 10.1016/j.synbio.2026.09.001
DOI: 10.1016/j.synbio.2026.09.001